

Dysregulace RNA transponovatelného elementu v mutantních KRAS(G12C) 3D sféroidech rakoviny plic
Oct 27, 2023
ABSTRAKTNÍ
Mutantní KRAS reguluje expresi transponovatelného elementu (TE) RNA a interferonem stimulovaného genu (ISG), ale zůstává nejasné, zda různé mutace v KRAS ovlivňují různé TE RNA v celém genomu. Analyzovali jsme transkriptomy 3D sféroidů lidské rakoviny plic, které obsahují mutace KRAS(G12C), abychom určili krajinu TE RNA regulovaných mutantem KRAS(G12C). Zjistili jsme, že signalizace KRAS (G12C) je nutná pro expresi TE RNA odvozených z LINE a LTR, které se liší od TE RNA, o kterých se dříve ukázalo, že jsou regulovány mutantními KRAS (G12D) nebo KRAS (G12V). Kromě toho inhibice KRAS(G12C) specificky upreguluje TE RNA odvozené od SINE z nejmladší Alu podrodiny AluY. Naše výsledky ukazují, že dysregulace TE RNA v buňkách rakoviny plic řízených KRAS je závislá na mutaci, a zároveň zdůrazňují podskupinu mladých TE RNA odvozených z Alu, které jsou koordinovaně aktivovány geny vrozené imunity po inhibici KRAS (G12C).

Výhody cistanche tubulosa-Antitumor
ÚVOD
RNA transponovatelného prvku (TE) jsou opakovaně dysregulovány v souvislosti s rakovinou 1. V mutantních buňkách rakoviny plic KRAS jsou geny KRAB zinc-finger (KZNF) široce downregulovány, což vede k aberantní upregulaci TE RNA odvozených z LINE, SINE a LTR prvky 2,3. Kromě TE RNA jsou také dlouhé nekódující RNA (lncRNA) koordinovaně regulovány signálními geny RAS 4 a jejich expresní vzorce jsou podobně změněny u mnoha rakovin 5-8. U TE RNA jejich upregulace u rakoviny indukuje stav virové mimikry, což vede k vnitřní aktivaci genů vrozené imunity, jako jsou geny stimulované interferonem (ISG) 3,9,10. Zejména rodina Alu SINE je převládajícím zdrojem imunogenních TE RNA 11, které jsou indukovány epigenetickými změnami způsobenými inhibitory DNA metyltransferázy (DNMTi) nebo inhibicí KZNF zprostředkovanou mutantním KRAS 3,9,10.
Abychom prozkoumali, jak běžná mutace v KRAS ovlivňuje krajinu TE RNA v buňkách rakoviny plic, charakterizovali jsme transkriptomy 3D sféroidů rakoviny plic, které obsahují mutace KRAS(G12C) v přítomnosti nebo nepřítomnosti mutantního inhibitoru KRAS(G12C) 12. že signalizace KRAS(G12C) je nutná pro expresi TE RNA odvozených z LINE a LTR, zatímco inhibice KRAS(G12C) specificky upreguluje jak TE RNA odvozené od SINE, tak podskupinu genů souvisejících s interferonem (IFN). Naše zjištění odhalují komplexní souhru mezi mutantní signalizací KRAS a dysregulací TE v buňkách rakoviny plic, kde je definovaný soubor mladých prvků AluY upregulován způsobem závislým na mutaci.

Výhody cistanche tubulosa-Antitumor
VÝSLEDEK
Inhibice KRAS(G12C) mění kódující a nekódující transkriptom
Abychom určili, jak onkogenní signalizace KRAS(G12C) reguluje kódující a nekódující transkriptom, provedli jsme sekvenování RNA (RNA-seq) na 3D mutantních sféroidech rakoviny plic KRAS(G12C). Pro RNA-seq jsme použili protokol plné délky s 5' jedinečnými molekulárními identifikátory (UMI), abychom umožnili přesné počítání RNA a zároveň zmírnili zkreslení PCR amplifikace 13 (obrázek 1A). Porovnali jsme transkriptomy sféroidů rakoviny plic H358 ošetřených inhibitorem KRAS(G12C) ARS-1620 (ARS) s kontrolními sféroidy (ošetřené DMSO) (obrázek S1A) a viděli jsme, že léčba ARS podstatně snížila hladiny fosforylovaného ERK (p-ERK) (obrázek S1B), což ukazuje, že léčba ARS inhibovala downstream signalizaci KRAS (G12C). Potlačení signalizace KRAS(G12C) léčbou ARS bylo také prokázáno snížením velikosti sféroidů a životaschopnosti buněk (obrázek S1C a S1D).
Na úrovni RNA jsme hodnotili relativní množství různých biotypů a TE superrodin v 3D sféroidech rakoviny plic ošetřených ARS nebo DMSO, což odhalilo dynamické změny ve složení TE RNA po inhibici KRAS (G12C) (obrázek 1B). Zatímco jsme detekovali pouze 32 % genů kódujících proteiny anotované GENCODE a 15 % genů lncRNA, 92-96 % superrodin TE (92 % LTR, 95 % SINE, 96 % LINE) bylo zastoupeno v našem UMI označeném RNA-seq data, odhalující širokou dysregulaci TE RNA v transkriptomu řízeném KRAS(G12C). Až čtvrtina všech detekovaných molekul RNA ve sféroidech rakoviny plic ošetřených ARS byla odvozena z TE, což naznačuje, že TE RNA představují značnou část transkripčního výstupu mutantních buněk rakoviny plic KRAS(G12C).

cistanche výhody pro muže-posilují imunitní systém
Kliknutím sem zobrazíte produkty Cistanche Enhance Immunity
【Požádejte o více】 E-mail:cindy.xue@wecistanche.com / Whats App: 0086 18599088692 / Wechat: 18599088692
Dále jsme určili významně odlišně exprimované geny mezi 3D sféroidy rakoviny plic ošetřenými ARS a DMSO, abychom identifikovali biologické procesy, které byly regulovány onkogenní signalizací KRAS(G12C). Sféroidy rakoviny plic s intaktní signalizací KRAS (G12C) byly významně obohaceny o geny zapojené do kontrolního bodu G2M, cílů E2F, cílů MYC a mitotického vřeténka (obrázek 1C). Po inhibici KRAS (G12C) však sféroidy rakoviny plic exprimovaly významně vyšší hladiny genů zapojených do oxidační fosforylace, komplementu a reakcí IFN alfa a gama (obrázek 1C), což poskytuje další podpůrný důkaz pro zapojení signalizace KRAS do regulace. genů souvisejících s IFN 2,3.
Inhibice KRAS(G12C) koordinovaně indukuje ISG a mladé prvky AluY
Abychom dále objasnili vnitřní upregulaci ISG po inhibici KRAS (G12C), identifikovali jsme, které geny a TE byly významně odlišně exprimovány v každé sadě genů a nadrodině TE. Napříč geny odezvy IFN alfa i IFN gama byl nejsilněji indukovaným genem po inhibici KRAS (G12C) u sféroidů rakoviny plic RTP4 (obrázek 2A), receptorový transportní protein, který negativně reguluje signalizaci TBK1 14. Navíc komplex MHC I. třídy gen beta-2-mikroglobulin (B2M), který je opakovaně inaktivován u rakoviny plic 15, byl také významně upregulován v obou souborech genů souvisejících s IFN ve sféroidech rakoviny plic léčených ARS (obrázek 2A).
Vzhledem k přímé roli onkogenní signalizace KRAS v regulaci TE RNA 3 jsme zkoumali, které podrodiny TE RNA byly závislé na mutantu KRAS (G12C). U sféroidů rakoviny plic s intaktní signalizací KRAS (G12C) jsme zjistili, že podrodiny LINE L1M6B a L1PA12 byly vysoce exprimovány a závislé na KRAS (G12C), jak dokazuje jejich downregulace ve sféroidech rakoviny plic léčených ARS (obrázek 2B). Navíc, zatímco pouze jedna podrodina DNA MER44D byla závislá na signalizaci KRAS(G12C), více než tucet podrodin LTR bylo regulováno mutantou KRAS(G12C), včetně MLT1A0-int, LTR51, MER50B a LTR1B0 (obrázek 2B). Na rozdíl od toho byly všechny podrodiny SINE významně upregulovány po inhibici KRAS (G12C) a koordinovaně indukovány specifickými geny ISG (obrázek 2A) ve sféroidech rakoviny plic. Tyto SINE TE RNA byly všechny odvozeny z podrodiny AluY (obrázek 2B), což ukazuje, že inhibice KRAS (G12C) dysreguluje specifickou podskupinu mladých prvků AluY.
Inhibice KRAS(G12C) downreguluje dlouhé nekódující RNA
Abychom dále objasnili účinky inhibice KRAS(G12C) na transkriptom, zkoumali jsme všechny významně odlišně exprimované lncRNA ve sféroidech rakoviny plic ošetřených ARS nebo DMSO kontrolou. Zjistili jsme, že velký počet lncRNA byl závislý na signalizaci KRAS (G12C), pokud jde o jejich expresi, protože mnoho z těchto lncRNA bylo významně downregulováno po inhibici KRAS (G12C) (obrázek 3A). Tři z těchto downregulovaných lncRNA, AC114546.3, NCMAP-DT a AC073575.2, nemají žádné známé funkce, ale překrývají se v antisense orientaci ke kódujícím genům ZNF770, RCAN3 a ERP29. Jako třída nekódující RNA jsme pozorovali širokou downregulaci lncRNA po léčbě ARS ve sféroidech rakoviny plic (obrázek 3B), což naznačuje, že mnoho lncRNA je závislých na signalizaci KRAS (G12C) pro jejich expresi.

cistanche výhody pro muže-posilují imunitní systém
DISKUSE
Zde ukazujeme, že onkogenní signalizace KRAS(G12C) je nutná pro expresi specifických superrodin TE, jmenovitě prvků LINE a LTR, a také podskupiny lncRNA, což dále ukazuje, jak signalizace RAS reguluje nekódující transkriptom 2-4. Použili jsme také 3D sféroidní model rakoviny plic pro naše experimenty s inhibitory KRAS (G12C), protože se ukázalo, že 3D modely věrněji rekapitulují lékovou odpověď in vivo ve srovnání s 2D kultivačními modely 16. Dále naše aplikace plného UMI Technika -length RNA-seq 13 nám umožnila přesněji zachytit složení a dynamiku TE RNA v našich sféroidech rakoviny plic odstraněním duplikátů PCR v našich datech RNA-seq.
Naše zjištění jsou v souladu s předchozími studiemi inhibice KRAS(G12C), kde geny odezvy IFN alfa a gama byly upregulovány v buňkách rakoviny plic H358 ošetřených ARS 17. Na základě známých imunogenních vlastností RNA odvozených z hliníku 11 naše výsledky naznačují, že specifická upregulace mladých prvků AluY po inhibici KRAS(G12C) je alespoň částečně zodpovědná za silnou upregulaci ISG ve sféroidech rakoviny plic léčených ARS. Pozoruhodné je, že významné obohacení genů souvisejících s IFN v reakci na léčbu inhibitorem KRAS(G12C) nezahrnuje další upregulaci RNA senzorových ISG, jako jsou MDA-5, RIG-I nebo PKR, které se zpočátku upregulovaly v plicní buňky jako odpověď na onkogenní signalizaci KRAS 2,3.
Již dříve jsme ukázali, že samotná signalizace mutantního KRAS je dostatečná k indukci upregulace TE RNA v lidských plicních buňkách, které byly transformovány in vitro 2,3, a naše zde popsané výsledky rozšiřují tato pozorování na buňky rakoviny plic s odlišnou aktivační mutací KRAS. Mutace KRAS(G12D) nebo KRAS(G12V) indukují významnou upregulaci podrodiny LTR12C v transformovaných plicních buňkách 3, ale nezaznamenali jsme významné obohacení TE RNA odvozených od LTR12C v našich sféroidech rakoviny plic KRAS(G12C). Místo toho jsme viděli upregulaci LTR51, LTR1B0, LTR14B a LTR28B, což naznačuje, že různé mutace zesílení funkce v KRAS regulují různé aspekty transkriptomu TE RNA.
Naše práce poskytuje komplexní hodnocení toho, jak nekódující/TE RNA transkriptom dynamicky reaguje na inhibici KRAS(G12C). Budoucí studie mohou poskytnout nový pohled na potenciální role nekódujících/TE RNA v mechanismech rezistence vůči inhibitorům KRAS(G12C). Kromě toho TE RNA, které jsou secernovány z rakovinných buněk po inhibici KRAS, mohou sloužit jako extracelulární biomarkery RNA 2, 3, 5, 18, 19 odpovědi a/nebo rezistence na terapie inhibitory KRAS 20.
MATERIÁLY A METODY
Buněčné linie
Buněčné linie rakoviny plic H358 obsahující mutaci KRAS(G12C) byly kultivovány v médiu RPMI 1640 (Invitrogen) doplněném 10% fetálním bovinním sérem (Sigma) při 37 stupních, 5% CO2 ve zvlhčeném inkubátoru. Všechny buněčné linie byly testovány na mykoplazma negativně. Buněčné linie byly zakoupeny od American Type Culture Collection (ATCC).
Testy životaschopnosti buněk
Pro testy životaschopnosti sféroidů bylo 10,{1}} buněk/jamka nasazeno na destičky s kulatým dnem s nízkou adhezí 96-jamkových destiček a inkubováno při 37 stupních, 5% CO2 po dobu 24 hodin. Poté byly k buňkám přidány sériově zředěné ARS{7}} nebo DMSO a destičky byly inkubovány za standardních kultivačních podmínek po dobu 72 hodin, přičemž čerstvé médium ARS a DMSO bylo denně vyměňováno. Životaschopnost buněk byla měřena pomocí soupravy Cell Titer-Glo® Luminescent Cell Viability Assay kit (Promega) podle protokolu výrobce. Luminiscenční signál vzorků ošetřených ARS byl normalizován na kontrolu DMSO. Luminiscence byla měřena na molekulárním zařízení SpectraMax iD3.
RNA izolace
Celková objemová RNA byla izolována z přibližně 100 sféroidů H358 (za podmínek) pomocí sady Quick-RNA Mini-Prep kit (Zymogen) podle protokolu výrobce. RNA byla kvantifikována pomocí NanoDrop-8000 spektrofotometru.
Příprava knihovny RNA-seq
Upravený protokol Smart-seq3 13 byl použit ke generování knihoven RNA-seq z celkové RNA pro počítání a hodnocení molekul RNA o plné délce. Stručně, 10ng celkové RNA byl reverzně transkribován s použitím oligoDT primeru s čárovým kódem (125 nM) s následným přepnutím templátu pomocí oligonukleotidového přepínače templátu s čárovým kódem (125 nM). Tyto oligo sekvence sloužily jako primery pro PCR amplifikaci. Kit Nextera HT (Illumina) byl použit pro konverzi cDNA knihoven na sekvenační knihovny s přidáním UMI-specifického primeru pro amplifikaci cDNA konců obsahujících molekulární čárové kódy, jak je popsáno v protokolu Smart-seq3. Kvalita cDNA a knihovny byla hodnocena pomocí čipu Agilent bioanalyzer DNA s vysokou citlivostí a kvantifikována pomocí testu DNA s vysokou citlivostí na Qubit 3.0.
Západní skvrna
Po ošetření ARS nebo DMSO bylo izolováno přibližně 100 sféroidů H358 (za podmínky). Sféroidy byly poté inkubovány na ledu v RIPA pufru doplněném inhibitorem proteázy po dobu 15 minut. Lyzáty byly poté odstřeďovány při 10,000 RCF po dobu 10 minut. Supernatant byl poté přenesen do nové zkumavky pro následnou přípravu vzorku SDS-PAGE v Laemmliho pufru, vařený po dobu 5 minut při 95 °C na konečnou koncentraci 1 mg/ml. Byla provedena SDS PAGE pro separaci proteinu podle velikosti s následným přenosem na PVDF membránu. Membrány byly inkubovány s primárními protilátkami p-ERK (CST) a HSP90 (CST) přes noc při 4 °C. Sekundární protilátky (Abcam) byly poté inkubovány na membránách promytých TBST třikrát v blokovacím pufru pro následné zobrazení.

cistanche výhody pro muže-posilují imunitní systém
Deduplikace UMI
Čtení spárovaného koncového osvětlení byly oříznuty adaptérem pomocí FastP 21 s výchozím nastavením. UMI byly extrahovány ze čtení a přesunuty do readname pomocí extraktu umi_tools_ z balíčku UMI-tools 22 se vzorem čárového kódu nastaveným na „NNNNNNNN“. Odebrané hodnoty UMI byly zarovnány proti HG38 pomocí zarovnávače STAR se sadou anotací GENCODE v38. Zarovnaná čtení byla deduplikována pomocí "UMI-tools dedup" s výchozím nastavením.
RNA-seq analýza
Všechny soubory fastq byly oříznuty pomocí Trimmomatic 2 (0.38) 23 a výsledné oříznuté soubory byly posouzeny pomocí FastQC 24 a poté zpracovány následujícím analytickým potrubím: Losos (1.3.0): pseudozarovnání RNA -seq čtení provedené s Salmonem 25 pomocí následujících argumentů: {{1{{20}}}}validateMappings –gcBias --seqBias --recoverOrphans --rangeFactorizationBins 4 using index vytvořený z transkriptomového fasta souboru GENCODE verze 35 pomocí návnadových sekvencí pro umožnění selektivního zarovnání. Další, TE-aware index byl vytvořen podobným způsobem, ale doplněn o sekvence generované ze stopy UCSC Repeat Masker. DESeq2 (1.32.0): Výstup lososa byl importován do objektu DESeq pomocí tximport 26 a analýza diferenciální exprese byla provedena se standardními argumenty 27. Všechny výsledky byly filtrovány tak, aby padj < 0,05. Kde byla použita data počtu, byla normalizována napříč vzorky pomocí DESeq.
Analýza obohacení genové sady
Diferenciálně exprimované geny byly seřazeny podle zmenšených hodnot log2FoldChange generovaných DESeq2. Sady genů byly získány pomocí balíčku R msigdbr (7.4.1) a filtrovány tak, aby obsahovaly pouze sady genů se statusem „Hallmark“. Balíček R fgsea (1.18.0) byl použit ke generování odhadů obohacení genové sady, které byly filtrovány na výsledky s upravenými hodnotami p < 0,05.
REFERENCE
1. Burns, KH (2017). Transponovatelné prvky u rakoviny. Nat Rev Cancer 17, 415-424. 10.1038/nrc.2017.35.
2. Reggiardo, RE, Maroli, SV, Halasz, H., Ozen, M., Carrillo, D., LaMontagne, E., Whitehead, L., Kim, E., Malik, S., Fernandes, J., a kol. (2020). Epigenomické přeprogramování repetitivních nekódujících RNA a IFN-stimulovaných genů mutantním KRAS. bioRxiv, 2020.2011.2004.367771. 10.1101/2020.11.04.367771.
3. Reggiardo, RE, Maroli, SV, Halasz, H., Ozen, M., Hrabeta-Robinson, E., Behera, A., Peddu, V., Carrillo, D., LaMontagne, E., Whitehead, L ., a kol. (2022). Mutant KRAS reguluje transponovatelný element RNA a vrozenou imunitu prostřednictvím genů KRAB zinkových prstů. Cell Reports 40. 10.1016/j.celrep.2022.111104.
4. Kim, DH, Marinov, GK, Pepke, S., Singer, ZS, He, P., Williams, B., Schroth, GP, Elowitz, MB a Wold, BJ (2015). Analýza jednobuněčného transkriptomu odhaluje dynamické změny v expresi lncRNA během přeprogramování. Kmenová buňka buňky 16, 88-101. 10.1016/j.stem.2014.11.005.
5. Reggiardo, RE, Maroli, SV, a Kim, DH (2022). LncRNA biomarkery zánětu a rakoviny. Adv Exp Med Biol 1363, 121-145. 10.1007/978-3-030-92034-0_7.
6. Schmitt, AM a Chang, HY (2016). Dlouhé nekódující RNA v rakovinových drahách. Cancer Cell 29, 452-463. 10.1016/j.ccell.2016.03.010.
7. Rinn, JL, a Chang, HY (2020). Dlouhé nekódující RNA: Molekulární modality k funkcím organismu. Annu Rev Biochem 89, 283-308. 10.1146/annurev-biochem- 062917-012708.
8. Slack, FJ a Chinnaiyan, AM (2019). Role nekódujících RNA v onkologii. Buňka 179, 1033-1055. 10.1016/j.cell.2019.10.017.
9. Chiappinelli, Katherine B., Strissel, Pamela L., Desrichard, A., Li, H., Henke, C., Akman, B., Hein, A., Rote, Neal S., Cope, Leslie M. Snyder, A., a kol. (2015). Inhibice methylace DNA způsobuje interferonovou odpověď u rakoviny prostřednictvím dsRNA včetně endogenních retrovirů. Buňka 162, 974-986. 10.1016/j.cell.2015.07.011.
10. Roulois, D., Loo Yau, H., Singhania, R., Wang, Y., Danesh, A., Shen, Shu Y., Han, H., Liang, G., Jones, Peter A., Pugh, Trevor J. a kol. (2015). Činidla demetylující DNA se zaměřují na buňky kolorektálního karcinomu indukcí virové mimikry endogenními transkripty. Buňka 162, 961-973. 10.1016/j.cell.2015.07.056.
11. Mehdipour, P., Marhon, SA, Ettayebi, I., Chakravarthy, A., Hosseini, A., Wang, Y., de Castro, FA, Loo Yau, H., Ishak, C., Abelson, S ., a kol. (2020). Epigenetická terapie indukuje transkripci invertovaných SINE a závislost ADAR1. Příroda 588, 169-173. 10 1038/s41586-020-2844-1.
12. Ostrem, JM, Peters, U., Sos, ML, Wells, JA a Shokat, KM (2013). Inhibitory K-Ras(G12C) alostericky kontrolují GTP afinitu a efektorové interakce. Příroda 503, 548- 551. 10,1038/příroda12796.
13. Hagemann-Jensen, M., Ziegenhain, C., Chen, P., Ramskold, D., Hendriks, GJ, Larsson, AJM, Faridani, OR, and Sandberg, R. (2020). Počítání jednobuněčné RNA při rozlišení alel a izoforem pomocí Smart-seq3. Nat Biotechnol 38, 708-714. 10,1038/s{10}}.
14. He, X., Ashbrook, AW, Du, Y., Wu, J., Hoffmann, HH, Zhang, C., Xia, L., Peng, YC, Tumas, KC, Singh, BK a kol. (2020). RTP4 inhibuje odpověď IFN-I a zvyšuje experimentální cerebrální malárii a neuropatologii. Proč Natl Acad Sci USA 117, 19465- 19474. 10.1073/pnas.2006492117.
15. Pereira, C., Gimenez-Xavier, P., Pros, E., Pajares, MJ, Moro, M., Gomez, A., Navarro, A., Kondom, E., Moran, S., Gomez- Lopez, G., a kol. (2017). Genomické profilování xenoimplantátů pro rakovinu plic odvozených od pacientů identifikuje inaktivaci B2M narušující imunitní rozpoznávání. Clin Cancer Res 23, 3203-3213. 10.1158/1078-0432.CCR-16-1946.
16. Sen, C., Freund, D. a Gomperts, BN (2022). Trojrozměrné modely plic: minulost, přítomnost a budoucnost: minirecenze. Biochem Soc Trans 50, 1045-1056. 10.1042/BST20190569. 17. Mugarza, E., van Maldegem, F., Boumelha, J., Moore, C., Rana, S., Llorian Sopena, M., East, P., Ambler, R., Anastasiou, P., Romero -Clavijo, P., a kol. (2022). Terapeutická inhibice KRAS(G12C) řídí účinnou protinádorovou imunitu zprostředkovanou interferonem u imunogenních rakovin plic. Sci Adv 8, eabm8780. 10.1126/sciadv.abm8780.
18. Khojah, R., Reggiardo, RE, Ozen, M., Maroli, SV, Carrillo, D., Demirci, U. a Kim, DH (2022). Extracelulární RNA signatury mutantních buněk adenokarcinomu plic KRAS(G12C). bioRxiv, 2022.2002.2023.481574. 10.1101/2022.02.23.481574.
19. Wang, J., Ma, P., Kim, DH, Liu, BF, a Demirci, U. (2021). Směrem k mikrofluidní izolaci a detekci exozomů pro terapii nádorů. Nano Dnes 37. 10.1016/j.nantod.2020.101066.
20. Moore, AR, Rosenberg, SC, McCormick, F. a Malek, S. (2021). Terapie cílené na RAS. Nat Rev Drug Discov. 10 1038/s41573-021-00220-6.
21. Chen, S., Zhou, Y., Chen, Y. a Gu, J. (2018). fastp: ultrarychlý all-in-one preprocesor FASTQ. Bioinformatika 34, i884-i890. 10.1093/bioinformatika/bty560.
22. Smith, T., Heger, A., and Sudbery, I. (2017). Nástroje UMI: modelování chyb sekvenování v jedinečných molekulárních identifikátorech pro zlepšení přesnosti kvantifikace. Genome Res 27, 491- 499. 10.1101/gr.209601.116.
23. Bolger, AM, Lohse, M., and Usadel, B. (2014). Trimmomatic: flexibilní trimr pro sekvenční data Illumina. Bioinformatika 30, 2114-2120. 10.1093/bioinformatika/btu170.
24. Brown, J., Pirrung, M. a McCue, LA (2017). FQC Dashboard: integruje výsledky FastQC do webového, interaktivního a rozšiřitelného nástroje pro kontrolu kvality FASTQ. Bioinformatika. 10.1093/bioinformatika/btx373.
25. Patro, R., Duggal, G., Love, MI, Irizarry, RA a Kingsford, C. (2017). Losos poskytuje rychlou a zkreslenou kvantifikaci exprese transkriptu. Metody Nat 14, 417-419. 10,1038/nmeth.4197.
26. Soneson, C., Láska, MI a Robinson, MD (2015). Diferenciální analýzy pro RNA-seq: odhady na úrovni transkriptu zlepšují závěry na úrovni genů. F1000Res 4, 1521. 10.12688/f1000výzkum.7563.2.
27. Láska, MI, Huber, W. a Anders, S. (2014). Moderovaný odhad násobné změny a disperze pro data RNA-seq s DESeq2. Genome Biol 15, 550. 10.1186/s13059-014- 0550-8.
PODĚKOVÁNÍ
Děkujeme členům Kim Lab za užitečné diskuse. Tato práce byla podpořena finančními prostředky z Baskin School of Engineering (do DHK). DC bylo podpořeno cenou Predoctoral Fellowship Award od Programu pro výzkum onemocnění souvisejících s tabákem (T30DT0997), RER byla podpořena cenou F99/K00 NIDDK KUH Predoctoral to Postdoctoral Fellow Transition Award od National Institutes of Health (1F99DK{ {7}}) a VP byl podpořen cenou Predoctoral Fellowship Award od Programu výzkumu onemocnění souvisejících s tabákem (T32DT4904).
AUTORSKÉ PŘÍSPĚVKY
DHK konceptualizoval výzkum, DC a DHK navrhly výzkum, DC, JL a GM provedly experimenty, RER a VP analyzovaly data a DC a DHK napsaly článek s přispěním od autorů.
OBRÁZKY
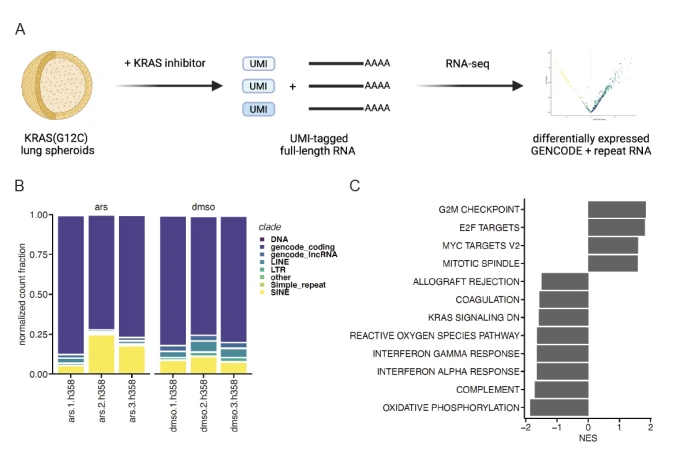
Obrázek 1. Inhibice KRAS(G12C) mění kódující a nekódující transkriptom A. Experimentální schéma. B. Distribuce počtů přiřazených k GENCODE kódujícím, lncRNA a TE/repeat superrodinám ve sféroidních RNA-seq knihovnách rakoviny plic léčených ARS (ars) nebo DMSO (dmso), kde každý sloupec představuje biologický replikát. C. Výsledky analýzy významného obohacení genové sady pozorované u sféroidů rakoviny plic ošetřených DMSO (pravý, pozitivní NES) nebo ARS (levý, negativní NES) s použitím odlišně exprimovaných genů seřazených podle normalizovaného skóre obohacení (NES).
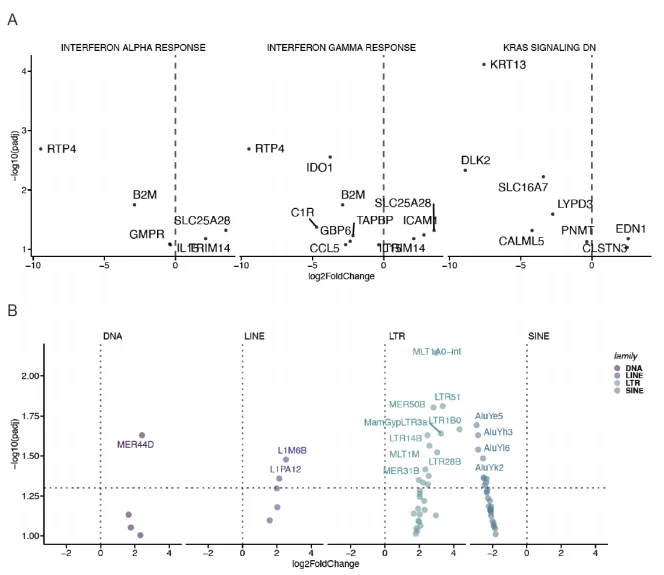
Obrázek 2. Inhibice KRAS(G12C) koordinovaně indukuje ISG a mladé prvky AluY
A. Grafy sopky zobrazující významnou rozdílnou expresi pozorovanou v klíčových genových souborech mezi sféroidy rakoviny plic ošetřenými DMSO (vpravo, pozitivní násobná změna) nebo ARS (vlevo, negativní násobná změna). B. Vulkánové grafy zobrazující významnou rozdílnou expresi pozorovanou v TE superrodinách mezi sféroidy rakoviny plic ošetřenými DMSO (vpravo, pozitivní násobná změna) nebo ARS (vlevo, negativní násobná změna).

Obrázek 3. Inhibice KRAS(G12C) downreguluje dlouhé nekódující RNA
A. Sopečný graf významné rozdílné exprese GENCODE protein kódujících RNA a lncRNA mezi sféroidy rakoviny plic ošetřenými DMSO (vpravo, pozitivní násobná změna) nebo ARS (vlevo, negativní násobná změna). B. Rámečkový graf významné rozdílné exprese RNA a lncRNA kódujících protein GENCODE mezi sféroidy rakoviny plic (Wilcoxon) ošetřenými DMSO (nahoře, pozitivní násobná změna) nebo ARS (dole, negativní násobná změna).
DOPLŇKOVÝ OBRÁZEK
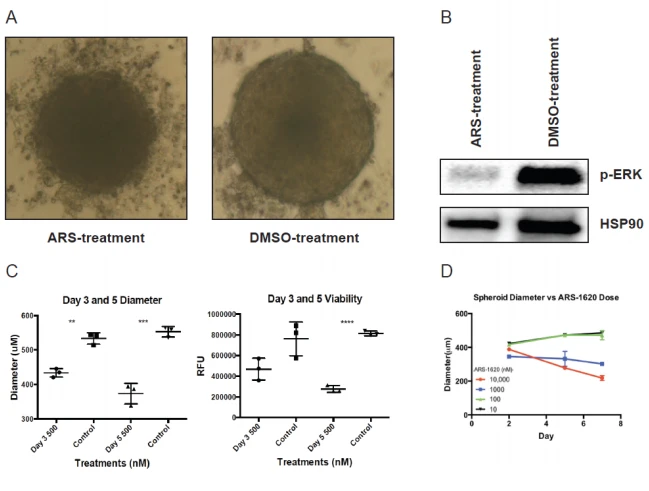
Obrázek S1.
A. H358 3D sféroidy rakoviny plic léčené ARS nebo DMSO. B. Western blot pro p-ERK a HSP90 s použitím sféroidů rakoviny plic H358 3D ošetřených ARS nebo DMSO. C. Měření průměru (v mikrometrech) (levý graf) a životaschopnost buněk (viabilita luminiscenčních buněk Cell Titer-Glo® v relativních fluorescenčních jednotkách) (pravý graf) sféroidů H358 3D plicního karcinomu ošetřených ARS nebo DMSO po 3 nebo 5 dnů léčby (500 nM ARS-1620 nebo DMSO). D. Měření průměru (v mikrometrech) H358 3D sféroidů rakoviny plic ošetřených různými koncentracemi ARS-1620 (nM) po dobu 7 dnů.


