Účinek proti stárnutí polypeptidu sametového parohu je závislý na modulaci střevní mikroflóry a regulaci dráhy PPAR/APOE4 ČÁST 1
Jul 25, 2023
Zkoumali jsme účinky polypeptidu sametového parohu proti stárnutí na stárnoucí myši indukované D-galaktózou (D-gal). Stárnoucí myši vyvolané D-gal byly založeny a náhodně rozděleny do pěti skupin, kontrolní, modelová, skupina vitaminu E (VE), nízkodávkovaný polypeptid sametového parohu a vysokodávkovaný polypeptid sametového parohu. Morrisův test vodního bludiště byl použit k hodnocení schopností učení a paměti stárnoucích myší. Hippokampální neurony byly pozorovány pomocí hematoxylin-eosinového barvení a transmisní elektronové mikroskopie. Biochemické metody byly použity k detekci aktivit superoxiddismutázy, malonaldehydu a dalších enzymů a hodnocení vlivu polypeptidu sametového parohu na antioxidační kapacitu stárnoucích myší. Pomocí sekvenování genu 16S rRNA a technologie meristémů jsme hodnotili účinek polypeptidu sametového parohu na střevní flóru stárnoucích myší a metabolismus mastných kyselin. Experimentální výsledky ukázaly, že polypeptid sametového parohu by mohl významně zlepšit učení a kognitivní schopnosti stárnoucích myší a zvýšit aktivity superoxiddismutázy, glutathionperoxidázy a katalázy v séru za účelem snížení obsahu malonaldehydu. Střevní mikroekologická analýza ukázala, že polypeptid sametového parohu by mohl významně zvýšit početnost prospěšných bakterií rodu lactobacillus. Analýza Western blot dále prokázala, že polypeptid sametového parohu by mohl podporovat metabolismus mastných kyselin aktivací receptoru aktivovaného peroxisomovým proliferátorem (PPAR) a upregulací exprese downstream enzymů karnitin-palmitoyltransferázy-1A a acyl-CoA oxidázy 1 při současné downregulaci. apolipoproteinu E4 (APOE4), čímž se snižuje akumulace mastných kyselin a zvyšuje se produkce adenosin-trifosfátu (ATP). Proto polypeptid sametového parohu zlepšuje střevní mikroekologii a aktivuje dráhu PPAR/APOE4 k regulaci metabolismu mastných kyselin.
Glykosid cistanche může také zvýšit aktivitu SOD v srdeční a jaterní tkáni a významně snížit obsah lipofuscinu a MDA v každé tkáni, účinně zachycovat různé reaktivní kyslíkové radikály (OH-, H₂O₂ atd.) a chránit před způsobeným poškozením DNA. OH-radikály. Cystanche fenylethanoidové glykosidy mají silnou schopnost vychytávání volných radikálů, vyšší redukční schopnost než vitamín C, zlepšují aktivitu SOD v suspenzi spermií, snižují obsah MDA a mají určitý ochranný účinek na funkci membrány spermií. Polysacharidy Cistanche mohou zvýšit aktivitu SOD a GSH-Px v erytrocytech a plicních tkáních experimentálně senescentních myší způsobených D-galaktózou, stejně jako snížit obsah MDA a kolagenu v plicích a plazmě a zvýšit obsah elastinu. dobrý čisticí účinek na DPPH, prodlužuje dobu hypoxie u senescentních myší, zlepšuje aktivitu SOD v séru a oddaluje fyziologickou degeneraci plic u experimentálně senescentních myší Experimenty prokázaly, že Cistanche má dobrou antioxidační schopnost s buněčnou morfologickou degenerací a má potenciál být lékem k prevenci a léčbě nemocí stárnutí kůže. Zároveň má echinakosid v Cistanche významnou schopnost vychytávat volné radikály DPPH a má schopnost vychytávat reaktivní formy kyslíku a bránit volnými radikály indukované degradaci kolagenu a má také dobrý reparační účinek na poškození aniontů volnými radikály thyminu.

Klikněte na Cong Rong Cistanche
【Další informace:george.deng@wecistanche.com / WhatApp:{0}}】
Klíčová slova
polypeptid sametového parohu; D-galaktóza; Stárnutí; Střevní mikroekologie; Učení se; Kognitivní porucha; dráha PPAR/APOE4; Mikrobiota
1. Úvod
Polypeptid sametového parohu (VAP) tvoří 50–60 procent vlhké hmotnosti sametového parohu a je jednou z jeho primárních aktivních složek [1]. VAP je bohatý na proteiny, aminokyseliny, fosfolipidy, cholesterol a ionty vápníku a má různé zdraví prospěšné účinky, byly hlášeny účinky antioxidantů [2], rezistence na osteoporózu [3] a imunitní regulace [4]. Abychom lépe porozuměli roli VAP v prevenci a léčbě neurodegenerativních onemocnění, předchozí výzkum naší výzkumné skupiny také potvrdil, že VAP může snížit hladiny glukokortikoidního receptoru, mineralokortikoidního receptoru a hormonu uvolňujícího kortikotropin. Byly také pozorovány účinky VAP na osu thalamus-hypofýza-nadledviny a její schopnost inhibovat apoptózu neuronů [5].
Stárnutí mozku je přirozený fyziologický proces charakterizovaný oxidačním stresem (OS), hromaděním molekul oxidativního poškození a změnami ve struktuře a funkci neuronů, což nakonec vede k poklesu kognitivních funkcí a ztrátě paměti [6]. Mezi těmito faktory je OS považován za primární příčinu neurodegenerativních onemocnění souvisejících se stárnutím [7]. Když je tělo vystaveno škodlivým podnětům, dochází k nerovnováze mezi tvorbou a odstraňováním volných radikálů, což má za následek nárůst volných radikálů na úroveň, která přesahuje antioxidační kapacitu v těle. Je pozoruhodné, že nadměrné volné radikály jsou cytotoxické a způsobují přímé poškození centrálního nervového systému [8, 9]. Lidský mozek tvoří pouze 2–3 procenta hmotnosti lidského těla. Přesto se centrální nervový systém (CNS) podílí 20 procenty na celkovém zásobení lidského těla kyslíkem. Proto je obsah neuronálních volných radikálů v CNS značný a představuje vysoké riziko OS [10].
Lidská střevní mikroflóra, která zahrnuje více než 100 druhů, obsahuje přibližně 10-krát více bakterií než lidské buňky [11]. Firmicutes jsou nejhojnější druhy v lidské střevní mikrobiotě, představují 60 procent všech bakterií, následují Bacteroidetes (15 procent) a další složky, které tvoří malý podíl. Střevní mikroflóra je ve stavu dynamické rovnováhy s lidským tělem a střevní mikrobi hrají důležitou roli v lidském metabolismu, endokrinní funkci a imunitní regulaci. Při narušení struktury střevní mikrobioty se tedy mohou objevit neurodegenerativní onemocnění, kardiovaskulární onemocnění a obezita [12]. Změny v množství a rozmanitosti střevních mikroorganismů mohou také ovlivnit střevní a centrální nervový systém. Tyto interakce jsou známé jako osa mikrobiota-střevo-mozek, která je důležitá pro funkci těla [13, 14]. Ačkoli změny v profilech střevní mikroflóry nemusí nutně ovlivnit zdraví, ztráta diverzity v jádru mikrobioty je spojena se sníženou kognitivní funkcí a pamětí [15]. S přibývajícím věkem jsou změny v bakteriální flóře charakterizovány především poklesem diverzity, probiotiky, fakultativními anaeroby a celkovými mastnými kyselinami s krátkým řetězcem [16].
Ačkoli četné studie potvrdily, že antioxidační a anti-aging účinky spojené s VAP zmírňují stárnutí, přesný mechanismus, který je základem této aktivity, zůstává nejasný. V této práci byl proto účinek VAP proti stárnutí hodnocen in vivo u myší pomocí testu Morrisova vodního bludiště (MWM), biochemické analýzy, barvení hematoxylinem-eosinem (H&E) a transmisní elektronové mikroskopie (TEM). Dále jsme hodnotili změny ve střevní mikroekologii u stárnoucích myších modelů léčených VAP pomocí technologie sekvenování genu 16S ribozomální RNA (rRNA). Naším cílem bylo objasnit mechanismus aktivity VAP v kontextu stárnutí a poskytnout teoretický základ pro vývoj nových terapeutických přístupů proti stárnutí.
2. Materiály a metody
2.1 Experimentální materiály
VAP was provided by the Molecular Pharmacology Laboratory, Changchun University of Chinese Medicine. Dgalactose (D-gal) and VE (purity >90 procent) bylo zakoupeno od Shanghai Yuanye Biotechnology Co., Ltd. (Shanghai, Čína). Komerční soupravy pro superoxiddismutázu (SOD), malonaldehyd (MDA), katalázu (CAT) a glutathionperoxidázu (GSH-Px) byly zakoupeny od Nanjing Jiancheng Technology Co., Ltd. (Nanjing, Čína). Všechny chemikálie a činidla byly analytické čistoty.
Video sledovací a analytický systém Morrisova vodního bludiště (MWM) byl zakoupen od Chengdu Taimeng Technology Co., Ltd. (Chengdu, Čína). Transmisní elektronový mikroskop byl zakoupen od Tecnai Corporation (Hillsboro, OR, USA). Vysokovýkonnou sekvenační platformu (MiSeq PE300) poskytla společnost Illumina (San Diego, CA, USA).
2.2 Pokusy na zvířatech
Šedesát zdravých myší ICR (stupeň SPF, polovina samců a polovina samic, vážící 22–26 g) bylo zakoupeno od Changchun Yisi Laboratory Animal Technology Co., Ltd. (certifikát č. SCXK(Ji) -2018-0007). Myši byly chovány v oddělených klecích v 12h cyklech světlo/tma a standardní teplotě (22 ± 2 ◦C), s potravou a vodou poskytnutou ad libitum. Všechny myši byly adaptovány na tyto podmínky po dobu alespoň jednoho týdne před zahájením experimentů. Všechny myši byly rozděleny do pěti skupin, kontrolní, modelová, skupina vitaminu E (VE), skupina s nízkou dávkou VAP (VAP1) a skupina s vysokou dávkou VAP (VAP2). Skupinám s VE, VAP1 a VAP2 byl podáván VE (100 mg/kg), VAP (200 mg/kg) a VAP (400 mg/kg) po dobu 10 dnů, zatímco kontrolní a modelové skupiny dostávaly destilovanou vodu. (stejný objem a stejnou intragastrickou cestou). Počínaje 11. dnem byl kontrolní skupině subkutánně injikován normální fyziologický roztok. D-gal (1000 mg/kg) byl subkutánně injikován do zadní části krku myší v ostatních skupinách a modelové podávání pokračovalo po dobu 60 dnů.

2.3 Morrisovo vodní bludiště
MWM test byl proveden 1 hodinu po podání D-gal v den 57. Stručně řečeno, platforma byla umístěna doprostřed vodního bludiště. Voda byla přidávána na platformu, dokud nepřesáhla 1 cm a byla udržována na přibližně 25 °C. Myši byly trénovány nepřetržitě po dobu 1 týdne a test MWM byl formálně proveden podle standardního pracovního postupu vodního bludiště. Před oficiálním zahájením experimentu byl do vody přidán oxid titaničitý, aby myši nemohly vnímat konkrétní polohu plošiny. Hlavy myší byly obarveny žlutě pro sledování a sběr dat. Software pro analýzu sledování videa ve vodním bludišti Morris zaznamenal dráhu plavání myší, procento doby pobytu ve středním prstenci a procento vzdálenosti pohybu středního prstence.
2.4 H&E barvení
Celé mozky myší byly fixovány ve 4% roztoku paraformaldehydu a zalité v parafínu. Po 24 hodinách byly mozkové tkáně nařezány, zbaveny parafinu, rehydratovány a obarveny H&E. Řezy byly poté pozorovány pod optickým mikroskopem, aby se zaznamenaly patologické změny.
2.5 POLOŽKA
Po perfuzi byly hipokampální tkáně přerušeny, fixovány 2% paraformaldehydovým a 2,5% glutaraldehydovým fosfátovým pufrem, dehydratovány použitím alkoholového gradientu, vyčištěny ethoxypropanem, zality, nakrájeny a obarveny uranylacetátem a citrátem olovnatým. Ultrastruktura hipokampálních neuronů byla pozorována pod transmisním elektronovým mikroskopem.
2.6 Biochemické analýzy
Vzorky myší krve byly odebrány a centrifugovány při 3000 ot./min po dobu 15 minut při 4 °C, poté byl odebrán supernatant. Obsah MDA v séru a stanovení aktivity SOD, GSH-Px a CAT byly všechny provedeny podle pokynů soupravy.
2.7 Profilování mikroflóry vzorků stolice
Celková DNA byla extrahována ze vzorků stolice a použita jako templát pro PCR amplifikaci oblasti V3–V4 bakteriálního genu 16S rRNA. Nezpracovaný soubor dat je uložen v NCBI BioProject PRJNA731623 pod přístupovými čísly BioSample SAMN19291644 až SAMN19291668. Produkty PCR byly kvantitativně analyzovány a bylo provedeno sekvenování genu 16S rRNA pomocí platformy Illumina MiSeq (Illumina, San Diego, USA). Nezpracovaná data jsou založena na minimální délce překrytí 10 bp s maximálním přípustným poměrem nesouladu v oblasti překrytí 0,2 (výchozí). Hodnoty každého vzorku byly spojeny a značky s délkami menšími než 75 procent délky značky po kontrole kvality byly filtrovány. Chiméry (to znamená, že pokud dva rodiče mají sekvenci, která je z více než 80 procent podobná dotazované sekvenci, pak je dotaz posouzen jako chiméra) byly odstraněny, aby se získaly vysoce kvalitní sekvence značek. Výzkumný software (Sonoma, USA) [17] byl použit ke shlukování značek na 97procentní úrovni podobnosti, klasifikaci provozních taxonomických jednotek (OTU), získání klasifikace druhů na základě složení sekvence OTU a vynesení ředění vzorku [18] a křivek Shannonova indexu. . PICRUST (Halifax, CAN) [19] byl použit ke stanovení funkčního genového složení každého vzorku prostřednictvím porovnání informací o druhovém složení podle výsledků sekvenování genu 16S rRNA. Tímto způsobem by mohly být určeny funkční rozdíly mezi různými vzorky nebo skupinami. Množství, cesty, informace EC a množství OTU v kontextu každé funkční kategorie byly získány pomocí databáze Kyoto Encyclopedia of Genes and Genomes [20].
2.8 západní blotování
Celkový protein byl extrahován z mozkové tkáně a pro hodnocení koncentrace proteinu byla použita metoda Coomassie brilantní modři. Poté, po elektroforéze SDS-PAGE, se proteiny přenesly na membránu, která byla poté inkubována s primárními protilátkami proti cílovým proteinům apolipoproteinu E (APOE4), acyl-CoA oxidáze 1 (ACOX1), receptoru aktivovanému proliferátorem peroxisomů (PPAR), karnitin-palmitoyl transferáza-1 A (CPT1A) a glyceraldehyd-3-fosfátdehydrogenáza (GAPDH) přes noc při 4 ◦C. Následně byla membrána promyta a poté inkubována se sekundární protilátkou při teplotě místnosti po dobu 1 hodiny. Po promytí membrány Tris-pufrovaným fyziologickým roztokem a Tween 20 (TBST) byl přidán vylepšený chemiluminiscenční (ECL) roztok. Pro skenování fotografie je použit plně automatický gelový zobrazovací systém (Aplegen, Pleasanton, USA).

2.9 Detekce hladin volných mastných kyselin (FFA) v mozkové tkáni
Byly odebrány mozkové tkáně myší a bylo přidáno vhodné množství normálního fyziologického roztoku. Poté byly vzorky centrifugovány při 4 °C při 3000 otáčkách za minutu po dobu 10 minut a byly odebrány supernatanty. Hladiny FFA v mozkových tkáních byly stanoveny podle instrukcí soupravy.
2.10 Detekce obsahu ATP v mozkové tkáni
Mozkové tkáně myší byly odebrány a lyžovány v poměru mozková tkáň:lyzační pufr 1:5. Poté byly vzorky centrifugovány při 12,000× g při 4 °C po dobu 5 minut a byly odebrány supernatanty. Obsah ATP v mozkových tkáních byl stanoven podle instrukcí soupravy.
2.11 Statistická analýza
Pro analýzu dat byl použit SPSS 19.0 (Chicago, IL, USA). Výsledky jsou vyjádřeny jako průměr ± standardní odchylka (x ± s). K porovnání skupin byl použit studentův t-test a rozdíly byly považovány za významné při P < 0.05 nebo P < 0,01.
3. Výsledky
3.1 Zlepšení kognice, učení a paměti u stárnoucích myší léčených VAP
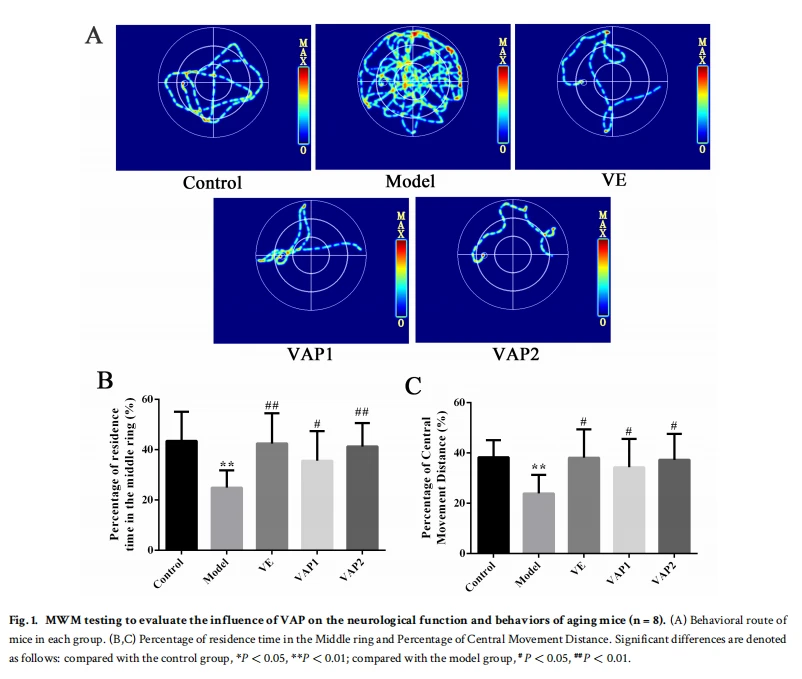
Test MWM spoléhá na instinkt přežití zvířat při hledání únikové platformy a zahrnuje hledání prostorové polohy související s pamětí. Obr. 1 ukazuje reprezentativní stopy myší, kterým byl v poslední den podán test MWM. Diagram trajektorie chování myší modelové skupiny byl složitější a nepravidelný a myši nenašly platformu. Je třeba poznamenat, že diagram trajektorie chování myší ve skupinách VAP1 a VAP2 byl jednoduchý a byla nalezena platforma. Ve srovnání s kontrolní skupinou bylo procento retenčního času v prostředním kroužku a procento vzdálenosti uražené prostředním kroužkem ve skupině Model výrazně sníženo (P < 0.01). Ve srovnání s modelovou skupinou bylo procento retenčního času ve středním prstenci a procento vzdálenosti uražené středním prstencem významně zvýšeno ve skupinách VE, VAP1 a VAP2 (P < 0,05, P < 0,01). Tato zjištění naznačují, že podávání VAP zlepšilo kognitivní schopnosti stárnoucích myší vyvolaných D-gal.
3.2 Ochranný účinek VAP na hipokampální neurony u stárnoucích myší
H&E barvení bylo použito k pozorování patologické morfologie mozkových tkání u stárnoucích myší, aby se prozkoumalo, zda VAP může zlepšit D-gal-indukované neuronální patologické poškození (obr. 2A). Buňky CA1 v hipokampech z kontrolní skupiny byly hojné, s normální buněčnou strukturou, kompletní morfologií a zjevnými jádry. Naproti tomu počet buněk CA1 v hipokampech z modelové skupiny se snížil a vykazoval nepravidelnou morfologii, přičemž pod mikroskopem nebyla pozorována žádná zjevná jadérka. Neurony v oblasti CA1 hippocampu byly relativně normální a nukleární smrštění bylo sníženo ve skupině VE ve srovnání s modelovou skupinou. Je pozoruhodné, že oblast CA1 v hipokampech ze skupin VAP1 a VAP2 byla významně odlišná od oblasti pozorované v modelové skupině a podobná jako u kontrolní skupiny. Struktura byla relativně normální, buňky byly těsně uspořádané a pravidelné a morfologie byla kompletní.
TEM byl dále použit k pozorování ultrastruktury hipokampálních neuronů u stárnoucích myší a k pochopení, zda reverzní účinek VAP na pokles učení a paměti byl spojen s regulací neuronové mikrostruktury v mozku (obr. 2B). Hipokampální neurony vykazovaly intaktní morfologii, rovnoměrnou distribuci chromatinu a hojné organely v cytoplazmě v kontrolní skupině. Při velkém zvětšení byly mitochondrie eliptické, s čirou dvojitou vnější membránou a neporušenými kristami. Naproti tomu neurony v hipokampální oblasti modelové skupiny byly abnormální; byly pozorovány časné apoptotické změny, jako je kondenzace chromatinu; lipofuscinové krvinky byly častější; synaptická struktura byla nejasná; lipidové kapičky byly rozptýleny a byla detekována expanze Golgiho komplexu podobná vezikulám a redukované hrubé endoplazmatické retikulum. Je pozoruhodné, že ve srovnání s modelovou skupinou měly skupiny VAP1 a VAP2 hipokampální neurony, které měly tendenci mít normální strukturu a morfologii, s hladkými jadernými membránami, normálními jadérky a hojnými organelami. Pozoruhodně bylo pozorováno více synapsí, synaptické vezikuly v přední membráně neměly abnormální agregaci, morfologie intracytoplazmatického Golgiho tělíska a mitochondrií byla normální a lipofuscin byl vzácný.
3.3 Účinky VAP na enzymy související s oxidačním poškozením
Negativním efektem OS je produkce volných radikálů v těle, jedné z primárních příčin stárnutí a nemocí (obr. 3). Ve srovnání s kontrolní skupinou byly aktivity SOD, CAT a GSH-Px v séru modelových myší s D-galadem významně sníženy (P < 0.01, P < {{7 }}.{{10}}5) a obsah MDA se výrazně zvýšil (P < 0.05), což naznačuje úspěšné modelování. Ve srovnání s modelovou skupinou byly aktivity SOD, CAT a GSH-Px ve skupině VE významně zvýšeny (P < 0.01, P < 0,05) . Ve srovnání s modelovou skupinou byly významně zvýšeny aktivity SOD a GSH-Px ve skupině VAP1 (P < 0,05, P < 0,01). Naproti tomu CAT byl mírně zvýšen, ale nebyl významně odlišný. Ve srovnání s modelovou skupinou byly aktivity SOD, CAT a GSH-Px ve skupině VAP2 významně zvýšeny (P < 0,05, P < 0,01). Ve srovnání s modelovou skupinou byl obsah sérového MDA u myší ve skupinách VAP1 a VAP2 významně snížen (P < 0,05). Výše uvedené výsledky naznačují, že účinek VAP proti stárnutí souvisí se zvýšením aktivity antioxidačních enzymů v séru u stárnoucích myší a snížením peroxidace lipidů.

3.4 Účinky VAP na složení a diverzitu střevní mikroflóry u myší
Výsledky sekvenování genu 16S rRNA poskytly 1 999 46 0 čtení PE a po filtrování a odstranění chimér bylo získáno 1 776 708 účinných značek. Průměrné délky sekvencí vzorků v kontrolních, modelových, VE, VAP1 a VAP2 skupinách byly 417,2, 416,2, 418,2, 421,0 a 420,4 bp, v daném pořadí. Poměr přečtení se skóre kvality Phred nad 30 (Q30) se pohyboval od 94,15 do 95,71 procenta.
Následně jsme stanovili složení střevní mikroflóry pomocí čtení genu 16S rRNA. Značky získané vysokovýkonným sekvenováním byly seskupeny na úrovni podobnosti 97 procent a byl vytvořen Vennův diagram (obr. 4A). Každá skupina měla 490 OTU a v podstatě neexistovaly žádné specifické OTU na skupinu. Abychom ověřili, zda hloubka sekvenování splňuje požadavky na identifikaci druhů, vynesli jsme pro všechny vzorky křivky Shannona a ředění (obr. 4B, C). Obě křivky ve všech vzorcích byly blízko plató nasycení, což odhalovalo vysoké pokrytí (99 procent). Tato data naznačují, že naprostá většina informací o mikrobiální diverzitě ve vzorcích byla extrahována a že struktura a diverzita bakteriální komunity mohly být přesně určeny.
Alfa diverzita odráží druhovou abundanci (bohatost) a druhovou diverzitu. Shannonovy a Simpsonovy indexy se používají k měření druhové diverzity a jsou ovlivněny abundací druhů ve vzorkovém společenstvu a rovnoměrností druhů (rovnoměrnost společenstva). Čím větší je hodnota Shannonova indexu, tím menší je hodnota Simpsonova indexu, což naznačuje, že druhová diverzita vzorku je vyšší [21]. Výsledky uvedené na obr. 4D neukazují žádné významné rozdíly v hodnotách Shannonova indexu myší flóry mezi skupinami.
Ve srovnání s kontrolní skupinou nemá hodnota Simpsonova indexu modelové skupiny žádný významný rozdíl. Nebyl pozorován žádný významný rozdíl mezi modelovou skupinou a každou léčebnou skupinou. Tyto výsledky neukazují žádný významný rozdíl v diverzitě střevní flóry myší mezi skupinami.
PCA byla provedena na myší střevní flóře (obr. 4E), kde PC1 a PC2 jsou dvě charakteristické hodnoty, které způsobují největší rozdíl mezi vzorky. Výsledky ukázaly, že 32,94 a 19,74 procent míry vlivu připadá na PC1 a PC2, v tomto pořadí. Čím dále jsou body, tím větší je rozdíl. Pět skupin vzorků je seskupeno do tří kategorií, přičemž vzorky modelových skupin jsou rozmístěny v levém horním rohu obrázku, daleko od ostatních skupin. Kontrolní, VE a VAP2 skupiny vykazovaly více překryvů a tři skupiny vzorků byly blízko u sebe. Horní střední část obr. 4E ukazuje, že po intervenci VAP se zlepšila podobnost střevní flóry skupiny myší VAP2 s flórou kontrolních myší.
Rozdíly v množství bakterií v kontrolním modelu, ve skupinách VE, VAP1 a VAP2 byly hodnoceny pro 20 nejlepších rodů (obr. 4F). Početnost skupiny Lachnospiraceae_NK4A136_ a Lactobacillus se mezi kontrolními a modelovými zvířaty lišila, přičemž abundance Lactobacillus v modelové skupině byla významně snížena. Naproti tomu početnost zbývajících rodů byla výrazně zvýšena. Zejména členové Lactobacillus jsou probiotika s anti-aging a protizánětlivými účinky [22, 23]. Proto tyto výsledky nebyly překvapivé. Je pozoruhodné, že množství Lactobacillus bylo významně zvýšeno ve skupinách VAP1 a VAP2 ve srovnání s modelovou skupinou, což naznačuje, že VAP může zvýšit obsah prospěšných bakterií ve střevě a zabránit stárnutí.

【Další informace:george.deng@wecistanche.com / WhatApp:{0}}】