Ergosta-7,9(11),22-trien{4}}ol zachraňuje deficity AD modulací aktivace mikroglie, ale ne oxidačního stresu
Jul 24, 2023
Abstraktní: Ergosta-7,9(11),22-trien-3 -ol (EK100) byl izolován z tchajwanské léčivé houby Antrodia camphorate, která je známá pro svou podporu zdraví a proti účinky stárnutí v lidovém léčitelství. Alzheimerova choroba (AD) je hlavní onemocnění související se stárnutím. Zkoumali jsme účinnost a potenciální mechanismus ergosta-7,9(11),22-trien-3 -olu na symptomy AD. Drosophila s pan-neuronální nadměrnou expresí lidského amyloidu- (A) byla použita jako model AD. Porovnali jsme délku života, motorické funkce, učení, paměť, oxidační stres a biomarkery aktivace mikroglií a zánětu ergosta-7,9(11),22-trien-3 -ol- léčené skupině k těm z neléčené kontroly. Ergosta-7,9(11), léčba 22-trien{26}}olem účinně zlepšila délku života, motorické funkce, učení a paměť modelu AD ve srovnání s neléčenou kontrolou. Biomarkery aktivace mikroglií a zánětu byly sníženy, zatímco všudypřítomná peroxidace lipidů, aktivita katalázy a aktivita superoxiddismutázy zůstaly nezměněny. Závěrem lze říci, že ergosta-7,9(11),22-trien{31}}ol zachraňuje deficity AD tím, že moduluje aktivaci mikroglií, ale ne oxidační stres.
Glykosid cistanche může také zvýšit aktivitu SOD v srdeční a jaterní tkáni a významně snížit obsah lipofuscinu a MDA v každé tkáni, účinně zachycovat různé reaktivní kyslíkové radikály (OH-, H₂O₂ atd.) a chránit před způsobeným poškozením DNA. OH-radikály. Cystanche fenylethanoidové glykosidy mají silnou schopnost vychytávání volných radikálů, vyšší redukční schopnost než vitamín C, zlepšují aktivitu SOD v suspenzi spermií, snižují obsah MDA a mají určitý ochranný účinek na funkci membrány spermií. Polysacharidy Cistanche mohou zvýšit aktivitu SOD a GSH-Px v erytrocytech a plicních tkáních experimentálně senescentních myší způsobených D-galaktózou, stejně jako snížit obsah MDA a kolagenu v plicích a plazmě a zvýšit obsah elastinu. dobrý čisticí účinek na DPPH, prodlužuje dobu hypoxie u senescentních myší, zlepšuje aktivitu SOD v séru a oddaluje fyziologickou degeneraci plic u experimentálně senescentních myší Experimenty prokázaly, že Cistanche má dobrou antioxidační schopnost s buněčnou morfologickou degenerací a má potenciál být lékem k prevenci a léčbě nemocí stárnutí kůže. Zároveň má echinakosid v Cistanche významnou schopnost vychytávat volné radikály DPPH a má schopnost vychytávat reaktivní formy kyslíku a bránit volnými radikály indukované degradaci kolagenu a má také dobrý reparační účinek na poškození aniontů volnými radikály thyminu.

Klikněte na Výhody tablet Cistanche
【Další informace:george.deng@wecistanche.com / WhatApp:{0}}】
Klíčová slova: Alzheimerova choroba; Drosophila; EK100; ergosta-7,9(11),22-vyzkoušeno-3 -ol
1. Úvod
Antrodia camphorata je léčivá houba jedinečná pro Tchaj-wan a byla důležitou ekonomickou plodinou pro tchajwanský zahraniční obchod v 19. století [1]. První tchajwanská historická kniha, Tâi-uân Thong-sú (doslova Obecná historie Tchaj-wanu), zaznamenala domorodé lékařské použití Antrodia camphorate, včetně eliminace patogenů, „zlepšení zdraví“, „osvěžení krve“, „detoxikace alkoholu“, „ ochrana jater“ a „anti-aging“ [2–4]. Vzhledem k tomu, že v důsledku stárnutí čelíme globální zdravotní výzvě [5], je vědecká studie domorodé medicíny pro využití znalostí proti stárnutí klíčová.
Mezi hlavními nemocemi souvisejícími se stárnutím, jako je makulární degenerace, ateroskleróza, rakovina a mrtvice, je Alzheimerova choroba (AD) tvrdým oříškem kvůli svému nepolapitelnému patologickému mechanismu. Účinná nemoc modifikující léčba AD stále není k dispozici [6]. Současné patologické hypotézy AD zahrnují, aniž by byl výčet omezující, snížení cholinacetyltransferázy, glutamátovou excitotoxicitu, agregaci amyloidu beta (A ), fosforylaci tau, rezistenci na inzulín v mozku [7] a změny střevního mikrobiomu [8]. Nicméně bez ohledu na to, o jaký druh příčin spouštějících AD se jedná, jsou oxidační stres a aktivace zánětlivých mikroglií běžnými příznaky neurodegenerace AD [9,10]. Je zajímavé, že neurozánět a oxidační stres jsou vzájemně související jevy, které jsou pozorovány jak u AD, tak předpokládané u patologie AD. Na jedné straně senilní plaky ukládání A spouštějí zánětlivé reakce, aktivaci mikroglií, uvolňování cytokinů a astrocytózu, což vede k nežádoucím následkům, jako je progresivní poškození neuronů a nakonec kognitivní dysfunkce. Aktivace imunitních odpovědí může zpočátku bojovat proti invazním patogenům s A nebo eliminovat nadměrné usazeniny A; tento proces však nevyhnutelně produkuje reaktivní formy kyslíku (ROS), které mohou způsobit poškození neuronů v mikroprostředí. Na druhé straně by A mohla způsobit ROS způsobem nezávislým na zánětu. Například A byl nalezen v mitochondriálních membránách AD posmrtně a mohl vstoupit do mitochondrií, způsobit narušení elektronového transportního řetězce (ETC) a vést k tvorbě ROS. Zvýšená ROS může naopak vyvolat uvolňování cytokinů a iniciovat zánět [7,9,10]. Proto mohou být antioxidační a protizánětlivé molekuly potenciálními terapeutiky pro AD.
Antrodia camphorate, zvláště jedna ze sloučenin ergosta-7,9(11),22-trien-3 -ol (také známý jako EK100) ponořených v celém vývaru, vykazovala silné antioxidační a antioxidační účinky. -zánětlivé aktivity [11–13]. Dále Chang a kol. [14] prokázali, že antrochinonol, další sloučenina izolovaná z fermentovaného mycelia Antrodia camphorate, zlepšuje učení a paměť u AD myšího modelu se sníženou astrogliózou a oxidačním stresem. Příčinný vztah mezi sníženou astrogliózou a oxidačním stresem při léčbě antrochinonolem však nemohl být potvrzen a snížení oxidačního stresu bylo postulováno jako zprostředkující faktor [14]. Bezpečnost EK100 byla již dříve testována podle pokynů 407 Organizace pro hospodářskou spolupráci a rozvoj (OECD) na myším modelu 10 a 20 mg/kg/den [15]. Proto jsme v této studii přijali přibližně ekvivalentní koncentrace volného krmení pro ovocné mušky.
Model octomilky (Drosophila melanogaster) nadměrné exprese A 42 je dobře zavedeným zvířecím modelem AD [16] s charakteristickými příznaky AD včetně zkrácené délky života, poruch učení a motoriky [17], oxidačního stresu [18] a aktivace mikroglií. [19]. Modelování výzev AD u Drosophila melanogaster nezahrnuje žádnou aktivitu BACE u Drosophila a rozdíly mezi pohlavími, které vykazují závažnější příznaky u mužských souborů. Ty nejsou u lidské AD pozorovány [20]. Proto jsme přijali lidský A 42 peptid exprimující mouchy do modelu AD, kde produkce A 42 nevyžaduje žádnou BACE aktivitu. V této studii jsme testovali, zda EK100 zlepšuje symptomy AD, a co je důležitější, zda modulace oxidačního stresu a astrogliózy jsou nezbytné pro zlepšení AD.
2. Výsledky
2.1. Ergosta-7,9(11),22-trien-3 -ol Zachráněné přežití a lezení na AD Drosophila
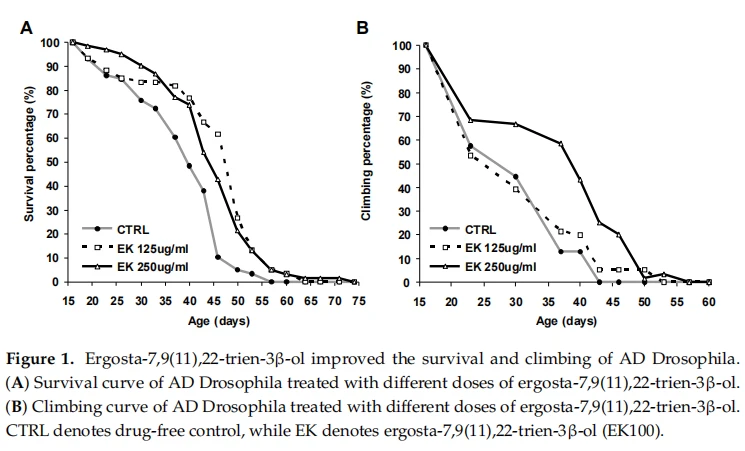
Diagnóza AD je spojena se zkrácením střední délky života [21] a téměř polovina pacientů s AD trpí poruchami aktivity [22]. Proto jsme testovali, zda extrakt Antrodia camphorata ergosta-7,9(11),22-trien{6}}ol (EK100) zlepšuje přežití a schopnost šplhání AD Drosophila model. Zjistili jsme, že léčba ergosta-7,9(11),22-trien{14}}olem v dávce 125 nebo 250 µg/ml významně zlepšila přežití AD Drosophila (p < 0,01) (obrázek 1A a doplňková tabulka S1), ale že pouze vysoká dávka (250 ug/ml) zlepšila šplhání AD Drosophila (obrázek 1B). Protože deficity přežití a mobility jsou klinickými symptomy AD, byla v následujících výzkumech použita koncentrace 250 ug/ml, která zlepšila oba symptomy.
2.2. Ergosta-7,9(11),22-trien-3 -ol Zachráněné učení a hodinová paměť AD Drosophila
Dále jsme testovali, zda léčba ergosta{{0}},9(11),22-trien-3 -olem zlepšuje poruchy učení a paměti, což je charakteristický příznak AD. AD mouchy byly ošetřeny ergostou- 7,9(11),22-trien-3 -olem v koncentraci 250 ug/ml po dobu 14 dnů a podrobeny testům učení a paměti pomocí T-bludiště. Jak je znázorněno na obrázku 2A, ve srovnání s kontrolou divokého typu (AD(-)/EK(-)), schopnost učení kontroly AD (AD(plus)/EK(-)) významně poklesla (p < 0,01), zatímco Léčba ergosta-7,9(11),22-trien{22}}ol významně zlepšila schopnost učení AD (p < 0,05). Kromě toho ergosta-7,9(11), léčba 22-trien-3 -olem, také zlepšila pokles jednohodinové paměti AD (obrázek 2B).

2.3. Ergosta-7,9(11),22-vyzkoušeno-3 -modulovaná mikrogliální aktivace v AD Drosophila
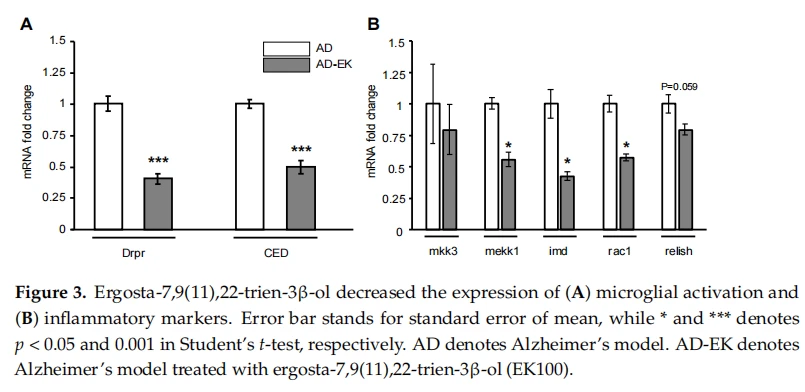
Dále jsme testovali, zda léčba ergostou-7,9(11),22-trien-3 -olem snižuje mikrogliální aktivaci u AD. U AD jsou aktivované mikroglie doprovázeny fagocytózou a neurodegenerací [23]. U Drosophila je markerem pohlcení buněk mikroglie, a tedy markerem mikrogliální aktivace, exprese draper (Drpr) a downstream CED [24]. Po ošetření ergostou-7,9(11),22-trien{11}}olem byly AD mouchy vyřazeny a RNA byla extrahována z hlavy much pro RT-qPCR. Jak je znázorněno na obrázku 3A, oba Drpr byly významně down-regulovány u AD Drosophila léčených ergosta-7,9(11),22-trien-3 -olem ve srovnání s neléčenou AD. To znamená, že ergosta-7,9(11),22-trien-3 -ol snížil mikrogliální aktivaci u AD Drosophila. Navíc ergosta-7,9(11), léčba 22-trien{30}}olem, také snížila zánět CNS, jak se ukázalo při down-regulaci genů souvisejících se zánětem (obrázek 3B) .
2.4. Ergosta-7,9(11),22-vyzkoušený-3 -ol nemoduloval všudypřítomný oxidační stres u AD Drosophila
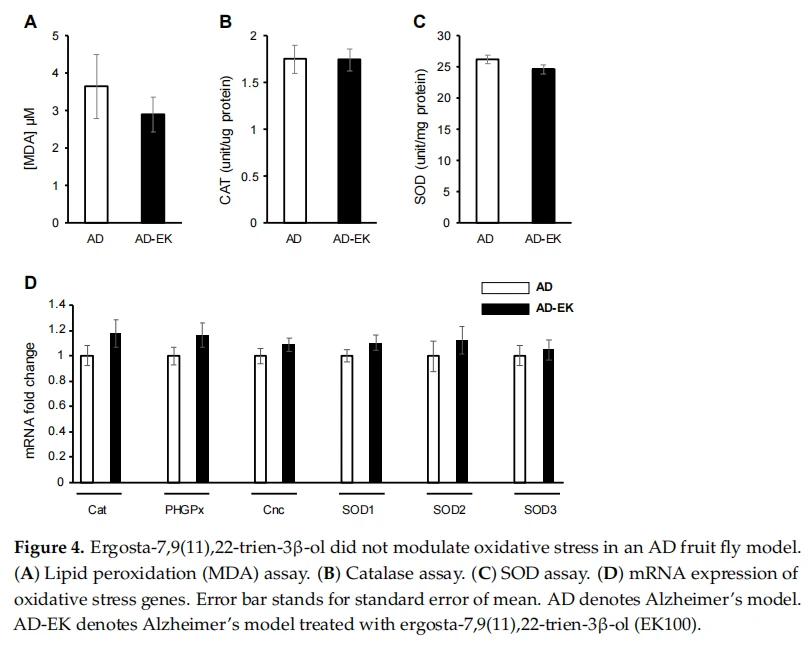
Dále jsme testovali, zda je modulace všudypřítomného – tedy celého těla – oxidačního stresu nezbytná pro ergosta-7,9(11),22-trien-3 -ol k záchraně AD. Ergosta-7,9(11),22-vyzkoušená- 3 - léčba nezměnila peroxidaci lipidů (obrázek 4A), aktivitu katalázy (obrázek 4B), aktivitu superoxiddismutázy (obrázek 4C) nebo exprese genů souvisejících s oxidačním stresem (obr
3. Diskuse
Tato studie uvádí účinnost a možný základní mechanismus ergosta{0}},9(11),22-try-3 -olu, extraktu z Antrodia camphorate, pro modifikaci symptomů AD pomocí Drosophila model s nadměrnou expresí člověka-A. Ergosta-7,9(11),22-trien{10}}ol účinně zlepšil učení a paměť a prodloužil životnost pacientů s AD. Kromě toho byly sníženy biomarkery aktivace mikroglií a zánětu, zatímco všudypřítomný oxidační stres byl nezměněn.
Existuje mnoho zdrojů oxidačního stresu u AD, včetně, ale bez omezení na, aktivace vrozené imunity – například akumulace A, narušení mitochondrií A, hyperfosforylovaný tau a malmetabolismus kovů jsou také zdroje [25]. Přestože se zánět a oxidační stres mohou vzájemně indukovat, můžeme předpokládat, že k jejich synchronním změnám dochází pouze za okolností, kdy ostatní zdroje oxidačního stresu zůstávají konstantní. To však není případ této studie. Snížení vrozené imunity, zejména aktivace mikroglie, současně zeslabuje její příspěvek k clearance A, což může vést k akumulaci A. Je zajímavé, že samotná akumulace spouští produkci oxidačního stresu mnoha způsoby. EK1000 snižující mikrogliální aktivaci a zánětlivé reakce tedy mohou částečně chránit neurony před imunitními útoky mimo cíl, ale zaplatí cenu za útlum A clearance. Výsledek této studie tedy může odrážet omezení strategie cílení na mikroglie, alespoň v modelu AD Drosophila.
Vrozený imunitní systém zprostředkovaný mikrogliemi je popisován jako dvousečná zbraň u neurodegenerativních onemocnění, zejména AD [26,27]. Aktivované mikroglie se snaží odstranit toxické patogeny, jako je A , ale nevyhnutelně způsobují neuronální poškození v mikroprostředí. Převaha 250 ug/ml EK100 během 35 dnů může znamenat, že strategie snižování aktivace mikroglií je omezena patologickým stádiem, alespoň v případě modelu AD vrtule. Kromě toho se významné snížení biomarkerů pro mikrogliální aktivaci a zánětlivou odpověď nepodařilo převést do podobně významného zlepšení přežití a funkce CNS by mohla být částečně vysvětlena rysem mikroglie s dvousečným mečem. To znamená, že aktivace mikroglie není jediným ani dominujícím faktorem progrese AD. Snížená mikrogliální aktivace také naznačuje, že degradace nadměrně exprimovaného A byla částečně vypnuta v modelu vrtule, což může také vysvětlit vyšší mortalitu pro vyšší koncentraci EK100 ve věku 35 až 52 dnů.
Antrochinonol, další extrakt z Antrodia camphorate, byl popsán pro svou účinnost při léčbě AD myší, pro které bylo snížení oxidačního stresu postulováno jako zprostředkující faktor [14]. To může znamenat, že antrochinonol a ergosta-7,9(11),22-trien{5}}ol zlepšují symptomy AD prostřednictvím nezávislých cest, ať už zprostředkovávají oxidační stres, či nikoli. Bylo by proto zajímavé otestovat, zda by společná léčba antrochinonolem a ergosta-7,9(11),22-trien-3 -olem měla synergický účinek na zlepšení AD.
Pro časnou fázi AD je hlavním zaměřením návrhu léku eliminace ukládání A (jako například v nedávno schválené monoklonální protilátce aducanumab [28], a to navzdory její kontroverzi ohledně minimálních klinických přínosů a neúčinnosti v jedné ze dvou klinických studií fáze III [29]), nebo pokusy o zvýšení mikrogliálního vychytávání A [30–32]. U středních nebo pokročilých stadií AD však nadměrná aktivace mikroglie neurodegeneraci naopak zhoršuje [33], a proto jsou nutné alternativní terapeutické strategie.
4. Materiály a metody
4.1. Údržba muškařských zásob a měření životnosti
A transgenní kmen Drosophila H29.3/CyO byl získán z [16] a byl křížen s w(CS10) po šest generací. Pan-neurální řídící linie elav-GAL4c155 byla křížena s w(CS10) po šest generací. Jako standardní zásoba byla použita linie w1118 s bílým okem (Bloomington Drosophila Stock Center #3605) překřížená s linií Canton S (Bloomington Drosophila Stock Center # 64349) 10krát (w (CS10)). Pan-neurální řídící linie elav-GAL4c155 byla získána z Bloomington Drosophila Stock Center (#458). Genotyp experimentálních much – tj. model AD – byl [elav; H29.3/ plus ], který byl vybrán z F1 potomků bez CyO markeru. Mouchy byly udržovány ve standardním médiu kukuřičné mouky při 25 ◦C v 12hodinovém cyklu světlo-tma. Pro T-bludiště se vynořující [elav; H29.3/plus] byly odebrány mouchy (obě pohlaví smíšené a ne panenské) a kultivovány s ošetřením EK100 nebo bez něj až do d14 po vzejití. Pro přežití, lezení a RT-qPCR byly použity pouze samci much. Vzorky RNA byly shromážděny v d30 po objevení, kdy jak křivka délky života, tak křivka stoupání vykazovaly významnou separaci ve srovnání s neošetřeným modelem AD.
Při analýze délky života bylo dvacet až třicet much vychováno v lahvičce s krmivem s nebo bez CS; pro každé ošetření byly připraveny alespoň čtyři lahvičky. Lahvičky s jídlem byly vyměňovány každé 2 až 3 dny a v té době byly počítány mrtvé mouchy. V každém pokusu byla provedena alespoň tři replikace. Procento přežití je definováno jako počet živých much dělený celkovým počtem much na začátku testu.
4.2. Ergosta-7,9(11),22-trien-3 -ol (100 Ek)
Ergosta-7,9(11),22-trien-3 -ol byl extrahován z laskavého daru od Antrodia camphorata, jak bylo popsáno dříve [34]. Ergosta-7,9(11),22-trien{10}}ol tvoří při pokojové teplotě prášek světle žluté barvy. Zásobní roztok byl připraven v koncentraci 6,25 mg/ml v EtOH těsně před použitím. Pro testy životnosti a anti-geotaxi byly konečné koncentrace 125 a 250 ug/ml. Pro testy paměti učení a genové exprese byla konečná koncentrace 250 ug/ml. Molekulová hmotnost EK100 je 396,65. Odpovídající molární koncentrace jsou tedy 315 nebo 630 uM, v daném pořadí. Mouchy byly ošetřeny dvěma dávkami EK100 s konečnými koncentracemi 125 a 250 ug/ml přimíchanými v potravě krmením Ad libitum. Kontrolní krmivo obsahovalo stejné množství rozpouštědla EtOH jako experimentální skupiny s konečnou koncentrací EtOH 3 % obj./obj. Léčba začala od objevení se až do okamžiku sběru dat každého testu. Pro test přežití a lezení byla léčba podávána po celou dobu života. Počet much pro každou replikaci byl popsán v části metody každého testu. Také jsme testovali testy životnosti s ošetřenými/neléčenými muškami divokého typu, abychom zajistili bezpečnost ergosta-7,9(11),22-trien-3 -olu v modelech mušek (doplňkový obrázek S1 ).
4.3. Antigeotaxní testy
Tento protokol je založen na dříve publikované metodě [35] s některými modifikacemi. Stručně řečeno, jako geotaxický aparát byla použita průhledná válcová plastová lahvička o průměru 2,5 cm a výšce 9,5 cm (delší bude v pořádku, ale bude obtížnější s ní manipulovat). Dno lahvičky bylo potaženo jedinou vrstvou mouchy jako polštářem. Značka 5 cm nad polštářem byla připevněna k vnějšímu povrchu lahvičky. Druhý konec lahvičky byl otevřený a odtud se nakládaly mouchy. Vzhledem k tomu, že test byl prováděn současně s testem přežití, počet naložených much byl identický s těmi, které v daném okamžiku přežily. Mouchy byly vloženy do lahvičky; vršek byl uzavřen víčkem a dno lahvičky bylo opakovaně (po dobu dvou sekund) naráženo na tvrdý povrch, na kterém stála (v tomto případě laboratorní lavice). Klepání bylo dost silné, aby mouchy vylekalo a přimělo je lézt po stěnách lahvičky, ale ne tak silné, aby jim fyzicky ublížilo. Celý proces byl nahráván na video po dobu 18 sekund, přičemž počet much šplhajících nad značku 5 cm byl zaznamenán a vyjádřen v procentech pro každou skupinu. Počítal se počet mušek, které přelezly značku 5 cm. Pro každou skupinu byly provedeny čtyři replikace. Procento šplhací schopnosti je definováno jako počet šplhajících much dělený celkovým počtem šplhajících na začátku testu. Schopnost šplhání byla testována také u ošetřených/neléčených much divokého typu, aby byla zajištěna bezpečnost ergosta-7, 9 (11), 22-trien-3 -ol v modelech mušek (doplňkový obrázek S2) .
4.4. Platforma učení a paměti Drosophila (T-Maze)
Aby bylo možné pozorovat učení a paměť Drosophila, bylo nejprve umístěno asi 100 much do horní měděné komory, která může být napájena elektrickým napětím a poskytnout mouchám elektrický šok. Mouchy byly poprvé dodány v zápachu 1 (MCH) spolu s elektrickými šokovými vlnami. Poté byly mušky doručeny zápach 2 (OCT) bez elektrických výbojových vln. Po nácviku byly mušky přemístěny do prostoru níže, ve kterém byly dvě otevřené strany zásobeny buď pachem 1 nebo pachem 2, resp. Pozorováním směru pohybu much lze odhadnout vychýlení zápachu 2 oproti zápachu 1 pomocí indexu výkonnosti (PI), definovaného jako rozdíl v počtu much mezi dvěma pachy dělený celkovým počtem much. Výkonnostní index představuje schopnost učení a paměti Drosophila [36]. Další skupina much byla kondicionována obráceným párováním pachů tak, že každý pach sloužil jednou jako elektrický šok plus a jednou jako elektrický šok -. PI těchto dvou testů byly zprůměrovány jako konečné PI jednoho replikátu. "1 h-paměť" byla testována po 1 h odstupu od tréninku, zatímco "učení" bylo naopak testováno po 1,5 min odstupu od tréninku. Také jsme testovali vyhýbání se MCH a OCT mouch AD s ošetřením EK100 nebo bez něj, abychom zajistili, že ošetření způsobí zkreslení proti averzivním pachům (doplňkový obrázek S3).
4.5. Kvantitativní PCR
Hlavy a těla byly odděleny před extrakcí RNA. Pro jeden replikát byly mouchy anestetizovány CO2; shromážděno, 100 najednou, do Eppendorfových zkumavek; a poté ponořením do kapalného dusíku na 1 min., aby tělesa zkřehla. Výsledné zmrazené mrtvoly byly poté naloženy na stohy sítových třepaček (Bunsekifurui, č. 40 a č. 25) a míchány. Těla se rozpadla a byla roztříděna podle velikosti ok síta do dvou samostatných frakcí: "hlavy" a "těla". Celková RNA byla extrahována pomocí RNeasy Mini kit (Qiagen, Düsseldorf, Německo) a poté použita pro syntézu cDNA pomocí VersoTM cDNA Synthesis Kit (Thermo Scientific, Waltham, MA, USA). Hladiny exprese RNA zkoumaných genů byly kvantifikovány pomocí PCR v reálném čase (Applied Biosystems 7700, Thermo Scientific, Waltham, MA, USA) s Maxima SYBR Green qPCR Master Mix (Thermo Scientific, Waltham, MA, USA). Výsledky byly normalizovány na relativní množství Gapdh nebo Rpl32. Použité primery jsou uvedeny níže. Gapdh: 50 -GAAAAAAGCGGCAGTCGTAAT-30 a 50 -AATTCCGATCTTCGACATGG-30 ; Drpr: 50 -TGTGATCATGGTTACGGAGGAC-30 a 50 -CAGCCGGGTGGGCAA-30; CED: 50 - CGTTTACAAGGAGCGACT-30 a 50 -TTCCCAGATTGAAGAGCAGG-30; Kočka: 50 -TGACT ACAAAAACTCCCAAACG-30 a 50 -TTGATTCCAATGGGTGCTC-30 ; PHGPx: 50 -TGACA TCGGCGAGGTGT-30 a 50 -CGGTCTGCTTGGCCTTTA-30 ; Cnc: 50 -GCCAACTATGGTGG TGGAGT-30 a 50 -ACGCTGCGATTCAGACG-30 ; SOD1: 50 -GTCGACGAGAATCGTCAC CT-30 a 50 -GGAGTCGGTGATGTTGACCT-30 ; SOD2: 50 -AAATTTCGCAAACTGCAAGG- 3 0 a 50 -GGTCGCCATTTGTTGCTATT-30 ; SOD3: 50 -TCAGCATGGGTGCTCACTAT-30 a 50 -TAATGCCCGTGGAGTTGG-30 ; mkk3: 50 -CCGCTACCCATACGACAAT-30 a 5 0 -GAATTCCGGCGAAAATGT-30 ; mekk1: 50 -TTTAACGGCAGTGGAACTGT-30 a 50 - TGCATCTGCAACTGCTCAC-30 ; imd: 50 -AGATCGACCAGGCCATAATC-30 a 50 -AATCC ACTGGAGCAACAGC-30; rac1: 50 -CCGTGTTCGACAACTACTCG-30 a 50 -AGTCGGTCG TAGTCCTCCTG-30; vychutnat si: 50 -GCCATACTCCCTTGGAATTG-30 a 50 -TCTCCCTTCTCCG GATACAC-30 ; Rpl32: 50 -CGGATCGATATGCTAAGCTGT-30 a 50 -CGACGCACTCTGTTG TCG-3.
4.6. Testy oxidačního stresu
Tři replikáty peroxidace lipidů, aktivity katalázy a aktivity superoxiddismutázy byly měřeny pomocí BIOXYTECH LPO-586 (OxisResearch, OXIS International, Beverly Hills, CA, USA), soupravou Catalase Assay Kit (Cayman Chemical, Ann Arbor, MI , USA) a Superoxide Dismutase Assay Kit (Cayman), v tomto pořadí, podle pokynů výrobce. Stručně, aktivita SOD byla hodnocena měřením dismutace superoxidových radikálů generovaných xantinoxidázou dodávanou v soupravě a byla detekována transformací tetrazoliové soli na formazanové barvivo, poté kvantifikována absorbancí při 440–460 nm. Aktivita CAT byla hodnocena měřením tvorby formaldehydu z methanolu v přítomnosti H2O2 katalyzovaného CAT, detekovaného chromogenním 4-amino-3- hydrazino-5-merkapto-1 dodanou soupravou ,2,4-triazol, poté kvantifikován absorbancí při 540 nm. Aktivita peroxidace lipidů byla hodnocena měřením rozkladu peroxidů polynenasycených mastných kyselin na malonaldehyd (MDA) a 4-hydroxyalkenaly, detekované chromogenním N-methyl-2-fenylindolem dodaným v soupravě, poté kvantifikováno absorbancí při 586 nm. Pro testy SOD, Cat a LPO byl počet celých homogenizovaných much v každém replikátu 50, 50 a 100, v daném pořadí.
4.7. Statistická analýza
Význam rozdílu mezi křivkami přežití a křivkami stoupání u skupin léčených ergostou-7,9(11),22-trien-3 -olem a kontrolních skupin byl posuzován podle log-rank (Mantel– Cox) a testy Gehan–Breslow–Wilcoxon. Význam rozdílu mezi výkonnostním indexem učební paměti u ergosta-7,9(11),22-trien{10}}léčených a kontrolních skupin byl posuzován Studentovým t-testem.
5. Závěry
Ověřili jsme, že ergosta-7,9(11),22-trien{4}}ol (EK100) z Antrodia camphorate zlepšuje přežití, učení a paměť v modelu AD Drosophila se sníženými biomarkery aktivace mikroglií a zánětu. Navíc k úpravě symptomů nedošlo prostřednictvím všudypřítomného snížení oxidačního stresu, což znamená, že ergosta-7,9(11) a 22-trien{10}}ol zlepšují symptomy AD různými cestami k jinému Antrodia camphorate extrakt, antroquinonol. EK100 účinně snižoval mikrogliální aktivaci a zánět, což může pomoci zvrátit typické kognitivní deficity spojené s AD, jako jsou deficity učení a paměti.
Doplňkové materiály:Následující jsou k dispozici online. Obrázek S1: Přežití much divokého typu léčených EK100; Obrázek S2: Lezení na mouchy divokého typu ošetřené EK100; Obrázek S3: Averzivní vyhýbání se zápachu much AD ošetřených EK100; Tabulka S1: Statistika křivek přežití.
Příspěvky autora:H.-PL, Y.-HK a W.-YL navrhli experimenty. Y.-HK se podílel na přípravě EK100. JC, L.-ZC, M.-SC, L.-WS a T.-NC provedly experimenty. Na přípravě rukopisu se podíleli všichni autoři. Všichni autoři si přečetli publikovanou verzi rukopisu a souhlasí s ním.
Financování: Tato práce byla podpořena granty Ministerstva vědy a technologie Tchaj-wanu (MOST 108-2320-B-039-031-MY3, MOST 109-2314-B-039-030, MOST 110-2314- B-039-009), Čínská lékařská univerzita a nemocnice (CMU109-MF-85, CMU108-MF-68, CMU108-MF{{12 }}, CMU109- AWARD-02 a DMR-109-150) az programu Featured Areas Research Center Program v rámci Higher Education Sprout Project Ministerstva školství (MOE) na Tchaj-wanu (CMRC-CHM-2-1).
Prohlášení institucionální revizní komise:Nelze použít.
Prohlášení o informovaném souhlasu:Nelze použít.
Prohlášení o dostupnosti dat:Data použitá k podpoře zjištění této studie jsou zahrnuta v článku.
Střet zájmů:Y.-HK je jedním z vynálezců, ale není nabyvatelem patentu US-9757393-B2 s názvem „Deriváty ergostatrienu-3- -olu z aniridia camphorate a jejich antiglykemické, antihyperlipidemické a snižující využití jaterního tuku“. Jiní autoři prohlašují, že nemají žádné konkurenční zájmy. Investoři nehráli při návrhu studie žádnou roli; při shromažďování, analýzách nebo interpretaci dat; v psaní rukopisu, nebo v rozhodnutí o zveřejnění výsledků.
Vzorová dostupnost:Vzorky sloučenin jsou dostupné u autorů.
Reference
1. Davidson, JW Ostrov Formosa, minulost a současnost: Historie, lidé, zdroje a obchodní vyhlídky. Čaj, kafr, cukr, zlato, uhlí, síra, ekonomické závody a další produkce; Macmillan & Company: New York, NY, USA, 1903.
2. Tsai, Z.; Liaw, S. Použití a účinek Ganodermy; Sheng-Yun Publishers, Inc.: Taichung, Tchaj-wan, 1985; s. 116–117.
3. Chen, C.-J. Studie o kultivaci pevných látek a bioaktivitě Antrodia camphorata. Fung. Sci. 2001, 16, 65–72.
4. Geethangili, M.; Tzeng, Y.-M. Přehled farmakologických účinků Antrodia camphorate a jeho bioaktivních sloučenin. Doplněk založený na důkazech. Alternativní. Med. 2011, 2011, 212641. [CrossRef] [PubMed]
5. Ogura, S.; Jakovljevic, MM Globální stárnutí populace-zdravotní péče, sociální a ekonomické důsledky. Přední. Veřejné zdraví 2018, 6, 335. [CrossRef] [PubMed]
6. Cummings, J.; Lee, G.; Ritter, A.; Zhong, K. Vývoj léků na Alzheimerovu chorobu: 2018. Alzheimerův dement. Přel. Res. Clin. Interv. 2018, 4, 195–214. [CrossRef] [PubMed]
7. Sharma, P.; Srivastava, P.; Seth, A.; Tripathi, PN; Banerjee, AG; Shrivastava, SK Komplexní přehled mechanismů patogeneze zapojených do Alzheimerovy choroby a potenciálních terapeutických strategií. Prog. Neurobiol. 2019, 174, 53–89. [CrossRef] [PubMed]
8. Sochočka, M.; Donskow-Łysoniewska, K.; Diniz, BS; Kurpas, D.; Brzozowska, E.; Leszek, J. Změny střevního mikrobiomu a zánětem řízená patogeneze Alzheimerovy choroby – kritický přehled. Mol. Neurobiol. 2019, 56, 1841–1851. [CrossRef]
9. Agostinho, P.; A Cunha, R.; Oliveira, C. Neurozánět, oxidační stres a patogeneze Alzheimerovy choroby. Curr. Pharm. Des. 2010, 16, 2766–2778. [CrossRef]
10. Galasko, D.; Montine, TJ Biomarkery oxidačního poškození a zánětu u Alzheimerovy choroby. Biomark. Med. 2010, 4, 27–36. [CrossRef]
11. Kuo, Y.-H.; Lin, T.-Y.; Vy, Y.-J.; Wen, K.-C.; Sung, P.-J.; Chiang, H.-M. Protizánětlivé a antifotopoškozující účinky ergostatrienu-3 -olu izolovaného z Antrodia camphorata na bezsrstou myší kůži. Molekuly 2016, 21, 1213. [CrossRef]
12. Chao, T.-Y.; Hsieh, C.-C.; Hsu, S.-M.; Wan, C.-H.; Lian, G.-T.; Tseng, Y.-H.; Kuo, Y.-H.; Hsieh, S.-C. Ergostatrien-3 -ol (EK100) od Antrodia camphorata zmírňuje oxidační stres, záněty a poškození jater in vitro a in vivo. Předchozí Nutr. Food Sci. 2021, 26, 58. [CrossRef]
13. Tsai, T.-C.; Tung, Y.-T.; Kuo, Y.-H.; Liao, J.-W.; Tsai, H.-C.; Chong, K.-Y.; Chen, H.-L.; Chen, C.-M. Protizánětlivé účinky Antrodia camphorata a její aktivní sloučeniny, Ergostatrien{10}}ol, v modelu ischemie myší kůže. FASEB J. 2015, 29, LB444.
14. Chang, W.-H.; Chen, MC; Cheng, IH Antroquinonol snižuje hladiny amyloidu v mozku a zlepšuje prostorové učení a paměť u transgenního myšího modelu Alzheimerovy choroby. Sci. rep. 2015, 5, 1–12. [CrossRef] [PubMed]
15. Chen, Y.-M.; Sung, H.-C.; Kuo, Y.-H.; Hsu, Y.-J.; Huang, C.-C.; Liang, H.-L. Účinky Ergosta-7, 9 (11), 22-trien-3 -ol z Antrodia camphorate na biochemický profil a výkon při cvičení myší. Molekuly 2019, 24, 1225. [CrossRef]
16. Finelli, A.; Kelkar, A.; Song, H.-J.; Yang, H.; Konsolaki, M. Model pro studium toxicity vyvolané Alzheimerovou chorobou A 42- u Drosophila melanogaster. Mol. Buňka. Neurosci. 2004, 26, 365–375. [CrossRef] [PubMed]
17. Ping, Y.; Hahm, E.-T.; Waro, G.; Song, Q.; Vo-Ba, D.-A.; Licursi, A.; Bao, H.; Ganoe, L.; Finch, K.; Tsunoda, S. Spojení 42-navozené hyperexcitability s neurodegenerací, poruchami učení a motoriky a kratší životností v modelu Alzheimerovy choroby. PLoS Genet. 2015, 11, e1005025. [CrossRef] [PubMed]
18. Rival, T.; Page, RM; Chandraratna, DS; Sendall, TJ; Ryder, E.; Liu, B.; Lewis, H.; Rosahl, T.; Hider, R.; Camargo, L. Fenton chemie a oxidační stres zprostředkovávají toxicitu -amyloidního peptidu v modelu Drosophila Alzheimerovy choroby. Eur. J. Neurosci. 2009, 29, 1335–1347. [CrossRef]
19. Ray, A.; Speese, SD; Logan, MA Glial draper zachraňuje toxicitu v modelu Drosophila Alzheimerovy choroby. J. Neurosci. 2017, 37, 11881–11893. [CrossRef]
20. Jeibmann, A.; Paulus, W. Drosophila melanogaster jako modelový organismus mozkových chorob. Int. J. Mol. Sci. 2009, 10, 407–440. [CrossRef] [PubMed]
21. Brookmeyer, R.; Corrada, MM; Curriero, FC; Kawas, C. Přežití po diagnóze Alzheimerovy choroby. Oblouk. Neurol. 2002, 59, 1764–1767. [CrossRef]
22. Lam, LC; Tang, W.; Leung, V.; Chiu, HF Behaviorální profil Alzheimerovy choroby u čínských starších lidí – validační studie čínské verze hodnotící stupnice behaviorální patologie Alzheimerovy choroby. Int. J. Geriatr. Psych. 2001, 16, 368–373. [CrossRef] [PubMed]
23. Schwab, C.; McGeer, PL Zánětlivé aspekty Alzheimerovy choroby a dalších neurodegenerativních poruch. J. Alzheimer's Dis. 2008, 13, 359–369. [CrossRef] [PubMed]
24. MacDonald, JM; Pláž, MG; Porpiglia, E.; Sheehan, AE; Watts, RJ; Freeman, MR Receptor pohlcení mrtvoly buněk Drosophila Draper zprostředkovává gliální clearance přerušených axonů. Neuron 2006, 50, 869–881. [CrossRef]
25. Chen, Z.; Zhong, C. Oxidační stres u Alzheimerovy choroby. Neurosci. Býk. 2014, 30, 271–281. [CrossRef]
26. Stankovič, ND; Teodorczyk, M.; Ploen, R.; Zipp, F.; Schmidt, MH Interakce mikroglie – krevní cévy: Dvojsečný meč v mozkových patologiích. Acta Neuropathol. 2016, 131, 347–363. [CrossRef]
27. Konishi, H.; Kiyama, H. Mikrogliální signalizace TREM2/DAP12: Dvojsečná zbraň při nervových onemocněních. Přední. Buňka. Neurosci. 2018, 12, 206. [CrossRef] [PubMed]
28. Sevigny, J.; Chiao, P.; Bussière, T.; Weinreb, PH; Williams, L.; Maier, M.; Dunstan, R.; Salloway, S.; Chen, T.; Ling, Y. Protilátka aducanumab redukuje plaky A u Alzheimerovy choroby. Příroda 2016, 537, 50–56. [CrossRef]
29. Lalli, G.; Schott, JM; Hardy, J.; De Strooper, B. Aducanumab: Nová fáze ve vývoji léčby Alzheimerovy choroby? EMBO Mol. Med. 2021, 13, e14781.
30. Takata, K.; Kitamura, Y.; Saeki, M.; Terada, M.; Kagitani, S.; Kitamura, R.; Fujikawa, Y.; Maelicke, A.; Tomimoto, H.; Taniguchi, T. Galantaminem indukovaná clearance amyloidu zprostředkovaná stimulací mikrogliálních nikotinových acetylcholinových receptorů. J. Biol. Chem. 2010, 285, 40180–40191. [CrossRef] [PubMed]
31. Mandrekar-Colucci, S.; Karlo, JC; Landreth, GE Mechanismy, které jsou základem rychlé clearance amyloidu zprostředkované peroxisomovým proliferátorem aktivovaným receptorem- - a zvrácení kognitivních deficitů na myším modelu Alzheimerovy choroby. J. Neurosci. 2012, 32, 10117–10128. [CrossRef]
32. McGeer, PL; McGeer, EG Zaměření na mikroglie pro léčbu Alzheimerovy choroby. Expert Opin. Ther. Cíle 2015, 19, 497–506. [CrossRef] [PubMed]
33. Píseň, WM; Colonna, M. Identita a funkce mikroglií v neurodegeneraci. Nat. Immunol. 2018, 19, 1048–1058. [CrossRef] [PubMed]
34. Kuo, Y.-H.; Lin, C.-H.; Shih, C.-C. Ergostatrien-3 -ol z Antrodia camphorata inhibuje diabetes a hyperlipidémii u myší léčených vysoce tučnou stravou prostřednictvím regulace genů souvisejících s játry, transportéru glukózy 4 a fosforylace proteinkinázy aktivované AMP. J. Agric. Food Chem. 2015, 63, 2479–2489. [CrossRef] [PubMed]
35. Le Bourg, E.; Lints, FA Hypergravitace a stárnutí u Drosophila melanogaster. 4. Horolezecká činnost. Gerontologie 1992, 38, 59–64. [CrossRef]
36. Waddell, S.; Quinn, WG Mouchy, geny a učení. Ann. Neurosci. 2001, 24, 1283–1309. [CrossRef] [PubMed]
【Další informace:george.deng@wecistanche.com / WhatApp:{0}}】