

Část 3: Odlišné genetické podpisy kortikálních a subkortikálních oblastí spojených s lidskou pamětí
Mar 21, 2022
Kontakt: Audrey Hu Whatsapp/hp: 0086 13880143964 Email:audrey.hu@wecistanche.com
Posouzení výkonnosti rámce
Je-li náš přístup bez dozoru platný,paměťOčekáváme, že paměťové geny by měly mít vyšší korelační hodnotu zpaměťanalýza ve srovnání s analýzou motoru (tj. kontrola příčetnosti; obr. 1G, 6). Navíc v top 10 paměťových genech očekáváme větší početpaměťgeny v analýze paměti, než se očekávalo náhodou (tj. statistická významnost; Tabulky 5,6), a že najdeme vícepaměťgeny než geny motorických funkcí (tj. přesnost metody; obr. 7).
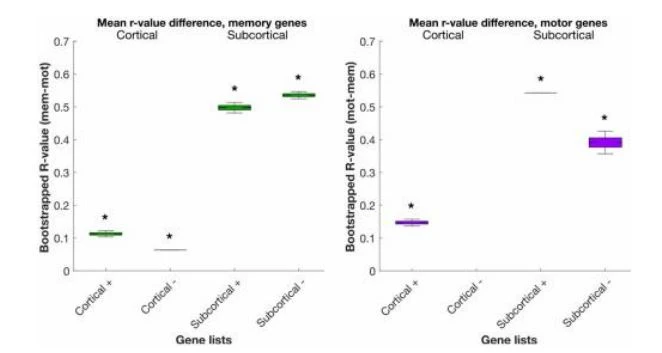
Obrázek 6. Bootstrapped rozdíly v hodnotě korelace pro všechny kortikální a subkortikální kandidátské genypaměťa motorická analýza. Pro daný paměťový gen jsme vypočítali rozdíl mezi hodnotami r analýzy paměti a motoru odečtením motoru r od paměti r. Pokud je ikonapaměťr byl záporný, vzali jsme zápor rozdílu (abychom získali kladnou hodnotu). Naopak pro motorické geny. Pro každou kognitivní funkci jsme podvzorkovali počet použitých genů na nejnižší číslo pro výpočet středního rozdílu bootstrapped (231paměťgeny a 146 motorických genů, respektive 10 000 iterací). Pokud se 95. percentil nepřekrýval se základní linií nuly, považuje se bootstrapped rozdíl za významný (p 0,05). Všimněte si, že pro motorickou kortikální analýzu nepřežily prahovou hodnotu žádné negativně korelované geny, a proto zde není uveden žádný seznam motorických kortikálních (–) genů. Viz Rozšířený datový obrázek 6-1 pro úplný seznam rozdílů korelačních hodnot pro geny použité v bootstrapové analýze. označuje p 0,05.
Pomocí hodnot korelace kandidátského genu ukazujeme, žepaměťgeny vykazovaly významný pozitivní rozdíl mezipaměťanalýza r hodnota a motorická analýza r-hodnota, protože 95. percentil (vousy) se nepřekrýval s nulou (obr. 6; všechny hodnoty korelace genů použité v bootstrapové analýze v rozšířeném datu obr. 6-1). Náš přístup jako takový funguje podle očekávání.
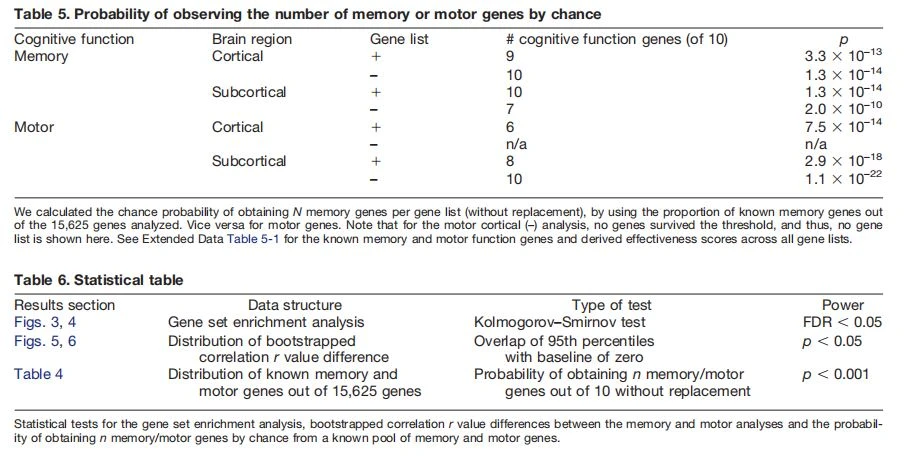
Zjistili jsme, že metoda byla vysoce účinná. Pro všechnypaměťkortikální a subkortikální geny, pravděpodobnost získání počtu pozorovaných paměťových genů byla významně vyšší než náhoda (tabulka 5; úplný seznam genů souvisejících s pamětí a motorickými funkcemi, které představují pravděpodobnost šance v rozšířené datatabulce 5-1). Podobně pro všechny seznamy motorických kortikálních a subkortikálních genů byla pravděpodobnost odvození počtu pozorovaných motorických genů také velmi významná.
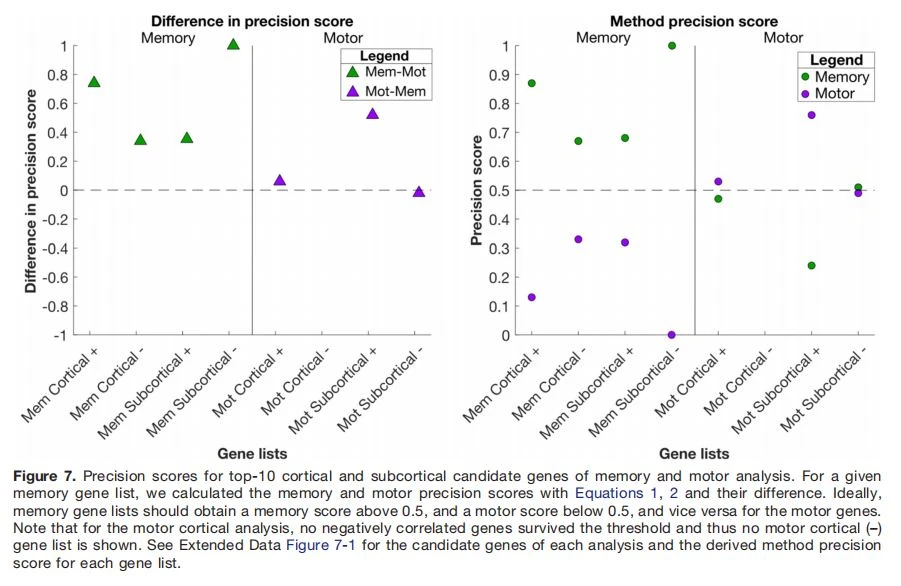
Použitím předpokládaných genových funkcí odvozených z přehledu literatury jsme také zjistili, že metoda měla vysokou přesnost, protože rozdíl v top 10 skóre přesnosti seznamu kandidátů na geny je nezáporný [s výjimkou motorické subkortexu (–), obr. 7; výpočet hodnot přesnosti v rozšířených datech obr. 7-1]. Tyto výsledky naznačují, že metoda je platná a specifická při identifikaci genů spojených spaměťa funkce motoru.

Diskuse
Celkově naše výsledky ukazují, že kortikální a subkortikální oblasti zapojené do lidskéhopaměťmají zřetelné genetické signatury. Tyto genetické signatury jsou v souladu s předchozím výzkumem na zvířecích modelech paměti a byly oddělitelné od kontroly motorických funkcí. Ukazujeme tedy, že silné podobnosti mezi prostorovými vzory transkriptomu lidského mozku a funkční neurozobrazovací mapou paměti mohou být využity ke zvýraznění kandidátských biologických procesů a genů spojených s člověkem.paměťpro budoucí experimentální výzkumy. To může přispět k našim znalostem o funkčních rozdílech kortikálních a subkortikálních oblastí ve zdravé lidské paměťové funkci apaměťporuchy.
V současné době je člověkpaměťdůkazy jsou obecně odvozeny z populárních neinvazivních metod, jako je GWAS (Well- come Trust Case Control Consortium, 2007), který identifikuje vazby mezi genovými variantami a poznáním (Heck et al., 2014). GWAS však ignoruje prostorově distribuovanou genovou expresi v mozku tím, že analyzuje pouze genové varianty o mozku nebo behaviorální opatření (Hawrylycz et al., 2012; Mahfouz et al., 2017). Náš přístup se opírá o prostorový vzorec genové exprese a identifikuje genetické profily související s člověkempaměť. Klíčové je, že náš přístup bez dozoru je všestranný, protože může odhalit bezprecedentní vhled do jakékoli lidské kognitivní funkce, která je předmětem zájmu, např. Rozhodování. Tento vhled může být zvláště užitečný v případě klinicky relevantních funkcí, ale s genetickým základem, který je méně pochopen, např. pozornost (ADHD) a jazyk (dyslexie).

K identifikaci obecného člověkapaměťgeny, které fungují napříč mozkem, jsme porovnali rozdíly a překrytí mezi kortikálními a subkortikálními paměťovými geny (obr. 1). Zejména toto překrývání je podpořeno existencí genů, které jsou základempaměťfunkce jako celek, jako v případě neuronálně exprimovaných okamžitých a časných genů (IEG) zapojených do funkce paměti (Gallo et al., 2018). IEG jsou širokou třídou genů, které jsou exprimovány rychlým, přechodným způsobem v reakci na nepřeberné množství buněčných podnětů. Z neuronově specifických IEG jsou c-fos, Egr1 a oblouk široce spojeny s různými aspektypaměťv kortikální i subkortikální oblasti. Například blokáda hipokampálního c-Fos negativně ovlivnila prostorovou dlouhodobou paměť (Kemp et al., 2013) a její blokáda buď v hipokampu nebo retrospleniální kůře vyvolala deficity v konsolidaci paměti strachu (Katche et al., 2010; Katche a Medina, 2017). Takové geny jsou relevantní pro různé podtypy paměti napříč kortikálními i subkortikálními oblastmi, které nazýváme celomozku.paměťgeny.
Pokud existují takové obecnépaměťgeny, jejichž funkce vpaměťpokrývá celý mozek, kortikální i subkortikální analýzy by měly vykazovat překrývající se geny. Zjistili jsme, že kortikální a subkortikální oblasti mají do značné míry dis-tinct genetické profily, jak je identifikován genově-funkční prostorovou korelací (obr. 5). V top 10 kortikálních a subkortikálních paměťových genech nedošlo k žádnému překrytí, s určitým překrytím propaměťgeny (9,6 % z 1397 genů) a genové sady biologických procesů (2,5 % ze 118 genových sad).
Na úrovni biologického procesu jsme zjistili rozdíly v kortikální a subkortikálnípaměť. V kůře zahrnovaly identifikované genové sady epigenetickou regulaci a imunní signalizaci. Ten získal nedávný zájem jako ústřední faktor nástupu a progrese demence (Litteljohn et al., 2014; Kim a Kaang, 2017; Hammond a kol., 2019). V subkortexu se identifikované geny podílejí na neurogenezi a diferenciaci gliových buněk. Dále jsme identifikovali genové sady s méně pochopenou vazbou napaměťrovněž. Například nedávno bylo zjištěno, že astrocyty a oligodendrocyty se podílejí na spojování homeostázy draslíku zprostředkované gliálem a myelinizace s deficity paměti (Hertz a Chen, 2016; Pepř a kol., 2018). Stále není jasné, jak myelinizující oligodendrocyty mohou umožnit plasticitu v paměti (Pepper et al., 2018). Naše práce naznačuje, že diferenciace gliových buněk může hrát komplementární roli v paměťových funkcích a měla by být dále zkoumána pro komplexní pochopení buněčných příspěvků k paměti. Celkově to může naznačovat inherentní rozdíly v biologických procesech podporujících kortikální a subkortikální paměťové oblasti. Budoucí práce se mohou podívat na souhru těchto procesů a objasnit jejich diferenciální příspěvky ke kortikální a subkortikální paměťové funkci.
Na genové úrovni obohacené geny pro kortikální a subkortikálnípaměťbyly podobně odlišné. Z obohacených genů, které jsou spojeny s výše uvedenými biologickými procesy (v sadách S a S-), byla malá část genů (9,6% nebo 135 genů) sdílena mezi kortikálními a subkortikálními oblastmi (obr. 5). Tyto geny jsou příbuzné komplexu Arp2/3, GABA a AMPA ligandově řízeným iontovým kanálům a lokalizaci proteinů závislých na SRP k membráně. Komplex Arp2/3 je nezbytný pro zrání dendritických trnů, hipokampální a extra-hipokampální AMPA receptory se podílejí na excitačních iontových kanálech v paměti a podjednotky GABA receptorů jsou součástí inhibičních iontových kanálů v paměťové funkci (Collinson et al., 2002; Freudenberg a kol., 2016; Spence et al., 2016). Jako takový rekapituluje známou literaturu a naznačuje základní požadavky na obecnou paměťovou funkci. Celkově to může naznačovat rozdíly způsobené hrubými kortiko-subkortikálními rozdíly v profilech transkriptomu a funkci ve zdravé paměťové funkci a onemocnění (Huber et al., 1986; Losos a Filoteo, 2007). Budoucí práce se mohou zabývat tím, jak konvergence a divergence mezi kortikálními a subkortikálními genetickými profily a jak tyto profily umožňují kortiko-subkortikálně specifické funkce vpaměť.
Kromě toho byl identifikován i náš přístuppaměť-asociované geny se špatně pochopenými vztahy kpaměť. Například gen MIS18BP1 byl identifikován v subkortikálnímpaměťgeny (rozšířená tabulka dat 2-1). Tento gen je nutný pro nábor centromerních proteinů do centromer a umožňuje normální segregaci chromozomů během mitózy (Moree et al., 2011). Není jasné, zda takové geny buněčného dělení hrají roli v paměti napříč subkortikálními oblastmi. Gen byl však spojen s hipokampální neurogenezí, která je rozhodující pro funkci hipokampu v paměti (Shin et al., 2015; Gonçalves et al., 2016). Takové méně známé geny představují zásadní příspěvek našeho rámce, protože jejich nezprostředková vazba na paměť ještě nebyla stanovena a měla by být zkoumána v budoucím výzkumu.

Naše analýzy genové exprese a neurozobrazovací mapy nejsou bez omezení. Patří mezi ně omezená velikost vzorku, platnost přístupu podobného dolování textu s knihovnou GSEA a Gene Ontology a prostorové rozlišení AHBA. Za prvé, omezená velikost vzorku dárce a snížené pokrytí genomu po předběžném zpracování mohou přispět ke snížení výkonu, ale ne statistické přesnosti našeho přístupu. Ačkoli budoucí zvýšení velikosti vzorku může identifikovat více genů pomocí této metody, zjistili jsme, že současné výsledky jsou robustní, protože naše výsledky jsou výrazně lepší než náhoda (tj. Statistická významnost). Kromě toho byly identifikované geny specifické pro paměť, jak dokazuje přesnost našeho rámce. Za druhé, GSEA využívá knihovnu Gene Ontology k identifikaci obohacených genových sad a spojuje tyto obohacené geny s ontologickými termíny knihovny, např. synaptickou plasticitou. Připouštíme, že knihovna Gene Ontology je neustále rozšiřována o manuální kurátorské úsilí, a proto je zranitelná vůči tomu, aby byla překonána záplavou nedávných experimentálních nálezů (Baumgartner et al., 2007; Dutkowski a kol., 2013; Gaudet a Dessi- Moz, 2017). Jako taková je možné, že databáze je neúplná a neodráží všechny biologické funkce spojené s každým genem. To může vést k falešně negativním výsledkům, kdy nám chybí geny, které by měly být považovány za obohacené. Nicméně náš přístup vykazuje vysokou efektivitu (jak je vidět v top 10paměťa geny motorických funkcí) a výsledky jsou v souladu se známou experimentální literaturou nezávislou na ontologických knihovnách. Navíc nekontrolované metody identifikace kandidátských genů vždy vyžadují manuální kurátorství a výběr těchto genů pro další zkoumání. Za třetí, tento přístup je také omezen prostorovým rozlišením transkriptomu lidského mozku. Navzdory tomu, že je nejvhodnějším lidským transkripčním atlasem s celým genomem a pokrytím celého mozku s vysokým rozlišením, mapa AHBA má stále nižší rozlišení ve srovnání s funkčními zobrazovacími mapami, zejména v kůře (Hawrylycz et al., 2011). Jako takový očekáváme, že přesnost a statistická síla našeho přístupu poroste s rostoucím prostorovým rozlišením a velikostí vzorku databáze AHBA. Navíc vzhledem k tomu, že translace genové mRNA do funkčního produktu podléhá regulaci, mohou být dárcovské mozkové proteomy komplementární při identifikaci genů spojených spaměť(Lubec et al., 2003; Park et al., 2006; Sjöstedt et al., 2015).
Závěr
Zde pomocí Allen institute brain transcriptional atlas a Neurosynth neuroimaging mapy, demonstrujeme, že kortikální a subkortikálnípaměťoblasti mají odlišné genetické podpisy. Tyto genetické signatury poskytují nové biologické procesy a molekulární cíle pro pochopení lidské paměťové funkce. Klíčové je, že doufáme, že náš nekontrolovaný a prostorově řízený přístup může pomoci vést výzkumníky k produktivním genovým a biologickým kandidátům na procesy pro pochopení toho, jak složité kognitivní funkce, jako jepaměťmohou být umožněny molekulárními složkami mozku.


