ČÁST 2 Echinakosid indukuje vasorelaxaci plicní arterie potkanů otevřením kanálů NO-cGMP-PKG-BKCa a snížením intracelulárních hladin Ca2+
Mar 07, 2022
ČÁST 2 Jak echinakosid indukuje žilní relaxaci?
Pro více informací kontaktujte:Joanna.jia@wecistanche.com
Cistanche deserticola má mnoho účinků, klikněte zde pro více informací
Diskuse
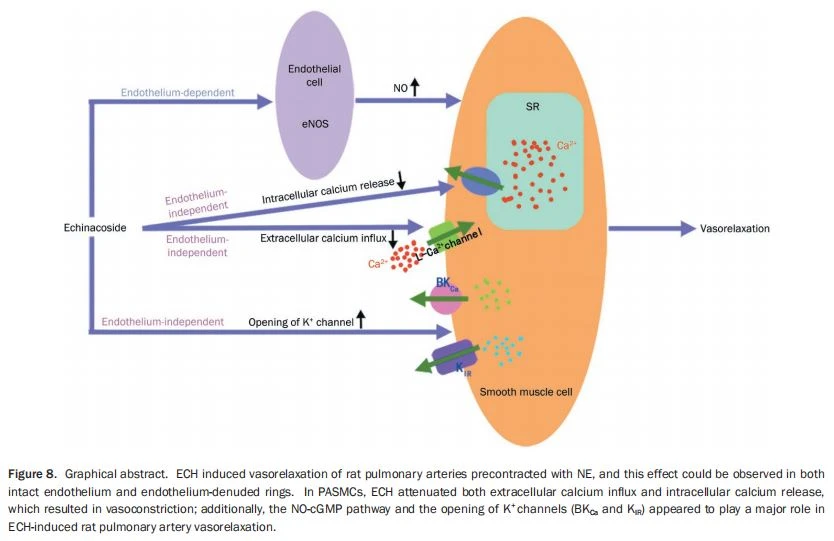
Podle našeho nejlepšího vědomí se jedná o první studii hodnotící účinekECHna vaskulárním tónu plicní tepny potkana. Zjistili jsme, žeECHindukovaná vasorelaxace plicní tepny potkanů předkontaktní s NE způsobem závislým na koncentraci a tyto účinky lze pozorovat jak v intaktním endotelu, tak v endotelem denudovaných kroužcích. V plicní tepně ECH zeslabil jak extracelulární příliv vápníku, tak intracelulární uvolňování vápníku, tak dráhu NO-cGMP a otevření K+kanály (velká vodivost Ca2+-aktivovaný K+kanály a vnitřní usměrňovač K+kanály) se zdálo, že hrají roli vECH-indukovaná vasorelaxace plicní tepny potkanů. U POTKANŮ PASMC,ECHmůže přímo snížit intracelulární koncentraci vápníku. Předchozí studie také naznačily, žeECHby mohl zprostředkovat endotelem závislý vazodilatační účinek v hrudních aortálních kroužcích potkanů cestou NO-cGMP[7].

echinakosidv cistanche canprotizánětlivý
ECH-indukovaná vasorelaxace může být pozorována jak v neporušeném endotelu, tak v endotelem denudovaných prstencích. Odstranění endotelu však vedlo k významnému snížení maximální odezvy a zvýšení ES50vzhledem k neporušeným endotelovým prstencům. Bylo navrženo, aby NO-cGMP a CHZO2-cAMP dráhy hrají klíčovou roli v regulaci endotelem závislé vaskulární relaxace[9]. Abychom tento problém prozkoumali, přidali jsme 100 μmol/lL-NAME, inhibitor syntézy NO do endoteliálních buněk. Výsledky ukázaly, žeL-NAME významně zmírnil vazodilataciECH, což naznačuje, že NO bude pravděpodobně hrát roli při vazorolaxaciECH.Zjistili jsme také, že IMT, inhibitor cykloky oxygenázy (klíčové CHZO2syntetázy), neměla takový účinek, což naznačuje, že CHZO2bylo nepravděpodobné, že by se podílelo na vazorolaxaci ECH. Proto může ECH zvýšit produkci NO zL-arginin ve vaskulárním endotelu a aktivují guanylátcyklázu, čímž katalyzují konverzi GTP na cGMP. Po experimentálním protokolu kruhy vykazovaly trvalou plošinu vysokého procenta kontrakce indukované NE (1 μmol / l), což naznačovalo, že kroužky byly předem ošetřenyECH(30 až 300 μmol/l) vykazovalo dobrou aktivitu (obrázek 2A a 2B).
Cévní tón je regulován intracelulárním Ca2+[12]. Zjistili jsme, že ECH (100 a 300 μmol/l) významně snížil fázovou kontrakci vyvolanou NE v endotelem denudovaných plicních arteriálních kroužcích v Ca2+-volný roztok KH a tento účinek byl výraznější s vyšší koncentrací ECH (300 μmol/l), což naznačuje, že inhibiční účinek ECH na NE indukovanou kontrakci plicních arteriálních kruhů byl zprostředkován interferencí ve schopnosti IP3 podporovat uvolňování intracelulárních Ca2+. NE působí na α-receptor, aby zprostředkovala vaskulární kontrakci, čímž se zvyšuje intracelulární

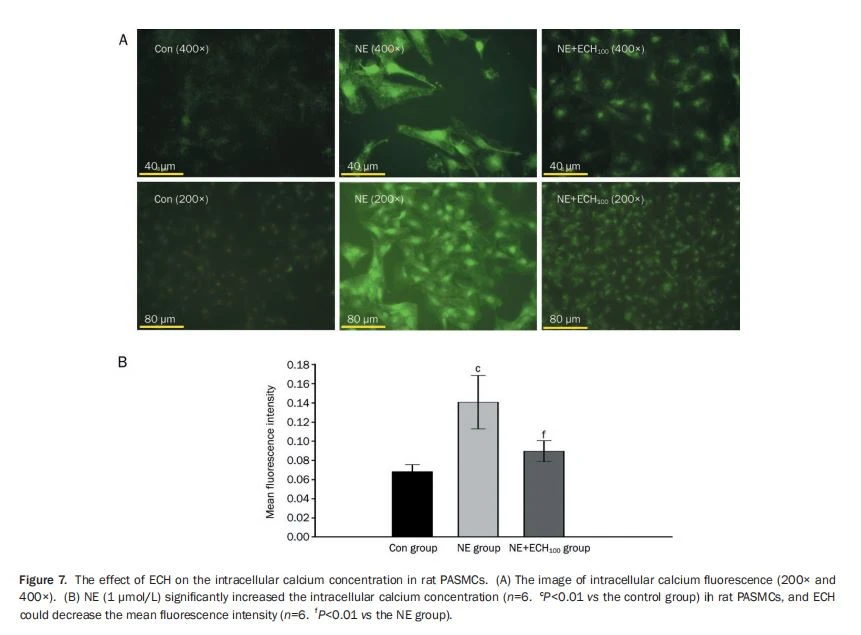
Hladiny Ca2+ ([Ca2+]i) prostřednictvím signální transdukční dráhy fosfatidylinositolu vázané na G-protein[13]. Jakmile je aktivován, spustí se tvorba druhého posla IP3 a diacylglycerolu indukovaného fosfolipázou C[14]. IP3 může rychle mobilizovat a uvolňovat Ca2+ ze sarkoplazmatického retikulu, aby způsobil přechodné zvýšení [Ca2+] I, které by mohlo být spojeno s NE-indukovanou fázovou kontrakcí v plicních arteriálních kroužcích v médiu bez Ca2 +. Pro zkoumání účinku ECH na extracelulární příliv vápníku byl přidán CaCl2 (2,5 mmol/l) za podmínek bez Ca2+. Přidání ECH (30, 100 a 300 μmol/l) významně snížilo maximální kontrakci, přičemž nejvýznamnější účinek byl pozorován při 300 μmol/l ECH. To naznačuje, že ECH inhibuje intracelulární uvolňování vápníku a extracelulární příliv vápníku v PASMC. Jsou však zapotřebí další studie k objasnění vztahu mezi ECH a inhibitory kalciových kanálů typu L. Ke zkoumání úlohy vápníku byl použit přípravek Fluo 4-AM ke stanovení intracelulárních koncentrací vápníku u PASMC potkanů. Vzhledem k tomu, že přidání NE (1 μmol/l) vedlo k rychlé změně napětí cévních kroužků (obrázek 2), pasMC potkanů byl nejprve naložen Fluo 4-AM a poté byly přidány NE a ECH. Výsledky ukázaly, že 1 μmol/l NE může zvýšit intracelulární koncentraci vápníku, což bylo v souladu s předchozími studiemi, a průměrná intenzita fluorescence byla nižší ve skupině NE+ECH100 než ve skupině NE. Proto byl učiněn závěr, že ECH může snížit intracelulární koncentraci vápníku u PASMC potkanů předléčených NE. Vzhledem k tomu, že je vhodnější detekovat intracelulární koncentraci vápníku v reálném čase, provádí se další výzkum s cílem sledovat změny intracelulární koncentrace vápníku v reálném čase pomocí konfokální mikroskopie.

kanály byly také navrženy jako potenciální terapeutické cíle pro kardiovaskulární onemocnění kvůli jejich schopnosti regulovat vaskulární tón[22, 23]. Zjistili jsme, že TEA, inhibitor kanálů BKCa, způsobil posun křivky koncentrace a odezvy nahoru a významné zvýšení EC50. Také jsme zjistili, že relaxace vyvolaná ECH byla významně slabší při nejvyšší koncentraci ECH v kroužcích po léčbě TEA (1 mmol/l) ve srovnání s kontrolou. NO-indukovaná vazodilatace je částečně způsobena cGMP-dependentní, proteinkinázou G-zprostředkovanou aktivací BKCa kanálů[24]. Proto jsme předpokládali, že ECH indukoval vasorelaxaci plicní tepny potkanů prostřednictvím kanálů NO-cGMP-PKG-BKCa, což vedlo ke snížení intracelulárních hladin Ca2+ a relaxaci PASMC. Zajímavým pozorováním bylo, že různé koncentrace ECH snížily maximální kontrakci vyvolanou extracelulárním přílivem vápníku a zkrátily trvalou kontrakci, která může souviset s otevřením kanálů BKCa.
KIR kanály jsou nejjednodušší kanály, pouze se dvěma transmembránovými doménami. Podílejí se na regulaci hnací síly pro vstup vápníku do plicních vaskulárních endoteliálních buněk; proto se podílejí na regulaci vaskulární permeability[25] a reakcí na smykové napětí[26]. V této studii jsme ukázali, že inhibitor KIR způsobil posun křivky koncentrace a odezvy nahoru a významné zvýšení EC50 a že relaxace vyvolaná ECH (300 μmol / l) byla významně slabší ve srovnání s kontrolou. Všechny tyto výsledky ukázaly, že ECH má vazorolaxantní účinek na plicní tepnu prostřednictvím kanálů KIR. Vzhledem ke složité roli K+ kanálů v regulaci vaskulárního tónu jsou však k objasnění tohoto problému zapotřebí další studie. Nedávno bylo navrženo, aby se K+ kanály podílely na vaskulární remodelaci regulací buněčné proliferace a apoptózy[18]. Globální hypoxie, jak se vyskytuje ve vysokých nadmořských výškách, způsobuje plicní vazokonstrikci nebo vaskulární remodelaci a zvyšuje plicní vaskulární rezistenci[27]. Zhoršené K+ kanály (KATP, KCa, VK a KIR) v buňkách hladkého svalstva cév také souvisejí s rozvojem hypoxické inhibice K+ kanálů, což má za následek depolarizaci membrány, aktivaci napěťově závislých Ca2+ (Cav) kanálů, extracelulární příliv Ca2+ a intracelulární uvolňování Ca2+, což vede ke zvýšení [Ca2+] I, následované plicní vazokonstrikcí a proliferací PASMC[29]. Otevření K+ kanálů přispívá k regulaci hypoxické plicní vazokonstrikce a vaskulární remodelace. ECH tak může otevřít kanály K+, čímž zmírní hypoxickou plicní vazokonstrikci a sníží vaskulární remodelaci. hypertenze[22, 28].
Závěr ECH indukuje vasorelaxaci v plicních tepnách potkanů předkontaktních s NE a takový účinek lze pozorovat jak v intaktním endotelu, tak v endotelem denudovaných kroužcích. To s největší pravděpodobností souvisí s otevřením kanálů NO-cGMP-PKG-BKCa a snížením intracelulárních hladin Ca2+, čímž se uvolní PASMC (obrázek 8).
Uznání
Děkujeme Liang YANG a její laboratoři (Centrum pro mitochondriální biologii a medicínu, Klíčová laboratoř biomedicínského informačního inženýrství Ministerstva školství, Škola vědy o životě a technologii a Hraniční institut vědy a technologie, Xi'an Jiaotong University, Xi'an, Čína) za jejich pomoc při detekci intracelulární koncentrace vápníku u PASMC potkanů. Tento projekt je podporován Národním programem klíčového projektu základního výzkumu Číny (č. 2012CB518200), Programem mezinárodní vědeckotechnické spolupráce Číny (č. 2011DFA32720), Národní nadací přírodních věd Číny (č. 31160219), Programem rozvoje klíčových laboratoří provincie Čching-chaj (č. 2013-Z-Y05, č. 2014-Z-Y-30 a č. 2014-Z-Y-07), Qinghai-Utah Joint Research Key Lab for High Altitude Medicine, National Natural Science Foundation of China (No 81160012), Ministry of Education New Century Outstanding Talents Support Program of China (No NCET-12-1022) a Natural Science Foundation of Qinghai (No 2012-Z-915Q).
echinakosidvcistanchemůže léčit onemocnění ledvin
Autorský příspěvek
Ri-li GE a Xiang-Yun GAI navrhli studii; Xiang-Yun GAI, Yu-hai WEI, Ta-na WUREN, Ya-ping WANG, Zhan-Qiang LI a Yi ZHOU provedli výzkum; Wei ZHANG a Yu-hai WEI přispěli novými činidly a analytickými nástroji; Xiang-yun GAI a Shou LIU analyzovali data; Xiang-Yun GAI napsal článek a Lan MA a Dian-Xiang LU článek upravili.
Cistancheechinakosidodoláváapoptóza
Odkazy
1 Hultgren HN, editor. Vysokohorská medicína. Stanford: Hultgren Publications; 1997.
2 Humbert M, Sitbon O, Simonneau G. Léčba plicní arteriální hypertenze. N Engl J Med 2004; 351: 1425-36.
3 Ge RL. Život na Qinghai-Tibetan Plateaus. Peking: Peking
Univerzitní lékařský tisk; 2007. Čínština.
4 Xin Y, Hu F, Dong Q, Peng M. Stanovení echinakosidu a akteosidu v tibetské bylině Lagotis brevituba Maxim. Chin J Pharm Anální 2012; 32: 1183–5.
5 Zhao Q, Gao J, Li W, Cai D. Neurotrofní a neurozáchranové účinky echinakosidu v subakutním MPTP myším modelu Parkinsonovy nemoci. Brain Res 2010; 1346: 224–36.
6 Yang XL, L F, Yang YN, Shen JY, Zou R, Zhu PP a kol. Účinnost a bezpečnost echinakosidu v modelu osteopenie potkanů. Evid Na bázi komplementu Alternat Med 2013; 2013: 1–10.
7 He WJ, Fang TH, Ma X, Zhang K, Ma ZZ, Tu PF. Echinakosid vyvolává relaxaci závislou na endotelu v kruzích aorty potkanů cestou NO-cGMP. Planta Med 2009; 75: 1400–4.
8 Warshaw DM, Mulvany MJ, Halpern W. Mechanické a morfologické vlastnosti cév arteriální rezistence u mladých a starých spontánně hypertenzních potkanů. Oběžník Res 1979; 45: 250–9.
9 Shen M, Zhao L, Wu RX, Yue SQ, Pei JM. Vazorelaxantní účinek resveratrolu na břišní aortu potkanů a jeho základní mechanismy. Vascul Pharmacol 2012; 58: 64–70.
10 Gai XY, Tang F, MA J, Zeng KW, Wang SL, Wang YP, et al. Antiproliferační účinek echinakosidu na buňky hladkého svalstva plicní arterie potkanů při hypoxii. J Pharmacol Sci 2014; 126: 155–63.
11 Mandal SK, Pendurthi UR, Rao LVM. Obchodování s tkáňovým faktorem ve fibroblastech: zapojení buněčné signalizace zprostředkované receptory aktivovanými proteázou. Krev 2007; 110: 161–70.
12 Toque HA, Teixeira CE, Priviero FB, Morganti RP, Antunes E, De Nucci G. Vardenafil, ale ne sildenafil nebo tadalafil, má aktivitu blokování kalciových kanálů v izolované plicní tepně králíků a v lidských mytých krevních destičkách. Br J Pharmacol 2008; 154: 787-96.
13 Fonseca-Magalhães PA, Sousa DF, de Siqueira RJ, Jorge RJ, Meneses GC, Alves RS a kol. Inhibiční účinky sertralinu v izolovaných perfuzních ledvinách potkanů a v izolovaných kruhových přípravcích potkaních tepen. J Pharm Pharmacol 2011; 63: 1186–94.
14 Berridge MJ. Inositol trisfosfát a signalizační mechanismy vápníku. Biochim Biophys Acta 2009; 1793: 933–40.
15 Hu F, Koon CM, Chan JY, Lau KM, Kwan YW, Fung KP. Postižení kalciového kanálu a draslíkového kanálu v odvaru Danshen a Gegen vyvolalo vazodilataci v prasečí koronární LAD tepně. Fytomedicína 2012; 19: 1051–8.
16 Matsumoto T, Kobayashi T, Ishida K, Hirasawa Y, Morita H, Honda T a kol. Vazodilatační účinek Cassiarin A, nového antiplasmodiálního alkaloidu z Cassia siamea, v izolované mezenterické tepně potkanů. Biol Pharm Bull 2010; 33: 844–8.
17 Dubuis E, Potier M, Wang R, Vandier C. Nepřetržité vdechování oxidu uhelnatého zmírňuje rozvoj hypoxické plicní hypertenze pravděpodobně aktivací kanálů BKCa. Cardiovasc Res 2005; 65: 751–61.
18 Moudgil R, Michelakis ED, Archer SL. Úloha K+ kanálů při určování plicního vaskulárního tónu, snímání kyslíku, proproliferace buněk a apoptózy: důsledky pro hypoxické plicní vazokonstrikce a plicní arteriální hypertenze. Mikrocirkulace 2006; 13: 615–32.
19 Eichhorn B, Dobrev D. Cévní velkovodivé kalcium aktivované draslíkové kanály: funkční role a terapeutický potenciál. Naunyn Schmiedebergs Arch Pharmacol 2007; 376: 145–55.
20 Ko EA, Han J, Jung ID, Park WS. Fyziologické role K+ kanálů v buňkách hladkého svalstva cév. J Hladké svalstvo Res 2008; 44: 65–81.
21 Ledoux J, Werner ME, Brayden JE, Nelson MT. Kalcium aktivované draslíkové kanály a regulace vaskulárního tónu. Fyziologie 2006; 21: 69–78.
22 Bonnet S, Archer SL. Diverzita draslíkových kanálů v plicních tepnách a plicních žilách: důsledky pro regulaci plicní vaskulatury ve zdraví a během plicní hypertenze. Pharmacol Ther 2007; 115: 56–69.
23 Feletou M. Vápníkem aktivované draslíkové kanály a endoteliální dysfunkce: terapeutické možnosti? Br J Pharmacol 2009; 156: 545– 62.
24 Archer SL, Huang J, Hampl V, Nelson DP, Shultz PJ, Weir EK. Oxid dusnatý a cGMP způsobují vazorolaxaci aktivací kanálu K citlivého na chary-biotoxiny proteinkinázou závislou na cGMP. Proc Natl Acad Sci U S A 1994; 91: 7583–7.
25 Shimoda LA, Welsh LE, Pearse DB. Inhibice vnitřních rektifikačních K+ kanálů pomocí cGMP v plicních vaskulárních endoteliálních buňkách. Am J Physiol Lung Cell Mol Physiol 2002; 283: L297–304.
26 Chatterjee S, Al-Mehdi AB, Levitan I, Stevens T, Fisher AB. Shear596 stres zvyšuje expresi KATP kanálu v plicních vaskulárních endoteliálních buňkách potkanů a skotu. Am J Physiol Lung Cell Mol Physiol 2003; 285: C959–67.
27 Bartsch P, Maggiorini M, Ritter M, Noti C, Vock P, Oelz O. Prevence vysokohorského plicního edému nifedipinem. N Engl J Med 1991; 325: 1284–9.
28 Park WS, Han J, Získejte YE. Fyziologická role vnitřních usměrňovačů K+ kanálů v buňkách hladkého svalstva cév. Pflugers Arch 2008; 457: 137–47.
29 Wang Yx, Zheng Ym. Ros-dependentní signalizační mechanismy pro hypoxické Ca2+ odpovědi v myocytech plicní arterie. Antioxid Redox Signál 2010; 12: 611–23.