O evoluci buněčného stárnutí
Apr 24, 2023
Abstraktní
Myšlenka, žesenescentní buňkyse kauzálně podílejí na stárnutí získal silnou podporu ze zjištění, žeodstranění takových buněk zmírňuje mnoho nemocí souvisejících s věkemaprodlužuje životnost myší. Zatímco pokračují snahy o terapeutické využití takových objevů, je důležité se ptát, jaké evoluční síly mohly stát za vznikem buněčného stárnutí, abychom lépe porozuměli biologii, kterou bychom se mohli snažit změnit. Buněčné stárnutí je často považováno zaprotirakovinné mechanismusprotože omezuje dělicí potenciál buněk. Mnoho studií však ukázalo, že senescentní buňky často také majíkarcinogenní vlastnosti. To je těžké sladit s jednoduchou myšlenkou anprotirakovinný mechanismus. Kromě toho další studie ukázaly, že buněčné stárnutí se podílí na hojení ran a opravě tkáně. Zde tyto poznatky a nápady spojujeme a diskutujeme o možnosti, že tyto funkce mohou být hlavním důvodem pro vývoj buněčného stárnutí. Dále diskutujeme o myšlence, žesenescentní buňky se mohou hromadit s věkemprotožeimunitní systémmusetnajít rovnováhu mezi falešnými negativy(s výhledem na některé senescentní buňky) afalešně pozitivní(zničení zdravých tělesných buněk).
KLÍČOVÁ SLOVA:Stárnutí, proti stárnutí, buněčné stárnutí, evoluce, analytika
Klikněte sem a získejte více informací o Cistanche For Anti Aging a Anti-Cancer
1|ÚVOD
Je tomu 60 let, co byl v lidských diploidních fibroblastech objeven fenomén replikativní stárnutí buněk (Hayflick & Moorhead, 1961). V té době byl přijímaný názor, že kultivované buňky budou růst neomezeně dlouho, pokud jim budou poskytnuty vhodné podmínky. Po přijetí platnosti nového objevu se ukázalo, že existuje důležitý rozdíl mezi „normálními“ buňkami, které mají konečnou replikativní délku života, a maligně „transformovanými“ buňkami, které jsou schopny se neomezeně množit. Ačkoli to bylo špatně pochopeno, senescence byla navržena jako důkaz přirozeného stárnutí na buněčné úrovni. To bylo podpořeno zprávami, že délka života replikace buněk (vyjádřená jako počet zdvojnásobení populace) korelovala s (a) dlouhověkostí druhů, ze kterých byly kultury vypěstovány (Röhme, 1981), a (b) věkem dárce. ze kterých byly získány biopsie (Martin et al., 1970). I když se začal zpochybňovat jednoduchý vztah mezi stárnutím organismu a myšlenkou, že buňky pouze docházejí dělícího potenciálu (Cristofalo et al., 1998, 2004), myšlenka kauzální souvislosti přetrvávala, přestože takové spojení nemohlo přesto být ukázán in vivo. Důležitým pokrokem byl proto objev markerů, jako je galaktozidáza spojená s senescencí (SA- -gal) a p16 (Campisi & d'Adda di Fagagna, 2007; Collins & Sedivy, 2003; Dimri et al. , 1995). Ty byly použity nejen k identifikaci senescentních buněk v tkáních, ale také k prokázání toho, že se zvyšují s věkem in vivo (Burd et al., 2013; Yamakoshi et al., 2009). Studie zaměřené na různé tkáně zjistily u starých myší hodnoty mezi 2 až 14 procenty (Biran et al., 2017). Žádný ze současných markerů však neidentifikuje senescentní buňky jednoznačně, takže senescenci je pravděpodobně nejlépe určit kombinací více markerů, dokud nebude její identifikace dále vyřešena.
Dalším klíčovým krokem bylo zjištění, že replikativní stárnutí může být způsobeno erozí telomer – ochranných struktur zakrývajících konce lineárních chromozomů (Harley et al., 1990). K erozi telomer dochází kvůli neschopnosti DNA polymeráz kopírovat samotné konce chromozomů. V zárodečných buňkách a některých dalších specializovaných typech buněk je toto omezení překonáno působením telomerázy, ale ve fibroblastech a mnoha dalších diferencovaných buněčných typech je exprese telomerázy vypnuta. To zpočátku naznačovalo, že stárnutí může být naprogramovaný proces, ve kterém telomery fungují jako forma molekulárních hodin. Proti myšlence jednoduchých hodin však bylo zjištění, že replikativní stárnutí vykazuje výraznou heterogenitu v potenciálu dělení jednotlivých buněk v populaci a dokonce i v klonálně odvozených subpopulacích (Smith & Whitney, 1980). Kromě toho evoluční úvahy argumentovaly nejen proti naprogramování stárnutí, ale také proti myšlence, že má jedinou molekulární příčinu (Kirkwood, 2005). Teoretické modelování interakcí mezi různými kandidátními mechanismy molekulárního stárnutí (somatické mutace, mitochondriální dysfunkce, eroze telomer) ukázalo, že pozorovanou heterogenitu v potenciálu buněčného dělení lze vysvětlit působením více mechanismů působících společně (Sozou & Kirkwood, 2001). To vedlo k experimentálním testům této možnosti, které odhalily, že náhodné účinky mitochondriálních mutací (vedoucích k intracelulárnímu oxidačnímu stresu, ke kterému jsou telomery zvláště náchylné) by mohly vysvětlit stochastickou heterogenitu v replikativní senescenci řízené telomerami (Passos et al., 2007). Zároveň bylo zjištěno, že nejen opotřebování telomer, ale také rozmanitá škála poškozujících stavů (oxidační stres, poškození DNA, záření nebo exprese některých onkogenů), z nichž všechny v nějaké formě zahrnují poškození DNA. buněčné stárnutí (CS) (Campisi, 2013; Coppe a kol., 2010; Gorgoulis a kol., 2019).
V reakci na důkazy, že cesty vedoucí k ustavení stárnutí se ukázaly být složitější, než se dříve předpokládalo, bylo vynaloženo úsilí spojit sílu bioinformatiky a modelování systémů s funkční analýzou genové regulace. To odhalilo, že existuje dynamická smyčka zpětné vazby, která je spouštěna reakcí na poškození DNA (DDR) a která po několikadenní prodlevě uzamkne buňku do aktivně udržovaného stavu „hlubokého“ buněčného stárnutí (Passos et al., 2010). Základním rysem tohoto objevu bylo, že buněčné stárnutí byl regulovaný proces nabízející alternativní odpověď na poškození než možnost buněčné „sebevraždy“, známé jako apoptóza. Ačkoli apoptóza poskytla prostředek k úplnému odstranění poškozené buňky, stárnutí umožnilo buňce zůstat, ale trvale odstranilo její potenciál pro další dělení. Kromě toho je mnoho senescentních buněk vysoce odolných vůči indukci apoptózy (Childs et al., 2014). Senescence a apoptóza by na první pohled mohly být jednoduše chápány jako doplňkové alternativy ke zvládání potenciálně škodlivých účinků získaného poškození buněk (Childs et al., 2014), zejména s ohledem na riziko rakoviny. Pokud je typ buňky vysoce rizikový, jako je kmenová buňka, apoptóza by se ho úplně zbavila. Nicméně existovaly určité náznaky, že posílení apoptózy vedlo k rychlejšímu stárnutí urychlením ztráty buněčnosti tkání související s věkem (Kirkwood, 2002; Tyner et al., 2002). Bylo proto možné si představit, že by mohly nastat okolnosti, za kterých by poškozená buňka byla lépe zachována, zatímco by byla vyloučena z možnosti dalšího dělení. Ale samozřejmě, věci nejsou nikdy tak jednoduché, jak se na první pohled zdá. Již bylo jasné, že apoptóza má více rolí než ochrana před rakovinou, protože je nezbytná například během morfogeneze a při zvládání rizika autoimunitních reakcí během krvetvorby. S buněčnou senescencí bylo důležitým objevem, že většina senescentních buněk prochází změnou, aby produkovala „senescencí asociovaný sekreční fenotyp“ (SASP) (Coppe et al., 2010; de Keizer, 2017). SASP zahrnuje produkci komplexní řady chemokinů, cytokinů, růstových faktorů a proteáz, které způsobují významné účinky na sousední buňky, včetně přeměny na nové senescentní buňky prostřednictvím takzvaného „bystander“ efektu (Nelson et al. ., 2012; da Silva a kol., 2018; Xu a kol., 2017). Mnohé z dopadů SASP se zdají být negativní: podporuje chronický zánět, který je zase důležitým přispěvatelem k celé řadě nemocí souvisejících s věkem. Stejně jako u apoptózy se však ukázalo, že senescentní buňky mají příznivé účinky na vývoj, hojení ran a opravu tkání (Demaria et al., 2015; Gal et al., 2019; Gibaja et al., 2019; Ritschka et al., 2017).

Zlomovým bodem ve vnímání senescentních buněk a jejich vztahu ke stárnutí a zdraví bylo zjištění u myší, že cílené odstranění senescentních buněk, nazývané „analýza“, mělo za následek prodloužení délky života a příznivé účinky na zdraví (Baar et al., 2017; Baker a kol., 2011, 2016; de Keizer, 2017; Ovadya a kol., 2018; Xu a kol., 2018). Buněčné stárnutí je však komplexní fenomén, který zdaleka není plně pochopen, jak naznačují nedávné poznatky, že odstranění nenahraditelných senescentních buněk v játrech ve skutečnosti zkracuje životnost myší (Grosse et al., 2020). Přesto se nyní vyvíjí velké úsilí, aby se prozkoumalo, zda by podobné přístupy mohly přinést zlepšení zdraví během lidského stárnutí.
Vzhledem ke složitosti toho, co je již známo o buněčném stárnutí, se zdá rozumné zvážit, proč a jak mohl přirozený výběr formovat role senescentních buněk v našem těle, v naději, že by to také mohlo přinést nové poznatky o budoucích terapeutických možnostech.

OBRÁZEK 1 Celulární stárnutí bylo navrženo jako protirakovinná strategie. Senescence-asociovaný sekreční fenotyp (SASP) má však mnoho negativních důsledků (zobrazeno červeně), které se s touto myšlenkou těžko slučují.
2|EVOLUCE A STÁRNUTÍ
Při zvažování, proč a jak se mohly vyvinout rysy stárnutí, je třeba nejprve ocenit, že evoluční logika nepodporuje myšlenku, že stárnutí samotné je způsobeno genetickým programem (Kirkwood & Melov, 2011). Ačkoli je přitažlivost programovaného stárnutí pochopitelná, nelze stárnutí takto jednoduše vysvětlit, pokud vůbec (Kowald & Kirkwood, 2016). Biologického stáří se v přirozených populacích dosahuje jen zřídka, a proto nedává smysl očekávat, že evoluce vyústila v proces, který se zřídkakdy vidí. Kromě toho je stárnutí pro jednotlivce škodlivé a přirozený výběr by mu měl spíše bránit, než podporovat. Tělo je naprogramováno na přežití, ne na smrt. Ale protože přežití do vysokého věku je u přirozených populací vzácné, neexistoval by žádný evoluční tlak na udržení těla dostatečně v pořádku, aby vydrželo navždy (Kirkwood, 1977; Kirkwood & Holliday, 1979). Tento závěr, ztělesněný v teorii „soma na jedno použití“, je ten, že stárnutí je důsledkem progresivní akumulace molekulárního a buněčného poškození v důsledku vyvinutých omezení v údržbě a opravách. Stejná logika vysvětluje, jak by u různých druhů, kde je vystavení přírodním rizikům různé, byla odpovídajícím způsobem upravena omezení údržby a oprav. To je potvrzeno důkazy, že buňky z druhů s delší dobou života jsou obecně lépe chráněny než buňky z druhů s kratším životem (Kapahi et al., 1999; Ma et al., 2016). Vysvětluje také, proč se křivky výskytu onemocnění souvisejících s poškozením, jako je rakovina, mění s délkou života.
Skutečnost, že stárnutí není samo o sobě naprogramováno, však nevylučuje možnost, že sekundární důsledky fenotypu stárnutí jsou výsledkem evolučního programování. Poškození je všudypřítomnou hrozbou pro všechny živé systémy a lze pouze očekávat, že úpravy k řešení škod jsou zásadní. U mnohobuněčných organismů je riziko pro organismus, které vzniká poškozením jednotlivých buněk, řešeno regulovanými reakcemi, zejména apoptózou a buněčným stárnutím. Základní povaha buněčného stárnutí jako reakce na poškození je také zdůrazněna skutečností, že související geny jsou u savců více konzervovány, než by se dalo očekávat náhodou (Avelar et al., 2020). Poškození také vzniká poraněním a infekcemi, na které ochranné reakce zajišťují imunitní a zánětlivé mechanismy. Ačkoli se v současné době velký zájem zaměřuje na důsledky, které mohou mít odezvy, jako je stárnutí, zánět a apoptóza pro zdraví ve vyšším věku, je důležité si uvědomit, že původ těchto reakcí je třeba hledat ve prospěchu, který přinášejí v mladším věku. Myšlenka, že evoluce mohla vytvořit vlastnost, která je dobrá v mládí, ale škodlivá v pozdějším životě, je známá jako „antagonistická pleiotropie“ (Rose & Graves, 1989; Williams, 1957).
Když se budeme zabývat tím, jak přirozený výběr mohl utvářet role buněčného stárnutí, budou relevantní oba výše uvedené koncepty – jednorázová soma a antagonistická pleiotropie. Koncepty se doplňují, nikoli vylučují.
3|BUNĚČNÁ SENESCENCE JAKO PROTIRAKOVINOVÁ STRATEGIE
Jaký by mohl být „účel“ buněčného stárnutí? Přesněji řečeno, jaká by mohla být selektivní výhoda, která vedla k jeho evoluci u tolika druhů? Nejpopulárnější myšlenkou současnosti je, že buněčné stárnutí je mechanismus, který pomáhá potlačit rozvoj rakoviny (Sager, 1991). Tuto myšlenku navrhlo také několik dalších (Campisi, 2013; Campisi & d'Adda di Fagagna, 2007; Coppe et al., 2010) (a odkazy uvnitř) a je koncepčně vizualizována na obrázku 1. Podle tohoto návrhu jsou různé typy stresu a poškození mohou vést ke vzniku premaligních buněk. Buněčné stárnutí je pak mechanismem, který tento stav snímá a zabraňuje další progresi do plně rozvinutého maligního stavu tím, že buňku trvale stáhne z buněčného cyklu.
Senescentní buňky však mají vlastnost, která se s tímto obrazem jen těžko slučuje. Vykazují sekreční fenotyp spojený se stárnutím (SASP), který se skládá z komplexního koktejlu chemokinů, cytokinů, růstových faktorů a proteáz (Coppe et al., 2010; de Keizer, 2017). SASP může mít širokou škálu účinků, z nichž většina je negativní pro zdraví organismu (obrázek 1). Efekt přihlížejícího například popisuje skutečnost, že parakrinní působení SASP může přeměnit sousední buňky na nové senescentní buňky (Acosta a kol., 2013; Nelson a kol., 2012; da Silva a kol., 2018; Xu a kol. al., 2017), čímž se zesílí a rozšíří původní generace senescentních buněk k ovlivnění nepoškozených, zdravých buněk. Ačkoli je složení SASP poněkud heterogenní (Coppe et al., 2010), obecnou vlastností je, že podporuje zánět (Campisi, 2013; Hernandez-Segura et al., 2018). Chronický zánět je zase důležitým přispěvatelem k mnoha nemocem souvisejícím s věkem a bylo prokázáno, že senescentní buňky, přímo nebo nepřímo, jsou kauzálně zapojeny do nemocí, jako je ateroskleróza, fibróza, pankreatitida, osteoartritida, Alzheimerova choroba a metabolické poruchy (Pignolo a kol., 2020). Ale možná nejpřekvapivější je, že senescentní buňky (prostřednictvím SASP) se také účastní karcinogeneze a hyperplasické patologie (Campisi, 2013; Gonzalez-Meljem et al., 2018; Wang et al., 2017; Yanai & Fraifeld, 2018). Již nějakou dobu je známo, že akutní rány urychlují růst nádorů ve svém okolí (Stuelten et al., 2008). Vzhledem k tomu, že senescentní buňky se podílejí na hojení ran (viz další část), je to další indikace protumorogenních vlastností SASP a senescentních buněk.
Jak se může proces, který iniciuje nebo podporuje rakovinu, vyvinout ve stejnou dobu jako protirakovinná strategie? Navrhovaným vysvětlením je antagonistická pleiotropie (Campisi, 2013; Campisi & d'Adda di Fagagna, 2007; Coppe et al., 2010). Pokud má mechanismus příznivé účinky v raném věku, ale negativní účinky v pozdním věku, evoluční teorie předpovídá, že protože síla přirozeného výběru s věkem klesá, může mít takový rys celkovou selekční výhodu (Williams, 1957). Pokud tedy buněčné stárnutí zabraňuje rakovině u mladých zvířat, ale v pozdějším věku rakovinu také podporuje, rané přínosy by mohly převážit pozdější nepříznivé účinky, takže se stárnutí přesto může vyvinout.
Evoluční teorie by však také předpovídala, že v průběhu evoluce se spojení mezi prospěšnými a škodlivými účinky přeruší, pokud je to možné. To znamená, že pokud negativní účinky, které se objevují jako důsledek SASP, mohou být odděleny (tj. eliminovány) od pozitivních, protinádorových účinků buněčného stárnutí, pak bychom očekávali, že k tomu dojde, protože by to zvýšilo celkovou zdatnost. Zřejmým způsobem, jak toho dosáhnout, by jednoduše bylo, kdyby senescentní buňky neměly související sekreční fenotyp. Pravda, v tomto případě by byly ovlivněny i příznivé účinky SASP na hojení ran a obnovu tkání, ale tato funkce by mohla být delegována na jiné typy buněk. Podobně lze převést autokrinní posílení senescentního stavu, které se zdá být zprostředkováno některými složkami SASP (Acosta et al., 2008; Campisi, 2013; Hinds & Pietruska, 2017; Kuilman et al., 2008). čistě intracelulární signální dráha.
Kromě toho existuje ještě radikálnější způsob, jak se vyhnout negativním účinkům senescentních buněk a SASP a přitom stále poskytovat protirakovinný mechanismus. Tou alternativou je samozřejmě apoptóza. Pokud buňka utrpěla poškození, které nelze opravit, může buňka spustit sebevražedný program, který vede k odstranění z těla, aniž by způsobil jakýkoli zánět. Apoptóza je účinný protirakovinný mechanismus a její deregulace se podílí na mnoha typech rakoviny (Pistritto et al., 2016). Nejen, že se apoptóza vyhýbá negativním důsledkům SASP, ale také zcela odstraňuje potenciálně premaligní buňky, místo aby je pouze učinila postmitotickými. Apoptóza se tedy zdá být protirakovinnou strategií s mnohem méně problémy než buněčná senescence.
Nedávná analýza 279 lidských genů zapojených do buněčné stárnutí navíc ukázala, že geny indukující buněčné stárnutí se statisticky překrývají s geny proti dlouhověkosti a nikoli s geny pro dlouhověkost (Avelar et al., 2020). Stejná studie také prokázala, že existuje významné překrývání onkogenů s induktory i inhibitory stárnutí. To není to, co by se očekávalo od život prodlužujícího protinádorového mechanismu.
4|CELLUL AR SENESCENCE JAKO MECHANISMUS OPRAVY A REMODELACE TKÁNĚ
Jak je vysvětleno v poslední části, myšlenka, že se buněčné stárnutí vyvinulo jako protirakovinná strategie, má logické problémy a nesrovnalosti. Zde nyní představujeme alternativní pohled na evoluci buněčného stárnutí, který snadno vysvětluje mnohá experimentální pozorování a který je v souladu s evoluční teorií. V zásadě je myšlenka založena na zjištění, že sekreční fenotyp spojený se stárnutím (SASP) je důležitý pro několik biologických procesů, které nesouvisejí se stárnutím, jako je omezení jaterní fibrózy (Krizhanovsky et al., 2008), zrychlení a zlepšení hojení ran (Demaria et al., 2014, 2015), regenerace tkání (Ritschka et al., 2017) a regenerace končetin mloků (Yun et al., 2015). Kromě toho se senescentní buňky nacházejí také během embryogeneze v apikálním ektodermálním hřebenu a nervové střešní ploténce (Storer et al., 2013), během vývoje placenty (Chuprin et al., 2013; Gal et al., 2019; Rajagopalan & Long, 2012) a také během vývoje vnitřního ucha (Gibaja et al., 2019; Munoz-Espin et al., 2013) (nedávný přehled viz také Rhinn et al., (2019)). Ale místo toho, abychom tato pozorování považovali za vedlejší účinek, lze je považovat za výchozí bod k poskytnutí jiného vysvětlení vývoje buněčného stárnutí.
Jak již dříve pozorovali jiní, senescentní buňky se podílejí na vývoji a také na hojení tkání a ran a my navrhujeme, že toto je hnací síla jejich evoluce. Pojem „senescentní buňka“ by tak mohl být značně zavádějící a odvádět pozornost od hlavního úkolu tohoto speciálního fyziologického buněčného stavu. Senescentní buňky se nevytvářejí pouze opotřebováním telomer, ale také mnoha poškozeními a stresovými faktory, jako jsou reaktivní formy kyslíku, záření nebo chemoterapie (Campisi, 2013; Coppe et al., 2010). Takové stresové faktory mohou vznikat přímo během poškození tkáně nebo mohou být produkovány jako důsledek takového poškození. V každém případě senescentní buňky vznikají v místě poškození a remodelace tkáně a podporují proces hojení prostřednictvím svého sekrečního fenotypu. SASP způsobuje zánět, přitahuje imunitní buňky a usnadňuje imunitním buňkám dostat se do problémové oblasti prostřednictvím svých matricových metaloproteáz. V tomto scénáři SASP není škodlivý, ale slouží specifickému účelu. V důsledku toho také dává smysl, že senescentní buňky jsou odolné vůči apoptóze, protože musí být přítomny, dokud není dokončen proces hojení. Kromě toho by bylo užitečné, kdyby senescentní buňky mohly změnit normální buňky ve svém sousedství na senescentní buňky jako způsob, jak zesílit léčivý signál. To může vysvětlit pozorovaný vedlejší účinek senescentních buněk (Acosta et al., 2013; Nelson et al., 2012; da Silva et al., 2018; Xu et al., 2017). Po dokončení hojení rány/remodelaci tkáně jsou senescentní buňky odstraněny. To je normálně prováděno imunitním systémem a zdá se, že do procesu jsou zapojeny různé typy buněk od makrofágů a přirozených zabíječů až po cytotoxické T buňky (Burton & Stolzing, 2018; Kale a kol., 2020; Yun a kol., 2015 ). U imunokompromitovaných myší, které mají defektní cytotoxické T buňky, se skutečně vyvíjí chronický zánět, mnohem rychleji akumulují senescentní buňky a umírají o 20 procent dříve (Ovadya et al., 2018). Evoluční kořeny apoptózy a buněčného stárnutí sahají hluboko. Bylo navrženo, že apoptóza u eukaryot je spojena s endosymbiotickým původem mitochondrií (Blackstone & Kirkwood, 2003), ale programovanou buněčnou smrt lze nalézt také u různých bakterií, aby se zvýšila zdatnost kolonie v reakci na nepříznivé podmínky (Allocati et al., 2015). Podobně může být buněčná senescence ve formě omezeného potenciálu dělení také vysledována zpět k jednobuněčným organismům, jako jsou kvasinky (Jazwinski, 1990) a bakterie (Stewart et al., 2005). Oba mechanismy plní podle našeho názoru důležité a doplňkové funkce v dospělém organismu (odstranění různých typů poškození) i během vývoje (viz výše). Zásadní roli senescentních buněk během remodelace a regenerace tkáně podporují zjištění, že přechodná expozice SASP indukuje de- a trans-diferenciaci v primárních myších keratinocytech (Ritschka et al., 2017). Spolu s důležitou úlohou senescentních buněk během regenerace končetin mloka (Yun et al., 2015) (která zahrnuje také dediferenciaci) to posiluje myšlenku, že primární role buněčného stárnutí spočívá v opravě poškození a vzorování tkání.
5|SENESCENCE V POST-MITOTICKÝCH BUŇKÁCH
Neočekávaným nedávným zjištěním je, že postmitotické buňky (jako jsou kardiomyocyty, neurony, adipocyty, gangliové buňky sítnice, osteocyty a osteoblasty) mohou během stárnutí získat velké množství senescentních markerů (Farr et al., 2016; Jurk et al., 2012; Minamino a kol., 2009; Oubaha a kol., 2016; Anderson a kol., 2019). Důležité je, že se ukázalo, že eliminace senescentních postmitotických buněk je také doprovázena příznivými účinky v těchto tkáních (Anderson et al., 2019; Farr et al., 2017; Ogrodnik et al., 2019). Ukázalo se, že senescentní postmitotické buňky exprimují geny jako p21 a p16, které se podílejí na zastavení buněčného cyklu a mají SASP (Anderson et al., 2019; Farr et al., 2017; Jurk et al., 2012). V případě postmitotické senescence máme na mysli buňky, které jsou terminálně diferencované (již vystoupily z buněčného cyklu), ale u kterých dochází během stárnutí k exacerbaci několika markerů stárnutí. Existující důkazy naznačují, že tento proces je výsledkem náhodného molekulárního poškození a skutečnost, že je vidět nárůst závislý na věku, naznačuje, že dráhy zprostředkovávající terminální diferenciaci jsou zcela odlišné.
Mechanismy, které jsou základem stárnutí v postmitotických buňkách, jsou méně jasné, nicméně bylo navrženo, že podobně jako situace v buňkách kompetentních pro proliferaci mohou být hnacími faktory mitochondriální dysfunkce a oxidační poškození oblastí telomer (Anderson et al., 2019 ). Z evoluční perspektivy není zřejmé, proč by se v postmitotických buňkách aktivně selektovaly dráhy stárnutí. Pokud je stárnutí buněk protirakovinnou strategií, nikdo by nečekal, že ji najdeme v postmitotických buňkách. Pokud by však stárnutí buněk bylo obecným mechanismem proti poškození, bylo by také užitečné pro postmitotické buňky. Imunitní a kmenové buňky přitahované prostřednictvím fenotypu podobného SASP by mohly pomoci odstranit poškození ve tkáních s převážně postmitotickými buňkami.
6|PROČ SE SENESCENTNÍ BUŇKY Akumulují S VĚKEM?
Evoluce senescentních buněk, jak je nastíněna v poslední části, zahrnuje důležité experimentální poznatky, ale ještě nevysvětluje, proč by se tento speciální typ buněk měl vlastně hromadit s chronologickým věkem. Ve skutečnosti, jak je nastíněno výše, by měla existovat pouze velmi nízká úroveň senescentních buněk, což představuje dynamickou rovnováhu mezi tím, že jsou vytvořeny během opravy/remodelace tkáně a odstraněny imunitním systémem na konci procesu opravy.
Senescentní buňky se však s věkem hromadí, což způsobuje všechny výše popsané negativní účinky. Jaký by mohl být mechanický důvod této akumulace? Bohužel je v současné době známo příliš málo faktů, které by navrhovaly jediný specifický mechanismus, ale místo toho je možných několik pravděpodobných scénářů. V této části stručně popíšeme několik různých scénářů a prozkoumáme důsledky pomocí některých jednoduchých matematických modelů „hraček“.
6,1|Scénář 1: Imunitní systém se časem zhoršuje
Nejjednodušším vysvětlením vzestupu senescentních buněk v našem kontextu by bylo předpokládat, že imunitní systém funkčně klesá v důsledku procesu stárnutí (Aw et al., 2007). V tomto scénáři zůstává hnací síla akumulace senescentních buněk (primární proces stárnutí) neznámá. Může však být informativní vidět, jaké důsledky můžeme očekávat pro dynamiku akumulačního procesu. Pro tento účel předpokládáme, že senescentní buňky (SC) se objevují konstantní rychlostí „k“ a jsou odstraňovány prostřednictvím interakce s imunitním systémem, IM(t), přičemž „d“ je konstanta kontrolující sílu interakce. . Abychom to zjednodušili, předpokládáme, že samotná funkce imunitního systému jednoduše klesá s exponenciálním výrazem.
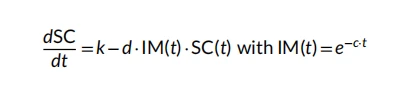
Obrázek 2 ukazuje typické výsledky simulace podle tohoto scénáře pro různé hodnoty parametru "c", který řídí rychlost rozpadu imunitního systému. Není divu, že pokles imunitního systému vede v průběhu času k nelineární akumulaci senescentních buněk. Z logaritmické prezentace (obrázek 2 vpravo) je snadné vidět, že tento nárůst je nejprve exponenciální a později se změní v lineární akumulaci, protože IM(t) se účinně stane nulou. Je také vidět, že pouze pokud nedojde k poklesu imunitního systému (c=0), je dosaženo ustálené úrovně SC, která je dána k/d (zde 10−4).

OBRÁZEK 2 Křivky ukazují typický vztah mezi časem (tj. věkem organismu) a úrovní senescentních buněk, SC, podle scénáře 1. Graf na levé straně ukazuje výsledky na lineární stupnici, zatímco pravý graf zobrazuje SC na logaritmickou stupnici. Použité parametry byly k=0.01 a d=100 se zobrazenými hodnotami pro c. Pro tento jednoduchý model se SC udává v libovolných jednotkách
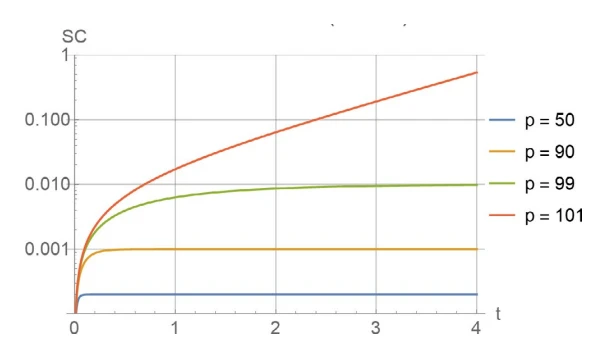
OBRÁZEK 3 Křivky ukazují typický vztah mezi časem a úrovní senescentních buněk, SC podle scénáře 2. Graf je nakreslen na logaritmické stupnici a ukazuje akumulaci SC pro různé hodnoty parametru p. Další použité parametry byly IM=1, k=0.01 a d=100