Imunostimulační protilátkové konjugáty vyvolávají silnou myeloidní aktivaci a trvanlivou protinádorovou imunitu (část 2)
Jun 17, 2022
Pro více informací prosím kontaktujtedavid.wan@wecistanche.com
Diskuse:
Zde prezentované výsledky poskytují přesvědčivé důkazy podporující ISAC jako novou technologii pro imunoterapii nádorů. In vitro modelování ISAC prokázalo jejich schopnost aktivovat primární lidské myeloidní APC způsobem závislým na FcR a TLR a zlepšit zkříženou prezentaci antigenu pomocí myšího modelového systému OVA. Aktivace prostřednictvím upregulace kostimulační molekuly CD40 nebyla pozorována pouze in vitro, ale byla také pozorována na myeloidních APC sídlících v nádoru v modelech xenograftů i syngenních nádorů. Jedním z pozoruhodných zjištění této studie bylo, že kovalentní připojení agonisty TLR k monoklonální protilátka cílená na nádor ve formě ISAC změnila imunostimulační výsledek a celkovou účinnost, která se typicky předpokládá u agonistů TLR. Srovnání lokálního podávání trastuzumabu kombinovaného s T785 se systémovým podáváním T785-ISAC ukázalo, že pouze ISAC byl úspěšný při snižování nádorové zátěže. Lokální podávání směsi neposkytlo žádný přínos v modelu nádorového xenoimplantátu HCC1954 se srovnatelnými účinky jako samotný trastuzumab. Toto zjištění podporuje, že nejen lokální podávání, ale také současné podávání protilátky a agonisty TLR je zásadní pro terapeutickou účinnost pozorovanou u ISAC. Mechanistická data generovaná v modelu nádorového xenoimplantátu HCC1954 prokázala požadavek in vivo na zapojení FcR a zapojení TLR pro účinnost, protože jak TLRnull-ISAC, tak Fc-inaktivní ISAC selhaly při kontrole růstu nádoru. Kromě toho systémové podávání ISAC vedlo k trvalé protinádorové účinnosti u potkaních modelů HER2 plus syngenních nádorů a lidských HER2 plus xenoimplantátů rakoviny prsu, které byly rezistentní vůči léčbě nekonjugovanou protilátkou. HER2 byl vybrán jako cílový antigen pro preklinické studie in vivo, protože neoadjuvantní, adjuvantní a v první linii terapie u pacientek s lokálně pokročilým nebo metastatickým karcinomem prsu dominují HER{16}}cílené protilátky, které nejsou navrženy tak, aby stimulovaly imunitní systém. systém a schválené protilátky blokující inhibitor kontrolního bodu T buněk byly u těchto pacientů minimálně účinné. Tito pacienti by mohli mít prospěch z ISAC, které si zachovávají funkčnost původních protilátek a přidávají významný imunostimulační potenciál. Jako u každého imunoterapeutika existuje možnost vytvářet nebo exacerbovat protilékové protilátky a v případě ISAC může nakonec záviset na imunogenicitě původní protilátky. Tato hodnocení se nejlépe provádějí klinicky a trastuzumab může být ideální pro vyšetření, protože hlášená míra imunogenicity Herceptinu™ u pacientů je nižší než 1 procento. In vivo data demonstrující požadavek na současné dodávání protilátky a adjuvans jsou dále podpořena prací podrobně popisující intracelulární signalizaci řídící aktivitu ISAC prostřednictvím simultánní signalizace FcR a TLR. Zatímco další studie mohou dále objasnit dynamiku intracelulární signalizace ISAC, studie zde popsané zdůrazňují potenciální signalizační výhody konjugace agonisty TLR s protilátkou, jak je typicky pozorováno, když protilátky zasahují patogeny během ochranné imunity. Analýza intracelulární signalizace založená na CyTOF k dalšímu použití byly použity lidské PBMCpochopit a rozlišit aktivitu směsi a ISAC. Výsledky odhalily zesílený podpis po stimulaci ISAC ve srovnání s tím, který vyvolala směs jednotlivých složek, což dále podporuje potenciál pro zvýšení aktivity prostřednictvím chemické konjugace protilátky a agonisty TLR. Zatímco TLR7 a TLR8-specifickou potenci ISAC nelze měřit pomocí reportérových buněk HEK293, demonstracefosforylace IRF-7 indukované ISAC naznačuje aktivní agonismus TLR7/8, protože je známo, že IRF-7 je downstream od TLR7 a TLR8 MyD88-řízené signalizace 30. Data naznačují, že ISAC nejenže vyvolává zvýšenou signalizaci kanonických drah spojených s dráhami TLR a Fc R, ale také snižuje práh párové aktivace potřebný ke spuštění fosforylace downstream signálních proteinů, jako je ribozomální protein S6, klíčový regulátor translace proteinu v buňce. Vysoké skóre DREMI, zvláště naměřenév monocytech stejně jako v DC podporují silnou podmíněnou závislost indukovanou stimulací pomocí ISAC, která se u směsi nevyskytuje. Tento jev můžebýt usnadněn intracelulárními změnami v množství, lokalizaci a/nebo náboru receptorů v endozomu, ale k potvrzení přesného mechanismu je zapotřebí další výzkum. Důležité je, že analýza DREMI identifikovala vztahy konzistentní se známými signálními partnery jako výsledek stimulace ISAC. Díky své známé inhibiciroli v kanonické NF-κB signalizaci 49 jsme pozorovali sníženou závislost (tj. DREMI skóre)mezi pIRF7 a inhibitorem kappa B (IkB), když byly myeloidní buňky stimulovány pomocí ISAC. Souhrnně tyto výsledky podporují zesílenou a trvalou intracelulární odpověď prostřednictvím relevantních molekul signální transdukční dráhy po stimulaci ISAC navíc k synergii mezi TLR a signálními dráhami souvisejícími s FcR.
Kliknutím sem se dozvíte více o Cistanche
Naše výsledky odhalily, že funkční interakce Fc-FcR jsou zásadní pro aktivaci myeloidních APC zprostředkovanou ISAC. Nativní IgG1 Fc, který má nejvyšší afinitu pro aktivační FcR z přirozeně existujících izotypů IgG, byl lepší než ostatní izotypy IgG s nižší afinitou pro aktivační FcR. Další zvýšení interakce Fc-FcR prostřednictvím fukosylace zvýšilo účinnost, zatímco snížení interakce Fc-FcR prostřednictvím glykosylace účinnost snížilo. Jak se očekávalo, k vyvolání maximální stimulace byla pro ISAC vyžadována signalizace Syk downstream od zapojení FcR navíc k následnému agonismu TLR. Tato zjištění jsou podpořena studiemi prokazujícími dramatické zvýšení myeloidní stimulace po kostimulaci s IgG vázaným na destičku a agonistou TLR PAM3CSK 50. Rovněž naznačují, že rozsáhlejší zesíťování Fc na povrchu cílové buňky nebo v nastavení destičky in vitro Po stimulaci ISAC, na rozdíl od směsi komponent, může dojít k aktivaci diferenciálních signalizačních sítí. Translace platformy ISAC in vivo byla nejprve hodnocena s lidskými HER2 plus nádorovými buněčnými liniemi u myší, které postrádají plně funkční B, T a NK buňky. Pozoruhodné je, že trastuzumab ISAC byl signifikantně účinnější než trastuzumab u více nádorů s různými úrovněmi exprese HER2. Kromě toho data prokázala závislost protinádorových účinků ISAC na cílení na nádor, protože izotyp-ISAC nebyl schopen vyvolat regresi a clearance nádoru. Zatímco modelování in vitro prokázalo nutnost aktivity TLR a FcR pro umožnění účinnosti ISAC, takové modely nebyly úspěšné v měření závislosti na cílení antigenu ISAC. Nebyly naměřeny žádné rozdíly mezi cílenými a izotypovými T785-ISAC v testech na destičkách se zdravými lidskými myeloidními APC společně kultivovanýmis nádorovými buňkami (data nejsou uvedena).Nedostatek cílové závislosti měřené in vitro lze připsat mnoha faktorům: bylo zjištěno, že myeloidní APC upregulují Fc R na buněčném povrchu po kultivaci in vitro, což může zvýšit schopnost rozpustného IgG vázat se na Fc R, což vede k zesílený signál z izotypu ISAC.Navíc kultivovanýSystém postrádá endogenní IgG a další sérové faktory přítomné in vivo, které mohou soutěžit o FcR in vivo a tlumit účinky pozorované u izotypu ISAC.Nicméně modely in vivo prokázaly závislost ISAC na zacílení na nádor pro protinádorovou účinnost.Nejenže izotyp ISAC ve studiích účinnosti vykazoval malý vliv na růst nádoru, ale bylo také zjištěno, že nezpůsobují žádný vliv na genetickou úroveň v nádorech, jak je ukázáno na modelech xenoimplantátů a syngenních nádorů.Kromě prokázání účinnosti závislé na cíli in vivo byl T785-ISAC zvířaty tolerován a indukoval minimální úbytek hmotnosti, což vykazovalo malé známky mimocílových účinků a nežádoucích účinků u myši.Tato data dále podporují schopnost systémově dodávaného ISAC zacíleného na nádor cestovat do nádoru a vyvolat lokalizovanou prozánětlivou protinádorovou odpověď.
Důležitost efektorových funkcí zprostředkovaných myeloidními buňkami byla prokázána ve studiích s deplecí buněk, ve kterých deplece fagocytů klodronátem odstranila schopnost ISAC indukovat odstranění nádoru.Je zajímavé, že ačkoli nádory zpočátku ustoupily po vyčerpání Gr1 pozitivních buněk, nádory následně vyrostly.K tomuto jevu mohlo dojít v důsledku vyčerpání prekurzorů fagocytů, jako jsou monocyty, které se později mohly diferencovat na funkční a zralé fagocytární buňky 51.Další molekulární a buněčné poznatky byly získány po kvantifikaci hladin mRNA a změn po léčbě ISAC.Tato data byla dále potvrzena imunohistochemií a také kvantifikací proteinů, což ukazuje na infiltraci myeloidních buněk do nádoru podéls produkcí prozánětlivého cytokinu TNF a myeloidních chemoatraktantů CCL2 (MCP-1) a CCL4 (Mip1b).
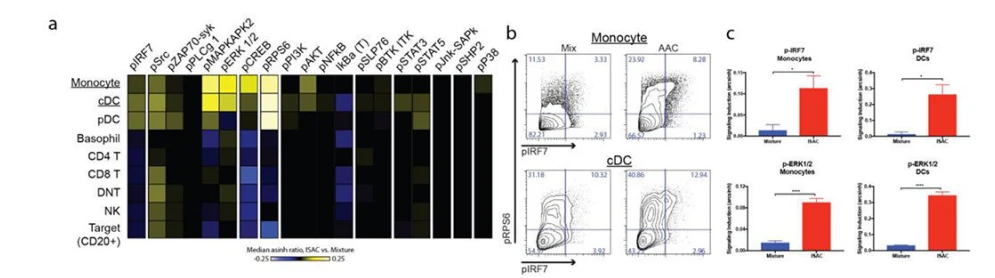
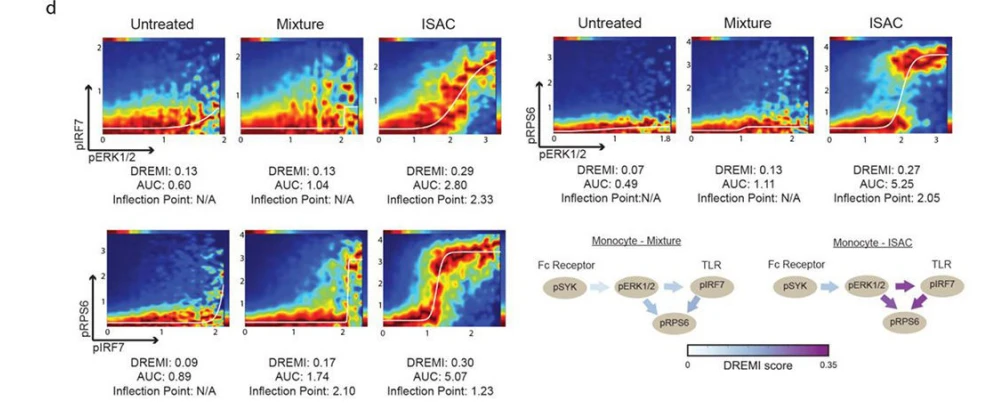
Obrázek 2: ISACS vyvolává odlišné signální vzorce v myeloidních APC.(ad) Čerstvě izolované lidské PBMC byly stimulovány 1 μM rituximab-ISAC nebo ekvimolárním ekvivalentem směsi v přítomnosti nádorových buněk CD20 plus Toledo v poměru 1:1 poměru po dobu 15 minut. (a) Střední arcsinh poměr ISAC k signalizaci byl měřen po stimulaci směsi pro různé fosfoproteiny, jak je znázorněno na teplotní mapě, přičemž žlutá indikovala zvýšenou signalizaci a modrá indikovala snížený signál. (b) Reprezentativní grafy průtokové cytometrie pro pIRF7 a pRPS6 v monocytech a cDC. (c) Změna násobku indukované signalizace byla vypočtena jako poměr arcsinh k nestimulované kontrole. Fosforylace IRF7 a ERK1/2 byla měřena v monocytech a cDC po stimulaci ISAC nebo směsí. Data jsou z jednoho experimentu se šesti dárci (průměr a SEM); *P<0.05,><0.01,><0.001,><0.0001. (d)="" representative="" drevi="" plots="" following="" dremi="" analysis="" with="" the="" area="" under="" the="" curve="" (auc)="" and="" inflection="" point="" (ip)="" denoted.="" drevi="" plots="" were="" visually="" inspected="" for="" curve="" fit="" and="" signal-to-noise,="" and="" inflection="" points="" were="" calculated="" for="" those="" with="" proper="" sigmoidal="" curve="" fits="" (n/a="" indicates="" no="" curve="">
Receptory pro CCL2 a CCL4, CCR2 a CCR5 jsou exprimovány na monocytech a makrofázích, v daném pořadí, což naznačuje, že tyto typy buněk by mohly být rekrutovány do nádorů ošetřených ISAC.Kromě toho mRNA Cxcl9 a Cxcl11, které kódují chemokiny specifické pro T buňky a jsou exprimovány DC v TME, byly také upregulovány léčbou trastuzumabem ISAC (doplňkový obrázek 23) 52,53.Trastuzumab ISAC se zvýšenou účinností s použitím agonisty CL264 vykazoval zvýšenou účinnost v modelech nádorů exprimujících méně HER2.To je důležité vzhledem k tomu, že pacientky, jejichž nádory exprimují nízkou hladinu HER2, mají omezenější možnosti léčby a nejsou způsobilé pro trastuzumab nebo jinou terapii obsahující trastuzumab.Přechodný úbytek hmotnosti asi 5-10 procent a zvýšená systémová sekrece TNF byly pozorovány u zvířat léčených jak cílenými, tak isotypovými CL264-ISAC, což svědčí o možných mimocílových účincích kromě silných anti- pozorována aktivita nádoru.Souhrnná data prezentovaná v modelech xenoimplantátů naznačují, že fagocytóza zprostředkovaná ISAC je účinným mechanismem k eliminaci nádorů, ale tento mechanismus může být posílen po antigenní prezentaci nádorových neoantigenů T buňkám u imunokompetentních hostitelů.Za tímto účelem byla zkoumána schopnost ISAC podporovat protinádorovou imunitu u myší divokého typu s anti-rHER2 ISAC ve dvou různýchrHER2-vyjadřující syngenní modely (MMC a CT26-rHER2). ISAC obsahující T785 i CL264 byly hodnoceny v syngenním modelu MMC s ohledem na vysokou expresi antigenu rHER2, protože se předpokládá, že ISAC s nižší i vyšší účinností jsou účinné s vysokou hustotou antigenu na nádorové buňce. Oba rHER2 ISAC vedly k úplnému odstranění nádoru u zvířat s velkými nádory (350-950 mm3) v modelu MMC, zatímco nekonjugovaná protilátka nedokázala kontrolovat růst nádoru. Analýza hladin transkriptu mRNA v modelu MMC odhalila dramatický posun v regulacimnoho genů 24 hodin po léčbě cíleným rHER2 T785-ISAC ve vztahu k rHER2 protilátce nebo izotypu ISAC, včetně genů zapojených do biologie myeloidních buněk, biologie TLR a adaptivních imunitních odpovědí. Imunohistochemicky byly pozorovány zvýšené infiltráty buněk exprimujících CD11c a F4/{7}}, podobně jako trend pozorovaný u modelu nádoru s xenoimplantátem HCC1954. Dále byla pozorována infiltrace CD8 T-buněkimunohistochemii podporující vytvoření adaptivní imunitní odpovědi po léčbě ISAC.
Kromě prokázané důležitosti fagocytů v modelu xenoimplantátu odhalily studie deplece v modelu syngenního nádoru MMC silnou závislost na fagocytech, protože deplece pomocí lipozomů s nabitým klodronátem zastavila protinádorové účinky zprostředkované ISAC. Kromě toho syngenní studie prokázaly kritickou roli T buněk v účinnosti ISAC. Clearance nádoru řízená ISAC byla silně závislá na aktivitě CD8 T buněk, protože deplece CD8 T buněk inhibovala protinádorovou účinnost. Data naznačují, že aktivita T buněk je řízena TLR-zprostředkovanou aktivací myeloidních buněk stimulovaných ISAC. Takový požadavek na T buňky, pravděpodobně související s prezentací antigenů asociovaných s nádorem myeloidními buňkami stimulovanými ISAC, podporuje, že ISAC pravděpodobně zprostředkovávají svou protinádorovou aktivitu prostřednictvím alespoň dvou mechanismů: fagocytózy a prezentace antigenu. Zatímco fagocyty poskytují časnou protinádorovou odpověď po léčbě ISAC, antigenní aktivace T buněk nakonec poskytuje odstranění nádoru a trvalé účinky měřené v plně imunokompetentních modelech. Tato kombinace by byla vysoce žádoucí pro pacienty s rakovinou, protože léčba ISAC by mohla vést k silné a trvalé protinádorové imunitě. Abychom dále prozkoumali význam aktivace T buněk zprostředkované ISAC, myši vyléčené z CT26- rHER2 nádorů po rHER2 CL 264-Léčba ISAC byla obnovena po 30 dnech bez nádoru s rodičovskou buněčnou linií CT26 neexprimující rHER2. Zvířata vyléčená rHER2-CT26 byla chráněna před expozicí CT26, zatímco zvířata bez naivních nádorů nebyla schopna odmítnout růst nádoru. Navíc, aby se ukázalo, že ochrana byla specifická pro nádorovou buněčnou linii CT26, byl 4T1 simultánně implantován do kontralaterálního boku rodičovských myší po expozici CT26. Ačkoli nádory CT26 u myší vyléčených her-CT26 nerostly, růst nádoru 4T1 byl neomezený, a tak poskytuje důkaz, že imunita je antigenně specifická a závisí na adaptivní imunitní reakci. Kromě toho tyto studie naznačují, že nádorově cílené ISAC zprostředkovávají imunologickou paměť nejen původně cílenému nádorovému antigenu, ale také necíleným antigenům. Tato data také naznačují, že myeloidní buňky mohou prezentovat antigeny spojené s nádorem, které řídí další CTL reakce. Důsledky těchto zjištění ukazují, že i když je cílový nádorový antigen následně downregulován nebo není schopen se vázat na ISAC, imunologická paměť již byla vyvolána a je schopna udržet trvalou odpověď. Tato odpověď neníomezena na antigen, na který se zaměřuje ISAC, ale také na další, neidentifikované antigeny exprimované v nádoru.Celkově vzato tato data naznačují, že ISAC vyvolávají kvalitativně a kvantitativně odlišnou biologii týkající se buněčné aktivace a prezentace antigenu, proliferaci T buněk a trvalou protinádorovou imunitu.
Methods and Materials: Antibody Conjugation & Characterization For conjugation of adjuvants to the antibody, adjuvants were first synthesized to include a linker flanked by a reactive group. Conjugates produced using two-step methods were first synthesized through the modification of mAb lysine residues with a heterobifunctional crosslinker SATA. Deprotection of the acetylated thiol exposed a reactive thiol which was then reacted at room temperature for 2-4 hours with an adjuvant-linker flanked by a thio-reactive maleimide. For constructs produced using a single-step conjugation method, TFP esters were then conjugated to an IgG1 antibody. The TFP esters were dissolved in anhydrous DMSO to make a 20 mM stock solution and 5-10 molar equivalents (relative to the antibody) were added to the IgG antibody at 10 mg/mL in PBS. The conjugation reaction was performed at 4-40°C for 2-12 hours. The resulting immunoconjugates were buffer exchanged into PBS (pH 7.4) through desalting (Zeba Columns, Thermo Fisher Scientific) or dialysis to remove excess small molecular weight impurities. The final protein concentration was determined by measuring the absorbance at 280 nm on a Nanodrop 1000 spectrophotometer (Thermo Fisher Scientific). The yields were >75 procent na základě získaných bílkovin. SEC analýza detekovala minimální přítomnost agregátů a DAR byl stanoven pomocí LC/MS analýzy. Purifikované ISAC byly filtrovány přes 0,2 μm sterilní filtr a skladovány při -20 stupních až do použití. Reportérový test HEKHEK293 reportérové buňky exprimující lidský TLR7 nebo lidský TLR8 byly zakoupeny od Invivogen (hub-htlr7 nebo hub-htlr8) a pro buněčnou propagaci a experimentování byly dodržovány protokoly dodavatele. Stručně, buňky byly pěstovány do 80-85 procent konfluence při 5 procentech CO2 v DMEM doplněném 10 procenty FBS, zeocinem a blasticidinem. Buňky byly poté nasazeny na 96-jamkové ploché destičky v množství 4x10⁴ buněk/jamku se substrátem obsahujícím HEK detekční médium a imunostimulační molekuly. Aktivita byla měřena pomocí čtečky destiček při vlnové délce 620-655 nm. Analýza BiacoreHis-značené proteiny Fc gama receptoru (FCGR) byly získány od R&D Systems (FCGR1 (CD64, kat. č. 1257-FC{{23} }), FCGR2A (CD32a, kat. č. 1257-FC-050), FCGR2B (CD32b, kat. č. 1875-FC-050), FCGR3A (CD16a, kat. č. {{34 }}FC-050). Vazebná analýza byla provedena na přístroji Biacore T200 v HBS-EP plus pufru (GE BR100669) s použitím čipu CM5 (GE BR100530) obsahujícího imobilizovanou anti-HIS protilátku (HIS Capture kit, GE 28995056 ).anti-His povrch a injekce obsahující pouze pufr. Byla použita metoda kinetické titrace a povrchy byly regenerovány mezi cykly injekcí 10 mM glycinu, pH 1,5. Data byla přizpůsobena pomocí vyhodnocovacího softwaru Biacore T200 (V3.1) pomocí kinetického přizpůsobení (1:1) pro FCGR1 a FCGR3A (průměr 6 běhů) a afinity v ustáleném stavu (1:1) pro FCGR2A a FCGR2B (průměr 3 běhů ).
Human Myeloid APC Isolation Myeloid APCs, which predominantly consisted of monocytes (>95%), were isolated from the whole blood of healthy donors (Stanford Blood Center) by density gradient centrifugation using a RosetteSep Human Monocyte Enrichment Cocktail (Stem Cell Technologies). Myeloid APCs were further isolated using a negative selection Human Monocyte Enrichment Kit without CD16 depletion (Stem Cell Technologies) to a final purity of >90 procent, jak bylo stanoveno průtokovou cytometrií na základě exprese CD14, CD16, CD11c a HLA-DR. Příprava nádorových buněk Toledo Buňky Toledo (ATCC) byly kultivovány v médiu doporučeném dodavatelem a udržovány při hustotách buněk doporučených dodavatelem (ATCC). Buňky byly z kultury vyjmuty, promyty a resuspendovány v PBS s 2 procenty FBS a 2 mM EDTA při 1-10x106 buněk/ml. V některých případech byly buňky následně označeny 2 uM CFSE po dobu 2 minut a poté jednou promyty RPMI-1640 (Lonza) doplněným 10 procenty FBS (Atlanta Biologicals) a 100 U/ml Pen/Strep (Lonza). Buňky byly poté fixovány ve 2% paraformaldehydu a před dalším použitím třikrát promyty PBS. Testy buněčné aktivace PBMC nebo izolované monocyty byly naneseny v množství 3x10⁵ nebo 2x10⁵ buněk na jamku na 96-jamkové destičky s plochým dnem v IMDM doplněné o 10 procent FBS (Atlanta Biologicals), 1 mM pyruvát sodný (Lonza), 100 uM neesenciální aminokyseliny (Lonza) a 100 U/ml Pen/Strep (Lonza). Pro experimenty s kokultivací monocytů a nádorů byly monocyty kultivovány s fixovanými alogenními nádorovými buňkami v poměru 3:1. Buňky byly následně inkubovány s imunostimulačními činidly nebo kontrolami po dobu 18-36 hodin při 37 stupních s 10 procenty CO2. Buněčná aktivace byla měřena prostřednictvím buněčné povrchové exprese aktivačních markerů a produkce cytokinů. Hladiny exprese povrchových markerů byly měřeny průtokovou cytometrií s protilátkami proti CD40 (5C3, BD), CD86 (IT2.2, BD), HLA-DR (L243, BD) a CD16 (3G8, BD), CD14 (MΦP9, BD) a CD123 (7G3, BD). PBMC byly analyzovány průtokovou cytometrií s protilátkami proti výše uvedeným aktivačním markerům a také markery linie CD19 (HIB19, BD), CD56 (B159, BD), CD3 (SK7, BD), CD4 (OKT4, BioLegend), CD8 (SK1, BD) a CD69 (FN50, BD). Ve všech případech byl supernatant buněčné kultury odebrán po 18 nebo 36-hodinové inkubaci a produkce cytokinů byla měřena buď pomocí souprav cytokinových kuliček (Human Inflammatory Cytokine Kit, BD Biosciences) a ELISA (souprava TNF Human ELISA, eBiosciences) Hmotnostní cytometrie PBMC byly izolovány z krve zdravých dárců a stimulovány ISAC, směsí protilátky a adjuvans, nebo žádným stimulem po dobu 5-15 minut při 37 stupních. Po stimulaci buňkybyly fixovány přidáním 16 procent PFA (vědy pro elektronovou mikroskopii) na konečnou koncentraci 1,6 procenta a inkubovány po dobu 10 minuty při pokojové teplotě (RT). Fixované buňky byly promyty médiem pro barvení buněk (CSM; PBS s 0,5 procenta BSA a 0,02 procenta azidu sodného (vše Sigma) a označeny čárovým kódem za použití přístupu na bázi palladia, jak bylo popsáno dříve54. Vzorky s čárovým kódem byly spojeny do jednoho kompozitní vzorek pro povrchové barvení.
Povrchové barvení bylo provedeno přidáním protilátek (doplňková tabulka 2) v CSM a inkubací po dobu 3{{10}} minut při teplotě místnosti. Anti-lidské protilátky byly buď zakoupeny konjugované (Fluidigm) nebo konjugované s izotopy těžkých kovů pomocí soupravy pro značení protilátek MaxPar X8 (Fluidigm) podle doporučení výrobce. Povrchově obarvené buňky byly jednou promyty v CSM a permeabilizovány MeOH po dobu 10 minut na ledu. Permeabilizované buňky byly dvakrát promyty CSM a byly přidány protilátky proti intracelulárním antigenům po dobu 30 minut při teplotě místnosti. Buňky byly promyty CSM a nakonec resuspendovány v interkalačním roztoku (1,6 procenta PFA v PBS, 0,02 procenta saponinu (Sigma) a 0,5 uM iridium-interkalátor (Fluidigm)) přes noc při 4 stupních. Před získáním dat byly vzorky promyty jednou v CSM a dvakrát v ddH20. Všechny vzorky byly filtrovány přes buněčné síto (Falcon) a resuspendovány na 1x10⁶ buněk/ml v ddH20 doplněném 1x EQ čtyřprvkovými kalibračními kuličkami (Fluidigm) a data byla získána na CyTOF2 hmotnostním cytometru (Fluidigm). Signalizační odezvy byly vyhodnoceny pomocí implementace SPADE v rámci Citibank 29. Analýzy byly provedeny na všech buňkách (bez down-samplingu), s výběrem uvedeného počtu shluků a s využitím všech relevantních povrchových markerů, ale bez intracelulárních markerů pro shlukování. Imunitní buněčné linie byly anotovány na základě jejich vysokorozměrných vzorů exprese povrchových proteinů. Statistické analýzy byly prováděny v R, open-source statistickém softwarovém prostředí. V každé buněčné podskupině, léčené skupině a dárci byla vypočtena průměrná násobná změna pro následujících dvacet fosfoproteinových markerů: p-Src, p-STAT5, p-cMET, p-AKT, p-MAPKAPK2, p-SHP2, p -SLP76, p-IRF-7, p-ZAP70/SYK, p-CREB, p-NFKB, p-PI3K, IKB (celkem), p-PLCG1, p-ERK1/2, p-p38, p -BTK/ITK, p-S6, p-STAT3 a p-JNK/SAPK. Průměrná násobná změna byla vážena celkovým počtem buněk v každém shluku, jak je definováno po shlukování SPADE. Byly provedeny párové t-testy, aby se odhadl rozdíl v průměrné násobné změně a aby se otestovala nulová hypotéza, že nebyl žádný rozdíl v průměrné násobné změně každého markeru mezi léčebnými a kontrolními podmínkami.
Experimentální postup modelu xenograftového nádoru Nádorové buněčné linie byly zakoupeny od ATCC (NCI-N87, HCC1954 a COLO205) nebo AddexBio (JIMT-1) a pěstovány podle pokynů výrobce. Buňky byly sklizeny, když dosáhly 80-90 procent konfluence oddělením Accutase (Stemcell), promyty PBS, resuspendovány na 40 x 106 buněk/ml v PBS a umístěny na led na ne déle než dvě hodiny. Bezprostředně před implantací byly suspendované buňky smíchány se stejným objemem Cultrex PathClear BME, Type 3 (R&D Systems) a 100 μl směsi (2 x 10⁶ buněk) bylo implantováno subkutánně do pravého boku během 6-8- týdne -staré samice myší následovně: buňky NCI-N87 a COLO205 byly implantovány myším NSG (Jackson Laboratory), buňky HCC1954 a JIMT-1 byly implantovány do Rag2/IL2rg double knockout (Taconic) a HCC1954 (pro posouzení pomocí T785-ISAC) byly implantovány do NSG respSCID/béžové myši (Jackson Laboratory nebo Taconic a Envigo). Velikost nádoru byla zaznamenávána dvakrát týdně a byla odhadnuta pomocí následujícího vzorce: (délka x šířka2)/2. Jakmile nádory dosáhly 50-100 mm3, obvykle do jednoho týdne od implantace nádoru, byla zahájena léčba. Myši byly randomizovány podle velikosti nádoru do léčebných skupin před počáteční léčbou. Trastuzumab (EirGenix; EG12014), trastuzumab ISAC nebo izotyp ISAC byly připraveny v PBS v koncentraci 1 mg/ml a podávány v dávce 5 mg/kg intraperitoneálně každých pět dní (Q5D) celkem v šesti dávkách. Myši, jejichž nádory přesáhly 2000 mm3, byly usmrceny.
Experimentální postup buněčné deplece HCC1954 a MMC K depleci makrofágů a dalších fagocytárních buněk byly myši nesoucí nádory HCC1954 nebo MMC ošetřeny intraperitoneální injekcí dva dny před počáteční léčbou ISAC klodronátovými lipozomy nebo kontrolními lipozomy neobsahujícími klodronát jako negativní kontrolu (Encapsula, katalogové č. CLD-8901) a poté léčeni dvakrát týdně po dobu celkem tří týdnů. K depleci neutrofilů byly myši ošetřeny deplečními protilátkami 1A8, aby došlo k depleci pouze Ly6G plus neutrofilů (BioXCell katalogové č. BE0075-1) nebo RB6-8C5 k depleci Gr1 plus buněk, které zahrnují Ly6G plus neutrofily a Ly6C plus buňky (BioXCell katalogové č. BE0075) nebo izotypové kontroly 2A3 a LTF-2 (BioXCell katalogové č. BE0089 a BE0090, v tomto pořadí) dva dny před počáteční léčbou ISAC, poté léčeny dvakrát týdně po dobu tří týdnů. Deplece buněk v krvi byla potvrzena průtokovou cytometrií (doplňkový obrázek 24). Postup analýzy cytokinů a mRNA nádoru Nádory byly implantovány, jak bylo popsáno dříve, a byly odebrány pro analýzu v uvedených časových bodech po léčbě. Pro imunohistochemii a analýzu mRNA byly nádory rozděleny a mRNA byla analyzována pomocí panelu imunitního profilování myší pan-cancer NanoString. Analýza dat byla provedena pomocí softwaru nSolver Advanced Analysis Software podle doporučení výrobce. Grafy sopek byly nakresleny pomocí balíčku ggplot2 v R. Pro získání nádorových lyzátů pro analýzu cytokinů byly nádorové fragmenty uchovávány v předem připraveném pufru (1 tablety Pierce Protease Inhibitor Tablets (Thermo Fisher, katalogové č. A32965) rozpuštěné ve 20 ml T- PER činidlo pro extrakci tkáňového proteinu, Thermo Fisher, katalogové č. 78510) ve zkumavkách GentleMACS M (Miltenyi, katalogové č. 130-093-236) bezprostředně po pitvě. Vzorky nádoru byly poté disociovány pomocí GentleMACS Octo Dissociator. Všechny vzorky byly poté odstřeďovány po dobu 5 minut při 300 g. Supernatanty byly poté shromážděny do mikrocentrifugačních zkumavek a byly znovu odstředěny pomocí mikrocentrifugy. Cytokinová analýza byla provedena na supernatantech pomocí MSD. Imunohistochemie byla provedena za použití hematoxylinu a eosinu k identifikaci tkáňové architektury, stejně jako pro následující markery, pokud byly ve studiích indikovány: CD11c (CST katalogové č. 87585) a CD8 (CST katalogové č. 98941).


Obrázek 4: T785-ISAC vyvolávají silnou protinádorovou imunitu v modelech nádorových xenograftů rezistentních na trastuzumab.(ad) Myším SCID/Beige nebo NSG byla implantována nádorová buněčná linie HCC1954 a byly randomizovány, když objem nádoru dosáhl 50 – 75 mm3. (a) Myši byly ošetřeny jednou intraperitoneálně (IP) 5 mg/kg trastuzumabu T785-ISAC nebo trastuzumabu nebo molárním ekvivalentním dávkováním směsi trastuzumabu a T785 do ISAC intratumorální (IT) injekcí. Údaje jsou z jednoho experimentu s n=3-5 myšmi na skupinu. (b) Myši byly léčeny intraperitoneální injekcí 5 mg/kg trastuzumabu, trastuzumabu-ISAC,rituximab nebo rituximab-ISAC Q5DX6 (n= 5 myší na skupinu). (c) Myši byly ošetřeny intraperitoneální injekcí 5 mg/kg trastuzumabu, trastuzumabu T785-ISAC, trastuzumabu N297A-ISAC nebo trastuzumabu TLRnull-ISAC (n=5 myší na skupinu). (d) Nádorové buňky HCC1954 byly implantovány do myší SCID/Beige a buňky, které byly předmětem zájmu, byly vyčerpány před a během léčby trastuzumabem T785-ISAC (5 mg/kg, Q5DX3) pomocí anti-Ly6G protilátky (krysí IgG2a kontrola) klodronátové lipozomy (kontrolní lipozomy jako kontrola) nebo anti-Grl protilátka (krysí IgG2b kontrola). Údaje jsou z jednoho experimentu s n=4-6 myšmi na skupinu. (e, f) NSG nebo Rag2/IL2rg dvojitě knockoutovaným myším byla implantována nádorová buněčná linie JIMT-1 a randomizovány, když objem nádoru dosáhl 50 – 75 mm3. Myši byly následně ošetřeny indikovanou léčbou v dávce 5 mg/kg intraperitoneálně s frekvencí (e) Q5DX6nebo (f) Q5DX5 (n=3-6 myší na skupinu). (bf) Uvedená data reprezentují alespoň dva experimenty. (gj) Nádory HCC-1954 byly odebrány z kohort myší v uvedených časových bodech po léčbě jedinou dávkou 5 mg/kg ISAC nebo kontrolními protilátkami. Nádory byly zpracovány pro analýzu průtokovou cytometrií, kvantifikaci NanoString mRNA nebo fixovány ve formalínu a zalité v parafínu pro imunohistochemii. (g) Grafy sopek znázorňují log2násobnou změnu genové exprese u léčených vs izotypových kontrolních nádorů měřených pomocí NanoString po 24 hodinách (n=5 myší na skupinu). Změny s upravenou p-hodnotou < 0,05="" jsou="" zobrazeny="" červeně.="" (h)="" skóre="" genové="" signatury="" kvantifikované="" pomocí="" nsolver="" advanced="" analysis="" pathway="" score="" pro="" nádory="" analyzované="" 24="" hodin="" po="" léčbě="" (n="5" myší="" na="" skupinu).="" (i)="" analýza="" složení="" nádorových="" buněk="" průtokovou="" cytometrií="" 24="" hodin="" a="" 7="" dní="" po="" léčbě="" (n="2-4" myší="" na="" skupinu).="" data="" jsou="" reprezentativní="" pro="" alespoň="" 2="" experimenty.="" (j)="" reprezentativní="" snímky="" a="" také="" kvantifikace="" f4/80="" a="" cd11c="" ihc="" nádorů="" odebraných="" 9="" dní="" po="" každé="" indikované="" léčbě.="" měřítko="" je="" 50="" μm.="" (aj)="" data="" jsou="" zobrazena="" jako="" průměr="" s="" sem="" a="" statistiky="" jsou="" uvedeny="" s=""><0.05,><0.01,><0.001,><>
Experimentální postup modelu syngenního nádoru Buňky MMC byly získány od Dr. Disis (University of Washington) a byly kultivovány v RPMI 1640 doplněném 20 procenty FBS, 1 procentem penicilin-streptomycinu a L-glutaminu při 37 stupních a 5 procenty CO2 do {{8 }} procento splývající. Buňky CT26 (ATCC) transfekované tak, aby stabilně exprimovaly krysí protein HER2, byly pěstovány v RPMI 1640 doplněném 10 procenty FBS a 600 ug/ml selektivního antibiotika G418 (Thermo) při 37 stupních a 5 procentech CO2 až do 80-90 procent konfluence. Jakmile byly buňky dostatečně konfluentní, byly sklizeny oddělením Accutase (Stemcell) a promytím PBS. Sklizené buňky byly resuspendovány na 20 x 106 buněk/ml (MMC)nebo 5 x 10⁶ buněk/ml (CT26-rHER2) v PBS a uchovávat při 4 stupních /na ledu až do použití. 100 μLSuspendovaných buněk bylo subkutánně implantováno 6-8-týdenním myším FVB/N-TgN(MMTV-Erb2)NK1Mul/J (MMC model, The Jackson Laboratory) nebo samicím myší BALB/c (model CT26, The Jackson Laboratory) . Velikost nádoru byla měřena a zaznamenána dvakráttýden po dobu studia. Objem nádoru byl odhadnut pomocí následujícího vzorce: (délka x šířka2)/2. Jakmile nádory dosáhly 200-500 mm3 (MMC) nebo 50-100 mm3 (CT26-rHER2), obvykle do jednoho týdne od implantace nádoru, byla zahájena léčba. Myši byly randomizovány podle velikosti nádoru do léčebných skupin před zahájením léčbyléčba. Anti-rHER2 mAb (BioXCell; 7.16.4) nebo anti-rHER2-ISAC byly podávány intraperitoneálně (frekvence, jak je uvedeno v legendách obrázků) po dobu trvání studie.Myši, jejichž nádory přesáhly 2000 mm3, byly usmrceny. Byla hodnocena deplece T buněku zvířat s použitím protilátek poškozujících buňky CD4 (BioXCell; GK1.5) nebo CD8 (BioXCell; YTS 169.4). Deplece byla zahájena před implantací nádoru a pokračovala podáváním 200 ug na protilátku dvakrát týdně. Pro opětovné vyvolání nádoru byly CT26 a 4T1 buněčné linie implantovány v množství 5 x 10⁶ buněk na nádorovou linii a myši bez nádoru byly stimulovány oběma buněčnými liniemi jako kontrolami.
Doplňkový materiál Doplňkový materiál naleznete ve webové verzi na PubMed Central. Poděkování: Autoři by rádi poděkovali P. Basto, NE Reticker-Flynn, T. Prestwood a B. Mallet za jejich užitečnou diskusi. Děkujeme také Stanford Blood Center Flow Cytometry Core, konkrétně L. Tolentino, O. Choi a N.Wu. Také děkujeme Dr. Mary L. (Nora) Disis a Denise Cecil z University of Washington, kteří poskytli linii nádorových buněk MMC.

Financování: SE Ackerman byl podporován Stanford BioX Bowes Fellowship.
Reference:1. Davis TA a kol. Léčba monoklonálními protilátkami rituximab anti-CD20 u non-Hodgkinova lymfomu: bezpečnost a účinnost opakované léčby. J Clin Oncol 18, 3135-3143, doi:10.1200/JCO.2000.18.17.3135 (2000). [PubMed: 10963642]2. Grillo-Lopez AJ a kol. Rituximab: první monoklonální protilátka schválená pro léčbu lymfomu. Curr Pharm Biotechnol 1, 1–9 (2000). [PubMed: 11467356]3. Lizotte PH a kol. Multiparametrické profilování nemalobuněčných karcinomů plic odhaluje odlišné imunofenotypy. JCI Insight 1, e89014, doi:10.1172/jci.insight.89014 (2016). [PubMed: 27699239]4. Spranger S a kol. Hustota imunogenních antigenů nevysvětluje přítomnost nebo nepřítomnost mikroprostředí nádoru zaníceného T-buňkami u melanomu. Proč Natl Acad Sci USA 113, E7759– E7768, doi:10.1073/pnas.1609376113 (2016). [PubMed: 27837020]5. Beatty GL & Gladney WL Imunitní únikové mechanismy jako vodítko pro imunoterapii rakoviny. Clin Cancer Res 21, 687–692, doi:10.1158/1078-0432.CCR-14-1860 (2015). [PubMed: 25501578]6. Fridman WH, Pages F, Salutes-Fridman C & Galon J Imunitní kontext u lidských nádorů: dopad na klinický výsledek. Nat Rev Cancer 12, 298–306, doi:10.1038/nrc3245 (2012). [PubMed: 22419253]
7. Galon J & Bruni D Přístupy k léčbě imunitních horkých, změněných a studených nádorů pomocí kombinovaných imunoterapií. Nat Rev Drug Discov 18, 197–218, doi:10.1038/s41573-018-0007-y (2019). [PubMed: 30610226]8. Gabrilovich DI, Ostrand-Rosenberg S & Bronte V Koordinovaná regulace myeloidních buněk nádory. Nat Rev Immunol 12, 253–268, doi:10.1038/nri3175 (2012). [PubMed: 22437938]9. Joyce JA & Fearon DT vyloučení T buněk, imunitní privilegia a mikroprostředí nádoru. Science 348, 74–80, doi:10.1126/science.aaa6204 (2015). [PubMed: 25838376] 10. Carmi Y et al. Akt a SHP-1 jsou DC-vnitřní kontrolní body pro nádorovou imunitu. JCI Insight 1, e89020, doi:10.1172/jci.insight.89020 (2016). [PubMed: 27812544]11. Carmi Y a kol. Alogenní IgG v kombinaci se stimuly dendritických buněk indukují protinádorovou imunitu T-buněk. Nature 521, 99–104, doi:10.1038/nature14424 (2015). [PubMed: 25924063]12. Allen BM a kol. Systémová dysfunkce a plasticita imunitního mikroprostředí v modelech rakoviny. Nat Med 26, 1125–1134, doi:10.1038/s41591-020-0892-6 (2020). [PubMed: 32451499]13. Sagiv-Barfi I a kol. Eradikace spontánní malignity lokální imunoterapií. Sci Transl Med 10, doi:10.1126/scitranslmed.aan4488 (2018).14. Spitzer MH a kol. Pro účinnou imunoterapii rakoviny je nutná systémová imunita. Cell 168, 487–502 e415, doi:10.1016/j.cell.2016.12.022 (2017). [PubMed: 28111070]15. Milhem Mohammed M., Theresa Medina RG, Kirkwood John M., Buchbinder Elizabeth, Mehmi Inderjit, Niu Jiaxin, Shaheen Montaser, Weight Ryan, Margolin Kim, Luke Jason, Morris Aaron, Mauro David, Krieg Arthur M., Ribas Antoni CT{ {77}}Agonista intratumorálního toll-like receptoru (TLR9), CMP-001, v kombinaci s pembrolizumabem může zvrátit rezistenci k inhibici PD-1 ve studii fáze 1b u subjektů s pokročilým melanomem (výroční setkání AACR 2018, 2018).16. Rook AH Krása agonistů TLR pro CTCL. Krev 119, 321–322, doi:10.1182/ krev-2011-11-391243 (2012). [PubMed: 22247516]17. Singh M a kol. Efektivní vrozená a adaptivní antimelanomová imunita prostřednictvím lokalizované aktivace TLR7/8. J Immunol 193, 4722–4731, doi:10.4049/J Immunol.1401160 (2014). [PubMed:25252955]18. Zhao BG, Vasilakos JP, Tross D, Smirnov D & Klinman DM Kombinovaná terapie zaměřená na toll-like receptory 7, 8 a 9 eliminuje velké zavedené nádory. J Immunother Cancer 2, 12, doi:10.1186/2051-1426-2-12 (2014). [PubMed: 24982761]19. Jurk M a kol. Lidské TLR7 nebo TLR8 nezávisle udělují schopnost reagovat na antivirovou sloučeninu R-848. Nat Immunol 3, 499, doi:10.1038/ni0602-499 (2002). [PubMed: 12032557]20. Chattergoon MA a kol. HIV a HCV aktivují inflammasom v monocytech a makrofázích prostřednictvím endozomálních Toll-like receptorů bez indukce interferonu 1. typu. PLoS Pathog 10, e1004082, doi:10.1371/journal.bat.1004082 (2014). [PubMed: 24788318]21. Eigenbrod T, Pelka K, Latz E, Kreikemeyer B & Dalpke AH TLR8 snímá bakteriální RNA v lidských monocytech a hraje neredundantní roli při rozpoznávání Streptococcus pyogenes. J Immunol 195, 1092-1099, doi:10.4049/J Immunol.1403173 (2015). [PubMed: 26101323]22. Mattson G a kol. Praktický přístup k síťování. Mol Biol Rep. 17, 167-183 (1993). [PubMed: 8326953]23. Gabay C, Ben-Bassat H, Schlesinger M & Laskov R Somatické mutace a intraklonální variace v přeuspořádaných genech Vkappa buněčných linií B-non-Hodgkinova lymfomu. Eur J Haematol 63, 180–191, doi:10.1111/j.{164}}.1999.tb01766.x (1999). [PubMed: 10485273]24. Alonso MN a kol. Buňky T(H)1, T(H)2 a T(H)17 instruují monocyty, aby se diferencovaly na specializované podskupiny dendritických buněk. Krev 118, 3311–3320, doi:10.1182/krev-2011-03-341065 (2011). [PubMed: 21813450]25. Clarke SR a kol. Charakterizace ovalbumin-specifické TCR transgenní linie OT-I: MHC elementy pro pozitivní a negativní selekci. Immunol Cell Biol 78, 110-117, doi:10.1046/ j.1440-1711.2000.00889.x (2000). [PubMed: 10762410]26. Zehn D, Lee SY & Bevan MJ Kompletní, ale omezená odpověď T-buněk na antigen s velmi nízkou afinitou. Nature 458, 211–214, doi:10.1038/nature07657 (2009). [PubMed: 19182777]27. Kondratová M a kol. Víceúrovňová signální síťová mapa vrozené imunitní odpovědi u rakoviny odhaluje znaky buněčné heterogenity. Nat Commun 10, 4808, doi:10.1038/s41467-019-12270-x (2019). [PubMed: 31641119]
28. Bendall SC a kol. Jednobuněčná hmotnostní cytometrie rozdílných imunitních a lékových odpovědí napříč lidským hematopoetickým kontinuem. Science 332, 687–696, doi:10.1126/science.1198704 (2011).[PubMed: 21551058]29. Qiu P a kol. Extrahování buněčné hierarchie z vysokorozměrných cytometrických dat pomocí SPADE. Nat Biotechnol 29, 886-891, doi:10.1038/nbt.1991 (2011). [PubMed: 21964415]30.Kawai T & Akira S TLR signalizace. Cell Death Differ 13, 816-825, doi:10.1038/sj.cdd.4401850 (2006). [PubMed: 16410796]31.Sanchez-Mejorada G & Rosales C Signální transdukce imunoglobulinovými Fc receptory. J Leukoc Biol 63, 521-533 (1998). [PubMed: 9581795]32. Krishnaswamy S a kol. Systémová biologie. Analýza signalizace T lymfocytů v jednobuněčných datech založená na podmíněné hustotě. Science 346, 1250689, doi:10.1126/science.1250689 (2014). [PubMed: 25342659]33. Kiefer F a kol. Proteinová tyrosinkináza Syk je nezbytná pro signalizaci Fcgamma receptoru v makrofázích a neutrofilech. Mol Cell Biol 18, 4209-4220 (1998). [PubMed: 9632805]34. Braselmann S a kol. R406, perorálně dostupný inhibitor tyrosinkinázy sleziny, blokuje signalizaci Fc receptoru a snižuje zánět zprostředkovaný imunitním komplexem. J Pharmacol Exp Ther 319, 998-1008, doi:10.1124/jpet.106.109058 (2006). [PubMed: 16946104]35. Bruhns P a kol. Specifičnost a afinita lidských Fcgamma receptorů a jejich polymorfních variant pro lidské IgG podtřídy. Blood 113, 3716–3725, doi:10.1182/blood{70}} (2009). [PubMed: 19018092]36. Nimmerjahn F & Ravetch JV Divergentní aktivita podtřídy imunoglobulinu g prostřednictvím selektivní vazby na Fc receptor. Science 310, 1510–1512, doi:10.1126/science.1118948 (2005). [PubMed: 16322460]37. Jefferis R Rekombinantní protilátková terapeutika: dopad glykosylace na mechanismy účinku. Trends Pharmacol Sci 30, 356–362, doi:10.1016/j.tips.2009.04.007 (2009). [PubMed: 19552968]38. Tanji H, Ohio U, Shibata T, Miyake K & Shimizu T Strukturální reorganizace dimerů Toll-like receptoru 8 indukovaná agonistickými ligandy. Science 339, 1426–1429, doi:10.1126/ science.1229159 (2013). [PubMed: 23520111]39. Shultz LD a kol. Vývoj lidských lymfoidních a myeloidních buněk u NOD/LtSz-uvedených IL2R gama null myší s naroubovanými mobilizovanými lidskými hemopoetickými kmenovými buňkami. J Immunol 174, 6477-6489, doi:10.4049/J Immunol.174.10.6477 (2005). [PubMed: 15879151]40. Xia Z a kol. Vrozená imunitní odpověď na implantaci fibroblastických buněk lidské kostní dřeně u CB17 SCID/béžových myší. J Cell Biochem 98, 966-980, doi:10.1002/jcb.20730 (2006). [PubMed: 16795075]41. Tanner M a kol. Charakterizace nové buněčné linie vytvořené od pacientky s karcinomem prsu rezistentním na Herceptin. Mol Cancer Ther 3, 1585-1592 (2004). [PubMed: 15634652]42.Luque-Cabal M, Garcia-Teijido P, Fernandez-Perez Y, Sanchez-Lorenzo L & Palacio-Vazquez I Mechanismy za rezistencí vůči trastuzumabu u JEJÍ{140}}amplifikované rakoviny prsu a zesílené rakoviny prsu To. Clin Med Insights Oncol 10, 21–30, doi:10.4137/CMO.S34537 (2016). [PubMed: 27042153]43. Li JY a kol. Biparatopický konjugát protilátka-lék cílený na HER{150}indukuje regresi nádoru u primárních modelů refrakterních nebo nevhodných pro cílenou terapii HER. Cancer Cell 29, 117–129, doi:10.1016/j.ccell.2015.12.008 (2016). [PubMed: 26766593]44. Ning S, Pagano JS & Barber GN IRF7: aktivace, regulace, modifikace a funkce. Genes Immun 12, 399–414, doi:10.1038/gene.2011.21 (2011). [PubMed: 21490621]45. Cao Q a kol. Renální F4/80 plus CD11c plus mononukleární fagocyty vykazují fenotypové a funkční charakteristiky makrofágů ve zdraví a adriamycinové nefropatie. J Am Soc Nephrol 26, 349–363, doi:10.1681/ASN.2013121336 (2015). [PubMed: 25012165]46. Sheng J a kol. Diskrétní podskupina buněk derivovaných z monocytů mezi typickými konvenčními dendritickými buňkami typu 2 se může účinně křížově prezentovat. Cell Rep 21, 1203–1214, doi:10.1016/ j.celrep.2017.10.024 (2017). [PubMed: 29091760]
47. Knutson KL, Almand B, Dang Y & Disis ML Neu antigen-negativní varianty mohou být vytvořeny po terapii neu-specifickými protilátkami u neu transgenních myší. Cancer Res 64, 1146-1151 (2004). [PubMed: 14871850]48. Moynihan KD a kol. Eradikace velkých zavedených nádorů u myší kombinovanou imunoterapií, která zahrnuje vrozené a adaptivní imunitní reakce. Nat Med 22, 1402-1410, doi:10.1038/nm.4200 (2016). [PubMed: 27775706]49. Siebenlist U, Franzoso G & Brown K Struktura, regulace a funkce NF-kappa B. Annu Rev Cell Biol 10, 405–455, doi:10.1146/annurev.cb.10.1102194. . [PubMed: 7888182]
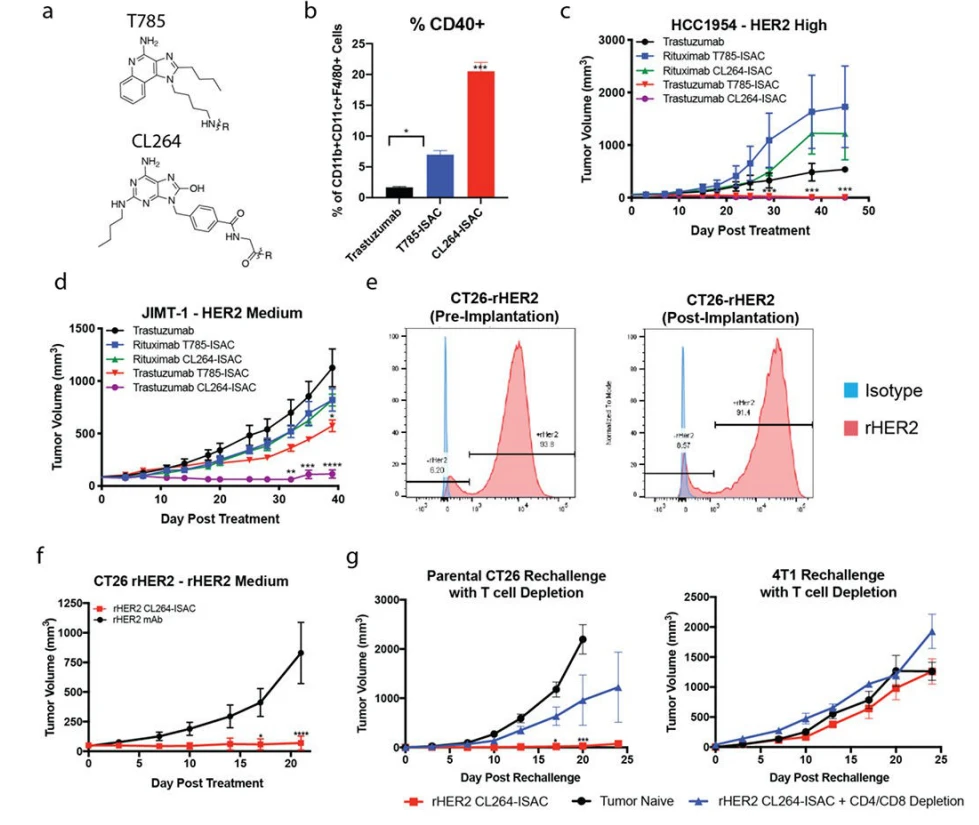
Obrázek 6: CL264-obsahující ISAC vyvolávají vymizení nádoru v médiu HER2 exprimujícím xenoimplantáty a odstranění nádoru zprostředkované T buňkami, imunologická paměť a šíření epitopu v modelu syngenního nádoru. (a) Chemické struktury adjuvans T785 a CL264 použitých pro generování ISAC. (b) NSG myši s implantovanou nádorovou buněčnou linií HCC1954 byly randomizovány, když objem nádoru dosáhl 50 – 75 mm3. Myši byly ošetřeny jednou intraperitoneální injekcí 5 mg/kg trastuzumabu, trastuzumabu T785-ISAC nebo trastuzumabu CL264-ISAC. Nádory byly sklizeny 20 hodin po podání, zpracovány na suspenzi jednotlivých buněk a analyzovány průtokovou cytometrií, aby se vyhodnotila aktivace nádorem infiltrujících myeloidních APC. (cd) Myším NSG nebo Rag2/IL2rg s dvojitým knockoutem byla implantována uvedená lidská nádorová buněčná linie a randomizovány, když objem nádoru dosáhl 50 – 75 mm3 (HCC1954) nebo 75 – 150 mm3 (JIMT-1). Myši byly léčeny intraperitoneální injekcí 5 mg/kg rituximabu, trastuzumabu, trastuzumabu T785-ISAC, trastuzumabu CL264-ISAC nebo příslušného izotypu-ISAC, každých 5 dní, celkem 6 ošetření. (e) Exprese rHER2 byla měřena na nádorových buňkách CT26-rHER2 v kultuře před implantací (průtokový diagram vlevo) a v nádorech devět dní po implantaci (průtokový diagram vpravo) průtokovou cytometrií s fluorescenčně konjugovanou protilátkou anti-rHER2 (červená) nebo izotypová kontrola (modrá). (f) Myším Balb/c byly implantovány nádorové buněčné linie CT26-rHER2 a byly randomizovány, když objem nádoru dosáhl 50mm3. Myši pak byly ošetřeny intraperitoneální injekcí 10 mg/kg myší anti-krysí protilátkyHER2 nebo myší anti-krysí HER2 CL264-ISAC každých 5 dní, celkem 6 ošetření. Uvedené údaje jsou z 1 experimentu s 8 myšmi na rameno a jsou reprezentativní pro 3 experimenty.
(g) Anti-rat HER2 CL264-ISAC treated mice that experienced complete tumor regression for >21 dní po jejich posledním ošetření byly stimulovány rodičovské CT26 (levý bok) a 4T1 buněčné linie (pravý bok), s nebo bez deplece CD4 a CD8 T buněk (n =3 každý). Nádorově naivní myši (n=6) stimulované rodičovskými buněčnými liniemi CT26 a 4T1 byly zahrnuty jako kontroly. (ai) Údaje jsou uvedeny z jednotlivých experimentů s 3-6 myšmi na rameno a jsou reprezentativní pro 1-4 experimenty s minimálně 3 myšmi na rameno v každém experimentu. Data jsou uvedena jako průměr s SEM a statistiky jsou uvedeny s *P<><0.01,><0.001, and=""><>
50. Vogelpoel LT a kol. Křížové rozhovory FcgammaRIIa s TLR, IL-1R a IFNgammaR selektivně modulují produkci cytokinů v lidských myeloidních buňkách. Imunobiologie 220, 193–199, doi:10.1016/j.imbio.2014.07.016 (2015). [PubMed: 25108563]51. Daley JM, Thomas AA, Connolly MD, Reichner JS & Albina JE Použití Ly6G-specifické monoklonální protilátky k depleci neutrofilů u myší. J Leukoc Biol 83, 64–70, doi:10.1189/jlb.0407247 (2008). [PubMed: 17884993]52. Broz ML a kol. Disekce nádorového myeloidního kompartmentu odhaluje vzácné aktivační antigen prezentující buňky kritické pro imunitu T buněk. Cancer Cell 26, 938, doi:10.1016/ j.ccell.2014.11.010 (2014).53. Spranger S, Dai D, Horton B & Gajewski TF dendritické buňky Batf3 sídlící v nádoru jsou vyžadovány pro obchodování s efektorovými T buňkami a pro adoptivní terapii T buňkami. Cancer Cell 31, 711–723 e714, doi:10.1016/j.ccell.2017.04.003 (2017). [PubMed: 28486109]54. Zunder ER a kol. Čárové kódování buněk na bázi palladia se schématem dubletové filtrace a jednobuněčným dekonvolučním algoritmem. Nat Protoc 10, 316–333, doi:10.1038/nprot.2015.020 (2015). [PubMed: 25612231]