Dietní polyfenoly proti stárnutí a potenciální mechanismy, část 2
Aug 01, 2023
3. Potenciální mechanismy proti stárnutí
3.1. Antioxidační účinky polyfenolů
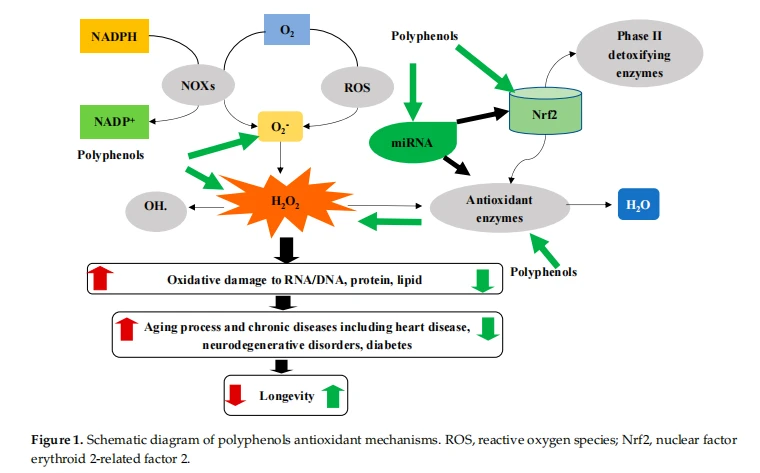
Podle teorie volných radikálů je stárnutí důsledkem chronické nerovnováhy (nadbytečné množství ROS) mezi ROS a antioxidanty, nazývané také oxidační stres, která vede k buněčnému stárnutí, funkčním změnám a patologickým stavům [97,98], jak bylo diskutováno výše. Bylo dobře známo, že mnoho polyfenolických sloučenin má antioxidační vlastnosti. Jako exogenní antioxidanty mohou polyfenoly bojovat proti ROS nejméně čtyřmi mechanismy, jak je uvedeno níže.
Glykosid cistanche může také zvýšit aktivitu SOD v srdeční a jaterní tkáni a významně snížit obsah lipofuscinu a MDA v každé tkáni, účinně zachycovat různé reaktivní kyslíkové radikály (OH-, H₂O₂ atd.) a chránit před způsobeným poškozením DNA. OH-radikály. Cystanche fenylethanoidové glykosidy mají silnou vychytávací schopnost volných radikálů, vyšší redukční schopnost než vitamín C, zlepšují aktivitu SOD v suspenzi spermatu, snižují obsah MDA a mají určitý ochranný účinek na funkci membrány spermií. Polysacharidy Cistanche mohou zvýšit aktivitu SOD a GSH-Px v erytrocytech a plicních tkáních experimentálně senescentních myší způsobených D-galaktózou, stejně jako snížit obsah MDA a kolagenu v plicích a plazmě a zvýšit obsah elastinu. dobrý čisticí účinek na DPPH, prodlužuje dobu hypoxie u senescentních myší, zlepšuje aktivitu SOD v séru a oddaluje fyziologickou degeneraci plic u experimentálně senescentních myší Experimenty prokázaly, že Cistanche má dobrou antioxidační schopnost s buněčnou morfologickou degenerací a má potenciál být lékem k prevenci a léčbě nemocí stárnutí kůže. Zároveň má echinakosid v Cistanche významnou schopnost vychytávat volné radikály DPPH a dokáže vychytávat reaktivní formy kyslíku, bránit volnými radikály indukované degradaci kolagenu a má také dobrý opravný účinek na poškození aniontů volnými radikály thyminu.

Klikněte na maca ginseng antioxidant cistanche
【Další informace:george.deng@wecistanche.com / WhatApp:{0}}】
Za prvé, polyfenoly mohou přímo vychytávat ROS kvůli přítomnosti fenolických hydroxylových skupin na jejich molekulách. Schopnost polyfenolů vychytávat ROS závisí na počtu a poloze hydroxylové skupiny a vzorců substituentů a také na glykosylaci fytochemických molekul [99–101]. Například kaemferol-3,7,4'-trimethylether, kaemferol-3,4'-dimethylether, kaemferol{{10}}neohesperidosid a kaempferol, které mají 1 (v pozice 5-), 2, 3 a 4 hydroxylové substituce, v tomto pořadí, jsou 0, 1,0, 1,6 a 2,7 násobek antioxidační aktivity ekvivalentní Troloxu [102]. Tyto údaje naznačují, že fenolické sloučeniny s více hydroxylovými skupinami mohou mít silnější antioxidační kapacitu. Kromě toho jsou pro antioxidant důležité substituční vzorce v kruhu B a A, stejně jako 2, 3-dvojná vazba (nenasycenost) a 4-oxoskupina v kruhu C kapacita sloučenin [103,104]. Polyfenoly s 30,40 -o-dihydroxylovou skupinou v kruhu B, 2,3-dvojnou vazbou kombinovanou s 4-ketoskupinou v kruhu C a {{ 40}}hydroxylová skupina měla nejvyšší antioxidační aktivitu [103,105]. Flavanoly s galloylovou skupinou měly vyšší antioxidační aktivitu než ty, které ji neměly, a 30,40,{46}}trihydroxyskupina v B-kruhu dále zlepšila jejich účinnost [103,105]. Když jsou pozice C-3'' a 4' v kruhu B flavonoidů nahrazeny hydroxylovými skupinami, antioxidační aktivita se výrazně zlepšila, avšak počet a substituční pozice methoxylu a glykosylu se zdály mít na antioxidant jen malý vliv. činnost [106]. Ve studii na zvířatech dostávaly myši C57BL/6J po dobu 3-týdne, 6- dietu s extraktem z hroznové kůže (PGE) bohatou na polyfenoly v dávce 200 mg/kg tělesné hmotnosti (BW)/d. měsíc a životnost [107]. Výsledky této studie ukázaly, že celoživotní krmení PGE vedlo k přechodné, ale významné změně v křivce přežití, i když neovlivnila celkovou míru přežití zvířat [107]. Tyto účinky PGE jsou spojeny se zesílenými signálními cestami zapojenými do energetické homeostázy, antioxidační obrany a mitochondriální biogeneze, včetně stimulace SIRT [107].
Za druhé, polyfenoly mohou vykazovat antioxidační aktivitu regulací produkce a aktivity endogenních antioxidantů a oxidázových enzymů. Jako primární mechanismus neutralizující oxidanty, dva intracelulární enzymy, oxid dismutáza 1 (SOD1) v cytosolu a SOD2 v matrici mitochondrií, rychle přeměňují superoxid na peroxid vodíku. Peroxid vodíku je dále deaktivován katalázou (CAT) nebo glutathionperoxidázami (GSH-Px) na vodu a kyslík. Četné studie uvádějí, že kurkumin (8 mg/kg) [108], EGCG (100 mg/kg) [109] nebo kvercetin (0,027 procenta ve stravě) [110] zvrátily oxidační stres hladiny GSH a SOD u myší nebo potkanů. Resveratrol chrání před oxidačním poškozením zvýšením exprese SOD1, CAT a hemoxygenázy-1 (HO- 1) a také aktivitou SOD [111,112]. Podobně orální podávání epimedium flavonoidů zlepšilo aktivitu CAT a GSH-Px o 13,58 procenta a 5,18 procenta u D. melanogaster [113]. Genistein v závislosti na dávce zvyšoval GSH-Px v buňkách rakoviny prsu [114]. Flavonoid chrysin a jeho deriváty vykazují vysokou selektivitu efluxu GSH (transport intracelulárního GSH ven z buňky), který může být použit k zabíjení chemorezistentních rakovinných buněk [115].
Za třetí, polyfenoly mohou zvýšit buněčnou antioxidační aktivitu regulací drah zprostředkovaných Nrf{0}}. Nrf2 je transkripční faktor regulující expresi několika detoxikačních enzymů, včetně SOD, GPx1, GSH, NADP(H) chinonoxidoreduktázy 1 (NQO1), GST a HO-1, vazbou na prvky reagující na antioxidanty ( ARE) v promotorových oblastech genů těchto enzymů [116]. Četné polyfenoly, včetně EGCG [117], luteolinu [118], kurkuminu [119] a epikatechinu [120] mohou zvýšit aktivitu vázání DNA Nrf2 nebo expresi proteinů a následně zvýšit expresi NQO1, HO-1 a SOD. Resveratrol (25–50 µM) zvýšil 2,{19}}násobek hladiny proteinu NQO1 a 3- až 5-násobek enzymatické aktivity NQO1 v lidských buňkách k562 [121]. Možný molekulární mechanismus spočívá v tom, že resveratrol narušuje komplex Nrf2-Keapl v cytosolu, který stimuluje translokaci Nrf2 do jádra, kde lokalizuje 5'-promotorovou oblast NQO1 obsahující ARE, což vede k jeho transkripční aktivaci [121].

Konečně se objevují důkazy ukazující, že polyfenoly mohou působit proti ROS prostřednictvím regulace mikroRNA (miRNA, více podrobností v další části). MikroRNA (miRNA) jsou endogenní, nekódující, jednovláknové a krátké (19-22 z 22 nukleotidů) RNA. miRNA se sekvenčně specificky vážou na 30 UTR mRNA, aby potlačily nebo vyvolaly translaci k regulaci různých biologických drah a procesů, včetně buněčné smrti a proliferace a lidských nemocí, jako je rakovina a stárnutí. Doposud bylo na letecké základně katalogizováno více než 38 589 miRNA (http://www.mirbase.org, přístup k 1. prosinci 2020) a předpokládá se, že téměř 60 procent všech lidských transkriptů bude regulováno miRNA [122]. Nedávno bylo zjištěno, že některé polyfenoly, včetně kvercetinu, hesperidinu, naringeninu, antokyaninu, katechinu a kurkuminu zvrátily změny miRNA vyvolané mutanty ApoE, včetně mmu-miR-291b-5p, mmu-miR -296-5p, mmu-miR-30c-1, mmu-miR-467b a mmu-miR-374, které společně regulují 34 běžných cest, včetně cesta metabolismu GSH [123]. Jiná studie zjistila, že kurkumin snižuje expresi miR-17-5p, miR-20A a miR{28}}a, u kterých bylo prokázáno, že moduluje produkci ROS [124]. Dietní suplementace kvercetinem (2 mg/g dieta, 6 týdnů) zvýšila hladiny exprese jaterních miR-122 a miR-125b u obézních myší indukovaných dietou s vysokým obsahem tuku [125], které byly spojeny s redox faktor 1, modulátor oxidačního stresu [126]. Proto, jak je znázorněno na obrázku 1, mohou polyfenoly chránit buňky před oxidačním stresem mnoha mechanismy. Bylo skutečně prokázáno, že kurkumin může přímo vychytávat ROS [127], zvyšovat expresi endogenních antioxidantů [108], aktivovat dráhu Nrf2 [119] a modulovat miRNA [128].
3.2. Polyfenoly a buněčné stárnutí
3.2.1. Buněčné stárnutí a stárnutí
Stárnutí, ke kterému dochází u každého živého tvora, je komplikovaný degenerativní proces. Jeden z nejstarších písemných záznamů lidských snah o léky proti stárnutí lze nalézt v nejstarší čínské lékárenské monografii, Shennong Materia Medica, v roce 220 před naším letopočtem. Vědci se skutečně neustále snažili rozluštit hnací síly stojící za stárnutím a přibližně 300 teorií stárnutí. Byly navrženy, nicméně neexistuje žádný dominantní, který by byl obecně akceptován vědeckou komunitou, který by přesvědčivě vysvětlil proces stárnutí [129]. Mezi ranými teoriemi stárnutí definuje teorie aktivity stárnutí jako udržování aktivit a postojů mladého a středního věku tak dlouho, jak je to možné [130]. Evoluční teorie naznačuje, že stárnutí není řízeno poškozením, ale způsobuje poškození organel a funkční pokles [131]. Stárnutí je vývojový program, který se nikdy nezastaví. Teorie volných radikálů předpokládá, že stárnutí je výsledkem kumulativního poškození DNA, proteinů, lipidů a dalších makromolekul způsobených neneutralizovanými volnými radikály [132]. V těle existuje dynamická rovnováha mezi oxidanty (ROS a reaktivní formy dusíku, RNS) a antioxidanty. ROS, primárně superoxidové anionty (O2–˙), jsou primárně produkovány mitochondriemi při výrobě energie (asi 2 procenta celkové spotřeby kyslíku) [133]. Superoxid je rychle přeměněn na peroxid vodíku dvěma intracelulárními enzymy, SOD1 v cytosolu a SOD2 v matrix mitochondrií. Peroxid vodíku se dále přeměňuje na vodu a kyslík katalázou nebo GPx [134]. Endogenní antioxidant GSH a exogenní antioxidanty, včetně vitamínů C a E, dietní polyfenoly jsou také důležitými lapači ROS. Chronická nerovnováha (nadměrné množství ROS) mezi ROS a antioxidanty vede k buněčnému stárnutí, funkčním změnám a patologickým stavům [97,98].
Senescence (z latinského slova „senex“, což znamená stárnout), neboli buněčné stárnutí, je nevratné zastavení buněčného cyklu ve fázi G1, vyvolané nadměrným intracelulárním nebo extracelulárním stresem nebo poškozením [135,136]. Senescence je nezbytná pro omezení replikace starých a poškozených buněk a dalších škodlivých změn, čímž se inaktivuje potenciální maligní transformace [135,137]. Na základě kinetiky procesů stárnutí buněk lze buněčnou senescenci primárně kategorizovat jako akutní (přechodnou) nebo chronickou (perzistentní) stárnutí. Zatímco akutní stárnutí je součástí normálních biologických procesů nezbytných pro udržení fyziologické homeostázy a má příznivý vliv na tkáně během embryonálního vývoje, hojení ran nebo opravy tkání, chronické stárnutí má škodlivé účinky na buňky a tkáně, zejména u starších lidí, protože tyto buňky a tkáně nejsou schopny čistit poškozené buňky autofagickým procesem, což vede ke stárnutí a onemocněním souvisejícím se stárnutím, jako je rakovina [138]. Stále více důkazů ukazuje, že stárnoucí buňky se s věkem hromadí v tkáních lidí, primátů a hlodavců [139] a hromadění senescentních buněk bylo také spojeno s nemocemi souvisejícími se stárnutím, jako je diabetes [140], ateroskleróza [141] a obezita. [142]. Je zajímavé, že se ukázalo, že oxidační stres je jedním z hlavních induktorů stárnutí buněk [143,144]. Proto je lákavé spekulovat o tom, že polyfenoly jako exogenní antioxidanty mohou mít potenciál bránit buněčnému stárnutí a tím i procesu stárnutí.
3.2.2. Účinky polyfenolů na stárnutí buněk
Léčba polyfenoly má příznivé účinky na určité typy onemocnění díky jejich působení na prevenci buněčného stárnutí. Kombinovaná léčba senolytickým lékem Dasatinibem a quercetinem, dobře prostudovaným flavonolem přítomným v mnoha rostlinách, snížila akumulaci senescentních buněk v tukové tkáni potlačením aktivity galaktozidázy spojené se stárnutím [145]. V souladu s tímto in vitro zjištěním zmírnila kombinace dasatinibu a kvercetinu idiopatickou plicní fibrózu související se stárnutím [146]. U senescenčních myší modelu SAMP8 skupina konzumující stravu s 532 mg/kg fenolů z olivového oleje po dobu 4,5 měsíce vykazovala významně nižší úrovně oxidačního poškození v srdci a indukovala expresi genů souvisejících s dlouhověkostí ve srovnání se skupinou konzumující stravu s pouze 44 mg/kg polyfenolů olivového oleje [39]. Bylo prokázáno, že chronická léčba presenescentních lidských plic a neonatálních lidských dermálních fibroblastů 1 µM hydroxytyrosolem nebo 10 µM oleuropein aglykonu účinně snižovala počet senescentních buněk, jak bylo prokázáno měřením počtu buněk pozitivních na galaktozidázu a exprese proteinu p16 [147]. . V souladu s tímto zjištěním léčba oleuropeinem oddálila výskyt morfologie stárnutí a prodloužila životnost buněk lidských embryonálních fibroblastů IMR90 a WI38 přibližně o 15 procent [148]. Bylo popsáno, že kyselina gallová potlačuje aktivitu galaktozidázy a expresi markerů oxidačního stresu v embryonálních fibroblastech potkanů [149]. Tyto výsledky naznačují, že polyfenoly mohou být schopny modulovat buněčné stárnutí a tím ovlivňovat proces stárnutí.
3.3. Polyfenoly mohou působit proti stárnutí tím, že zaměřují mikroRNA
MikroRNA (miRNA) jsou malé nekódující molekuly RNA vylučované z buněk do periferních tělesných tekutin, včetně krve, slin a moči, buď ve spojení s proteiny vázajícími RNA, jako je Argonaute 2, nebo vázané na lipoproteiny s vysokou hustotou a některé ' cirkulační miRNA byly navrženy jako neinvazivní biomarkery stárnutí [150]. Bylo ukázáno, že četné miRNA přímo ovlivňují délku života, jak bylo prokázáno nadměrnou expresí nebo knockdown miRNA u C. elegans, Drosophila a myší. Tyto miRNA, jako je miR-125, miR-17, let-7, AGO1 a AGO2, regulovaly dobře známé signální dráhy stárnutí, včetně cíle rapamycinu (TOR), inzulínu/ signalizace růstového faktoru podobného inzulínu (IGF-1), sirtuinové deacetylázy, mitochondriální/ROS signalizace a reakce na poškození DNA [151]. Kromě toho se pomocí buněčných nebo myších modelů ukázalo, že několik miRNA, včetně miR-1000, miR-455-3p, miRNA-17/20a a miR{20}}a, prodloužit dlouhověkost zlepšením stárnutím způsobených dysfunkcí orgánů, jako je mozek [152], svaly [153], kosti [154] a srdce [155]. Většina studií zkoumajících a identifikujících miRNA modulující délku života však používala C. elegans a Drosophila a miR-17 je jedinou miRNA, o které bylo hlášeno, že přímo prodlužuje životnost u myší [156].
Zatímco studie zkoumající účinky polyfenolů na expresi miRNA jsou omezené, což je zajímavá oblast k prozkoumání v budoucnu, objevující se důkazy ukazují, že dietní příjem některých polyfenolů moduluje expresi miRNA, které se podílejí na dlouhověkosti. Jedna studie zjistila, že nízká dávka suplementace kvercetinu, hesperidinu, naringeninu, antokyaninu, katechinu nebo kurkuminu (0,006 procenta, w/w, dva týdny) ve stravě moduluje expresi širokého spektra miRNA a napravily změny miRNA vyvolané ApoEmutancí v játrech myší s deficitem ApoE [123]. Tyto polyfenolem modulované miRNA, včetně mmu-miR-291b-5p, mmu-miR-296-5p, mmumiR-30c-1, mmu-miR{ {14}}b a mmu-miR-374 regulují 30 běžných drah, včetně signální dráhy MAPK, vápníkové signální dráhy, inzulínové signální dráhy a také oxidativní fosforylace, z nichž některé se podílejí na dlouhověkosti myši [123]. Navíc miR-17, savčí miRNA dlouhověkosti, která přímo cílí na substrát inzulínového receptoru (Irs1) a adenylátcyklázu 5 (Adcy5), lze regulovat polyfenoly. Například katechin, proanthokyany, naringin [123] a genistein [157] upregulovaly expresi miR- 17 u myší. Podobně byla exprese let-7, běžné miRNA pro dlouhověkost konzervovaná u C. elegans, Drosophila, myší a lidí, zesílena katechinem, proanthokyany a naringinem u myší ApoE [123]. Proto mohou některé polyfenoly působit prostřednictvím miRNA k regulaci drah souvisejících se stárnutím, potlačení zánětu a produkce ROS a zlepšení metabolismu lipidů, což vede ke zdravějšímu a prodlouženému životu [128]. Vliv polyfenolů na expresi miRNA nemusí být specifický. Bylo například ukázáno, že epikatechin moduluje více než 73 miRNA zapojených do různých buněčných funkcí v lidských endoteliálních buňkách [158]. U diabetických pacientů příjem hroznového extraktu (8,2 mg polyfenolů) v potravě zvýšil miR-21, miR-181b, miR-663 a miR{{38 }}c spáchaný s nižšími hladinami zánětlivých cytokinů, jako je IL-6, chemokinový ligand 3, IL-1 a TNF- [159]. Není však jasné, zda některá z těchto miRNA přímo zprostředkovává protizánětlivé působení extraktu z hroznů.
3.4. Polyfenoly a NO Biologická dostupnost
Endoteliální dysfunkce, vyplývající ze zánětu, obezity, diabetu, hypertenze, hyperlipidémie a dalších souvisejících metabolických syndromů, je hlavní patogenní příčinou kardiovaskulárních onemocnění [160]. Endoteliální dysfunkce zhoršuje produkci a biologickou dostupnost NO odvozeného od endoteliálního oxidu dusnatého (NO) syntázy (eNOS), který je klíčovým regulátorem vaskulárního tonu, krevního tlaku a vaskulárního zánětu [161]. Endoteliální produkce a biologická dostupnost NO také progresivně klesají se stárnutím [162], což je alespoň částečně připisováno zvýšené produkci ROS [163,164]. Za normálních podmínek se eNOS spojuje za vzniku NO z oxidace L-argininu. Nadměrný oxidační stres však způsobuje oxidaci tetrahydrobiopterinu, kritického kofaktoru pro eNOS, což vede k odpojení eNOS od produkce NO, ale k odklonu k redukci kyslíku za vzniku superoxidu [165,166], čímž se snižuje biologická dostupnost NO, což následně urychluje vývoj. cévních onemocnění [163,164]. Podpora exprese/aktivity eNOS a/nebo biologické dostupnosti NO by tedy byly účinnými metodami ke zmírnění endoteliální dysfunkce související se stárnutím a následně k oddálení rozvoje kardiovaskulárního onemocnění. Mnoho studií prokázalo, že polyfenolické sloučeniny mají ochranné účinky proti kardiometabolickému syndromu [167], mezi nimiž jsou exprese/aktivita eNOS a biologická dostupnost NO nejurčovanějšími mechanismy [161,168–170]. Morin, flavonoid, může účinně chránit lidské ventrikulární myocyty, endoteliální buňky safény a erytrocyty před poškozením vyvolaným oxyradikály [171]. Léčba morinem dále podporovala produkci NO zprostředkovanou eNOS a vazodilataci aorty u diabetických myší vyvolaných STZ aktivací signální dráhy Akt [172,173]. Jak již bylo zmíněno, resveratrol přitahuje rostoucí zájem výzkumu [174,175]. Léčba resveratrolem zvýšila transkripční aktivitu eNOS a produkci NO odvozenou od eNOS v endoteliálních buňkách lidské pupečníkové žíly [176]. Kyselina protokatechuová (PCA) je hlavním metabolitem polyfenolů zeleného čaje se silnou antioxidační vlastností [177]. Podávání PCA (200 mg/kg/den) významně zlepšilo vazorelaxaci indukovanou inzulínem a IGF-1-u stárnoucích spontánně hypertenzních potkanů prostřednictvím aktivace dráhy PI3K/NOS/NO [178]. Bylo prokázáno, že kyanidin-3-glukosid (Cy3G), typický anthokyanin nacházející se v tmavě zbarvených rostlinách [179], podporuje expresi proteinu eNOS a následně zvyšuje produkci NO v endoteliálních buňkách bovinních arterií [170]. Je zajímavé, že bylo zjištěno, že více polyfenolů, včetně katechinu, oleuropeinu, kvercetinu a EGCG, redukuje dusitany na NO v žaludku, což naznačuje, že polyfenoly mohou být redukčním činidlem dusitanů díky hydroxylovým skupinám na fenolovém kruhu [180]. Kromě toho 12týdenní suplementace kurkuminem zlepšila endoteliální funkci rezistentní arterie zvýšením biologické dostupnosti vaskulárního NO a snížením oxidačního stresu [181]. U diabetických potkanů léčba extraktem ze zeleného čaje, který se primárně skládá z EGCG, zlepšila diabetem indukovanou redukci tetrahydrobiopterinu, odpojení eNOS, a tím zvýšila biologickou dostupnost NO a snížila oxidační stres [165].
3.5. Polyfenoly mohou podporovat mitochondriální funkci
In addition to the direct action on eNOS expression/activity, polyphenols were reported to activate Sirt1 [182,183], which is an upstream regulator of eNOS [184,185], therefore Sirt1-mediated mitochondrial biogenesis might underlie the anti-aging actions of polyphenols against oxidative stress. Indeed, resveratrol treatment increased mitochondrial biogenesis in wild-type mice but not eNOS knockout mice [179]. Activation of peroxisome proliferator-activated receptor-γ coactivator-1α (PGC-1α), the key regulator in mitochondrial biogenesis, has been reported to protect against aging-related diseases [16,185]. In vivo, resveratrol promoted liver PGC-1α activity and significantly extended the lifespan of mice fed a high-calorie diet [186]. In vitro, resveratrol treatment increased adenosine monophosphate (AMP)-activated protein kinase (AMPK) phosphorylation in CHO cells [186], suggesting the involvement of AMPK/Sirt1 signaling pathway in the action of resveratrol extending lifespan in mammals. Polyphenols treatment (resveratrol, apigenin, and S17834, a synthetic polyphenol) have been reported to phosphorylate AMPK in HepG2 cells, thereby subsequently protecting hepatocytes from high glucose-induced lipid accumulation [187]. Dysfunctional mitochondria can cause imbalanced ROS accumulation based on the free radical theory, which may exacerbate the progress of aging. Thus, targeting mitochondrial function can be an effective approach to slow aging. Interestingly, resveratrol treatment can improve the quality of oocytes from aged cows (>10 let) upregulací mitochondriální biogeneze [188], což naznačuje potenciální mechanismus zpomalení stárnutí matek. Hydroxytyrosol, fenolická sloučenina nacházející se v olivovém oleji, účinně zvýšil počet mitochondrií v buňkách 7PA2, což je dobře zavedený buněčný model pro studium AD [189], což naznačuje, že polyfenoly mohou pomoci zmírnit energetický deficit pacientů s AD.
4. Závěry a perspektivy
Zájem o používání doplňkové a alternativní medicíny, zejména přírodních produktů bohatých na polyfenoly, se za poslední dvě desetiletí výrazně zvýšil s cílem zlepšit zdraví a pohodu lidí. U některých polyfenolů bylo dokonce prokázáno, že prodlužují životnost v různých modelových organismech. Je dobře známo, že polyfenoly v suprafyziologických nebo vyšších dávkách přímo vychytávají ROS darováním elektronu nebo atomu vodíku. Mohou však vykazovat antioxidační aktivitu in vivo prostřednictvím jiných mechanismů, jak je diskutováno v tomto článku, vzhledem k jejich relativně nízké biologické dostupnosti. Stárnutí a poruchy související se stárnutím jsou složité a jistě ovlivněné stravovacími návyky a genetickým pozadím. Tento přehled je poměrně úzký, vezmeme-li v úvahu obrovské úsilí výzkumníků zkoumajících molekulární mechanismy, které jsou základem prospěšných účinků polyfenolů, upozornili jsme však na objevující se důkazy, které mohou poskytnout nové mechanismy, které jsou základem antioxidačních a anti-agingových účinků polyfenolů. Zatímco použití polyfenolů v prevenci poruch souvisejících se stárnutím se ukázalo jako slibné v různých studiích na modelových organismech, bezpečnost a potenciální zdravotní přínosy dlouhodobého používání jednotlivých čistých sloučenin u lidí jsou stále nejisté. Je třeba poznamenat, že jedna potravina může obsahovat alespoň několik nebo dokonce stovky polyfenolů [190] a některé diety, jako je středomořská strava, obsahují více potravin bohatých na polyfenoly, které dohromady obsahují 290 různých polyfenolů [191,192]. Proto by mohlo být zavádějící připisovat výhody konzumace konkrétních potravin obsahujících polyfenoly jednotlivým polyfenolům, které jsou často podávány v mnohem vyšších dávkách, zejména ve studiích na zvířatech a in vitro, než jaké mohou být získány konzumací příslušných potravin nebo doplňků lidmi [193]. V budoucnu může být relevantnější a zajímavější zkoumat příznivé účinky kombinace více polyfenolů nebo potravin bohatých na polyfenoly, protože kombinace polyfenolů může vykazovat synergické nebo aditivní příznivé účinky [192,194].
Financování: Tento výzkum neobdržel žádné externí financování.
Střet zájmů:Autoři neprohlašují žádný střet zájmů.
Reference
1. Willett, WC Dieta a zdraví: Co bychom měli jíst? Science 1994, 264, 532–537. [CrossRef]
2. Cherniack, EP Potenciální vliv rostlinných polyfenolů na proces stárnutí. Forsch Komplementmed 2010, 17, 181–187. [CrossRef]
3. Barha, CK; Hsu, CL; Ten Brinke, L.; Liu-Ambrose, T. Biologické pohlaví: Potenciální moderátor účinnosti fyzické aktivity na zdraví mozku. Přední. Stárnutí Neurosci. 2019, 11, 329. [CrossRef]
4. Gladyshev, VN Teorie volných radikálů je mrtvá. Ať žije teorie poškození! Antioxid. Redoxní znamení. 2014, 20, 727–731. [CrossRef] [PubMed]
5. Frisard, M.; Ravussin, E. Energetický metabolismus a oxidační stres: Vliv na metabolický syndrom a proces stárnutí. Endokrinní 2006, 29, 27–32. [CrossRef]
6. Bertram, C.; Hass, R. Buněčné reakce na poškození a stárnutí DNA vyvolané reaktivními druhy kyslíku. Biol. Chem. 2008, 389, 211–220. [CrossRef] [PubMed]
7. McHugh, D.; Gil, J. Senescence a stárnutí: Příčiny, důsledky a terapeutické cesty. J. Cell Biol. 2018, 217, 65–77. [CrossRef] [PubMed]
8. Rolt, A.; Cox, LS Strukturální základ anti-aging účinků polyfenolických látek: Zmírnění oxidačního stresu. BMC Chem. 2020, 14, 50. [CrossRef] [PubMed]
9. Liguori, I.; Russo, G.; Curcio, F.; Bulli, G.; Aran, L.; Della-Morte, D.; Gargiulo, G.; Testa, G.; Cacciatore, F.; Bonaduce, D.; a kol. Oxidační stres, stárnutí a nemoci. Clin. Interv. Stárnutí 2018, 13, 757–772. [CrossRef]
10. Majidinia, M.; Karimian, A.; Alemi, F.; Yousefi, B.; Safa, A. Cílení miRNA polyfenoly: Nová terapeutická strategie pro stárnutí. Biochem. Pharmacol. 2020, 173, 113688. [CrossRef] [PubMed]
11. Scalbert, A.; Johnson, IT; Saltmarsh, M. Polyfenoly: Antioxidanty a další. Dopoledne. J. Clin. Nutr. 2005, 81, 215S–217S. [CrossRef]
12. Sandoval, V.; Sanz-Lamora, H.; Arias, G.; Marrero, PF; Haro, D.; Relat, J. Metabolický dopad spotřeby flavonoidů při obezitě: od centrální k periferní. Živiny 2020, 12, 2393. [CrossRef]
13. Ebrahimpour, S.; Zakeri, M.; Esmaeili, A. Crosstalk mezi obezitou, cukrovkou a Alzheimerovou chorobou: Představení kvercetinu jako účinného trojitého bylinného léku. Ageing Res. Rev. 2020, 62, 101095. [CrossRef]
14. Singh, A.; Yau, YF; Leung, KS; El-Nezami, H.; Lee, JC Interakce polyfenolů jako antioxidantů a protizánětlivých sloučenin v ose mozek-játra-střevo. Antioxidanty 2020, 9, 669. [CrossRef] [PubMed]
15. Si, H.; Liu, D. Dietní fytochemikálie proti stárnutí a mechanismy spojené s prodlouženým přežitím. J. Nutr. Biochem. 2014, 25, 581–591. [CrossRef]
16. Baur, JA; Pearson, KJ; Cena, NL; Jamieson, HA; Lerin, C.; Kalra, A.; Prabhu, VV; Allard, JS; Lopez-Lluch, G.; Lewis, K.; a kol. Resveratrol zlepšuje zdraví a přežití myší na vysoce kalorické dietě. Příroda 2006, 444, 337–342. [CrossRef]
17. Pearson, KJ; Baur, JA; Lewis, KN; Peshkin, L.; Cena, NL; Labinský, N.; Swindell, WR; Kamara, D.; Minor, RK; Perez, E.; a kol. Resveratrol oddaluje zhoršení související s věkem a napodobuje transkripční aspekty dietního omezení, aniž by prodlužoval délku života. Cell Metab. 2008, 8, 157–168. [CrossRef] [PubMed]
18. Miller, RA; Harrison, DE; Astle, CM; Baur, JA; Boyd, AR; de Cabo, R.; Fernandez, E.; Flurkey, K.; Javors, MA; Nelson, JF; a kol. Rapamycin, ale ne resveratrol nebo simvastatin, prodlužuje životnost geneticky heterogenních myší. J. Gerontol. Ser. Biol. Sci. Med Sci. 2011, 66, 191–201. [CrossRef] [PubMed]
19. Strong, R.; Miller, RA; Astle, CM; Baur, JA; de Cabo, R.; Fernandez, E.; Guo, W.; Javors, M.; Kirkland, JL; Nelson, JF; a kol. Hodnocení resveratrolu, extraktu ze zeleného čaje, kurkuminu, kyseliny oxalooctové a triglyceridového oleje se středním řetězcem na délku života geneticky heterogenních myší. J. Gerontol. Ser. 2012, 68, 6–16. [CrossRef]
20. Reutzel, M.; Grewal, R.; Silaidos, C.; Zotzel, J.; Marx, S.; Tretzel, J.; Eckert, GP Účinky dlouhodobé léčby směsí vysoce purifikovaných olivových sekoiridoidů na kognici a hladiny ATP v mozku u starých NMRI myší. Oxidative Med. Buňka. Longev. 2018, 2018. [CrossRef] [PubMed]
21. Si, H.; Fu, Z.; Babu, PV; Zhen, W.; Leroith, T.; Meaney, MP; Voelker, KA; Jia, Z.; Grange, RW; Liu, D. Dietní epikatechin podporuje přežití obézních diabetických myší a Drosophila melanogaster. J. Nutr. 2011, 141, 1095–1100. [CrossRef]
22. Si, H.; Wang, X.; Zhang, L.; Parnell, LD; Admed, B.; LeRoith, T.; Ansah, TA; Zhang, L.; Li, J.; Ordovás, JM; a kol. Dietní epikatechin zlepšuje přežití a oddaluje degeneraci kosterního svalstva u starých myší. FASEB J. 2019, 33, 965–977. [CrossRef]
23. Donovan, JL; Manach, C.; Rios, L.; Morand, C.; Scalbert, A.; Rémésy, C. Prokyanidiny nejsou biologicky dostupné u krys krmených jedním krmivem obsahujícím extrakt z hroznových jader nebo prokyanidinový dimer B3. Br. J. Nutr. 2002, 87, 299-306. [CrossRef] [PubMed]
24. Koga, T.; Moro, K.; Nakamori, K.; Yamakoshi, J.; Hosoyama, H.; Kataoka, S.; Ariga, T. Zvýšení antioxidačního potenciálu krysí plazmy perorálním podáním extraktu bohatého na proanthokyanidin z hroznových semen. J. Agric. Food Chem. 1999, 47, 1892–1897. [CrossRef]
25. Rios, LY; Bennett, RN; Lazarus, SA; Remesy, C.; Scalbert, A.; Williamson, G. Kakaové prokyanidiny jsou stabilní během průchodu žaludkem u lidí. Dopoledne. J. Clin. Nutr. 2002, 76, 1106–1110. [CrossRef] [PubMed]
26. Bhagwat, S.; Haytowitz, DB; Holden, JM USDA databáze pro obsah flavonoidů ve vybraných potravinách, verze 3.1; Agricultural Research Service, Ministerstvo zemědělství USA, Ed.; Agricultural Research Service, Ministerstvo zemědělství USA: Beltsville, MD, USA, 2014.
【Další informace:george.deng@wecistanche.com / WhatApp:{0}}】