NAFLD související s věkem: Použití probiotik jako podpůrné terapeutické intervence, část 1
Jun 21, 2023
Abstraktní: Stárnutí člověka, přirozený proces charakterizovaný strukturálními a fyziologickými změnami, vede ke změnám homeostatických mechanismů, poklesu biologických funkcí a následně se organismus stává zranitelným vůči vnějšímu stresu nebo poškození. Starší populace je náchylná k rozvoji onemocnění v důsledku zhoršování fyziologických a biologických systémů. Se stárnutím se zvyšuje produkce reaktivních forem kyslíku (ROS), což způsobuje poškození lipidů, proteinů a DNA, což vede k buněčné dysfunkci a změněným buněčným procesům. Oxidační stres skutečně hraje klíčovou roli v patogenezi několika chronických poruch, včetně onemocnění jater, jako je nealkoholické ztučnění jater (NAFLD). NAFLD, nejběžnější porucha jater v západním světě, je charakterizována intrahepatální akumulací lipidů; je vysoce rozšířený ve stárnoucí populaci; a je úzce spojena s obezitou, inzulínovou rezistencí, hypertenzí a dyslipidémií. Mezi rizikovými faktory zapojenými do patogeneze NAFLD hraje zásadní roli dysbiotická střevní mikrobiota, která vede k chronickému zánětu nízkého stupně, oxidativnímu stresu a produkci různých toxických metabolitů. Střevní mikrobiota je dynamický ekosystém mikrobů, kteří se podílejí na udržování fyziologické homeostázy; změna jeho složení a funkce během stárnutí se podílí na různých onemocněních jater. Obnova střevní mikroflóry proto může být doplňkovým přístupem k léčbě NAFLD. Podávání probiotik, která mohou zmírnit oxidační stres a vyvolat několik vlastností proti stárnutí, by mohlo být strategií, jak upravit složení a obnovit zdravou střevní mikroflóru. Probiotika by skutečně mohla představovat platný doplněk k prevenci a/nebo pomoci při léčbě některých onemocnění, jako je NAFLD, čímž by se zlepšila již dostupná farmakologická intervence. Navíc při stárnutí poskytne intervence prebiotik a transplantace fekální mikroflóry, stejně jako probiotika, nové terapeutické přístupy. Příslušný výzkum je však omezený a v krátké době je třeba provést několik vědeckých výzkumů, aby se potvrdila jejich účinnost.
Glykosid cistanche může také zvýšit aktivitu SOD v srdeční a jaterní tkáni a významně snížit obsah lipofuscinu a MDA v každé tkáni, účinně zachycovat různé reaktivní kyslíkové radikály (OH-, H₂O₂ atd.) a chránit před způsobeným poškozením DNA. OH-radikály. Cystanche fenylethanoidové glykosidy mají silnou vychytávací schopnost volných radikálů, vyšší redukční schopnost než vitamín C, zlepšují aktivitu SOD v suspenzi spermatu, snižují obsah MDA a mají určitý ochranný účinek na funkci membrány spermií. Polysacharidy Cistanche mohou zvýšit aktivitu SOD a GSH-Px v erytrocytech a plicních tkáních experimentálně senescentních myší způsobených D-galaktózou, stejně jako snížit obsah MDA a kolagenu v plicích a plazmě a zvýšit obsah elastinu. dobrý čisticí účinek na DPPH, prodlužuje dobu hypoxie u senescentních myší, zlepšuje aktivitu SOD v séru a oddaluje fyziologickou degeneraci plic u experimentálně senescentních myší Experimenty prokázaly, že Cistanche má dobrou antioxidační schopnost s buněčnou morfologickou degenerací a má potenciál být lékem k prevenci a léčbě nemocí stárnutí kůže. Zároveň má echinakosid v Cistanche významnou schopnost vychytávat volné radikály DPPH a dokáže vychytávat reaktivní formy kyslíku, bránit volnými radikály indukované degradaci kolagenu a má také dobrý opravný účinek na poškození aniontů volnými radikály thyminu.
Klikněte na Anti-aging Cistanche Root Supplement
【Další informace: david.deng@wecistanche.com / WhatApp:{0}}】
1. Úvod
Takzvaná střevní mikroflóra (GM) se skládá z mnoha různých populací mikroorganismů (bakterií, archeí, hub a virů), které sídlí v gastrointestinálním traktu savců. V posledních letech se rozšířil významný zájem o střevní mikrobiotu, která je považována za jeden z klíčových faktorů přispívajících k udržení fyziologické střevní homeostázy, ochraně proti patogenům a modulaci imunitního systému. Všechny tyto důležité funkce činí z GM základní systém schopný regulovat zdraví hostitele [1,2]. Mnoho typů výzkumu složení GM, prováděných jak na zvířatech, tak na lidech, zdůraznilo jeho podíl na vzniku a progresi několika poruch, včetně neurodegenerativních; kardiovaskulární; gastrointestinální; a metabolická onemocnění, jako je obezita, diabetes 2. typu a nealkoholické ztukovatění jater (NAFLD) [3].
Progresivní degenerace tkání s následnou změnou struktury a funkce orgánů a ztráta homeostázy způsobují, že starší lidé jsou náchylnější k rozvoji onemocnění [4–6]. Během stárnutí se široce uvádí, že zvýšená nerovnováha mezi produkcí reaktivních forem kyslíku (ROS) a expresí antioxidačních enzymů vede k nástupu oxidačního stresu (OS) s následným poškozením proteinů, DNA a buněčných organel [7]. Konkrétně ve střevě OS spolu se sedavým způsobem života, změnami stravy a podáváním léků způsobuje GM dysbiózu, která přispívá ke zvýšení propustnosti střev, což má za následek uvolňování bakterií, endotoxinů a prooxidantů do systémový oběh. V konečném důsledku všechny tyto faktory přispívají k rozvoji jaterních onemocnění, jako je NAFLD [8]. V současné době je NAFLD považováno za nejčastější chronické onemocnění jater v západním světě a je charakterizováno nadměrnou akumulací intrahepatálního tuku a je silně spojeno s obezitou, hypertenzí a inzulinovou rezistencí [9]. Patogeneze NAFLD není zcela objasněna, ale nejvíce uznávanou hypotézou je interakce mezi faktory prostředí (jako je hyperkalorická dieta), GM změnami, sedavým způsobem života a genetickou predispozicí [10]. Postupem času se NAFLD může stát nealkoholickou steatohepatitidou (NASH) a nakonec progredovat do fibrózy, cirhózy a hepatocelulárního karcinomu [11]. Pro zablokování progrese NAFLD, a tím zlepšení zdravotního stavu seniorů, je důležitá prevence onemocnění. Užívání probiotik, což jsou živé mikroorganismy s četnými zdravotními přínosy, by mohlo být platnou strategií díky jejich schopnosti obnovit GM a zmírnit oxidační stres [12].
Tento přehled si klade za cíl zdůraznit možné faktory způsobující GM dysbiózu a narušení střevní permeability u starších lidí, se zaměřením především na OS, se zvláštní pozorností na souvislost mezi změněnou GM a rozvojem NAFLD. Diskutujeme také signatury GM spojené s NAFLD a použití probiotik jako potenciální terapeutické strategie k obnovení zdravého stavu GM a proti progresi NAFLD.
2. Nealkoholické ztučnění jater a nealkoholická steatohepatitida
Nealkoholické ztučnění jater je zastřešující termín zahrnující prostou steatózu nebo nealkoholické ztučnění jater (NAFL) a její progresi v nealkoholickou steatohepatitidu. NAFLD je jaterní projev „metabolického syndromu“, který také zahrnuje dyslipidémii, hypertenzi, inzulínovou rezistenci a diabetes [13,14]. Nedávno bylo navrženo, aby byl termín NAFDL nahrazen obecnější definicí metabolického ztučnění jater (MAFLD), i když obecně většina odborníků stále preferuje tradiční názvosloví, zejména proto, že mnoho klinických studií se v současné době specificky zaměřují na NASH [15]. Asi čtvrtina světové populace trpí NAFLD [16], přičemž výskyt přesahuje 43 procent u pacientů s metabolickým syndromem [17]. Progrese do NASH byla pozorována asi u 10 procent pacientů trpících NAFLD a častěji u pacientů trpících diabetem (37,7 procenta), kteří také představují nejvyšší míru prevalence NAFL (55,5 procenta) [18]. U NASH je ukládání tuku v játrech doprovázeno zvýšenou oxidací volných mastných kyselin a mitochondriální dysfunkcí, což vede k chronickému zánětlivému stavu, což může následně vést k vysokému riziku fibrózy, cirhózy a rozvoje hepatocelulárního karcinomu [11,19]. . Tradičně se věřilo, že v patogenezi NAFLD se podílejí dva hlavní „zásahy“, přičemž prvním je hromadění tuku v játrech vyvolané sedavým způsobem života, špatnými výživovými návyky a inzulinovou rezistencí [20] a druhým nadprodukcí lipidů. ROS [21]. Hypotéza dvou zásahů je nyní podle konsensu považována za příliš zjednodušující a místo toho byla navržena „hypotéza vícenásobných zásahů“ [11]. Hypotéza vícenásobných zásahů byla popsána jako „integrovaná odpověď“ organismu na kombinaci hyperkalorické výživy a sedavého životního stylu u geneticky predisponovaného hostitele, vedoucí k metabolickému syndromu a obezitě [22]. Tyto události jsou doprovázeny inzulinovou rezistencí ve svalu v reakci na zvýšené hladiny cirkulujících volných mastných kyselin, což vede ke zvýšení jaterní de novo lipogeneze (DNL) a nerovnováze v lipolýze tukové tkáně, což vede k vyšším hladinám cirkulujících mastných kyselin přeneseny do jater [22]. Inzulinová rezistence také přispívá k uvolňování adipokinů a zánětlivých cytokinů z tukové tkáně [23]. Stárnutí ovlivňuje proces de novo lipogeneze (DNL) většinou prostřednictvím změn v systémových mediátorech, jako je inzulín a leptin; ve skutečnosti je stárnutí stavem rezistence na inzulín a leptin [24]. K inzulínové rezistenci při stárnutí přispívá mnoho faktorů, včetně nárůstu tělesné adipozity a viscerálního tuku, zvýšeného zánětu tukové tkáně, zvýšení cirkulujících cytokinů, sedavého způsobu života a změn růstového hormonu/inzulínu podobného růstového faktoru I ( GH-IGF) [25]. Bylo prokázáno, že inzulínová rezistence vyvolává zvýšení procentuálního podílu DNL na akumulaci lipidů v játrech [26]. Transkripční faktory sterolový regulační element vázající protein (SREBP)-1c a protein reagující na sacharidy (ChREBP)-1, řízené inzulínem a glukózou, hrají klíčovou roli při stimulaci DNL v hepatocyty prostřednictvím zvýšení transkripce enzymů DNL omezujících rychlost, jako je syntáza mastných kyselin (FAS), stearoyl-CoA desaturáza-1 (SCD1) a acylcoA karboxyláza (ACC) [27]. Podobně jako u inzulinové rezistence se při stárnutí zvyšují i hladiny leptinu v séru spolu s paradoxním nedostatečným účinkem způsobeným více příčinami, včetně desenzibilizace receptorů, mutací v genech kódujících leptin a jeho receptory a také proteinů zapojených do samoregulace leptinu. syntézy a změn v permeabilitě hematoencefalické bariéry [28,29]. Leptin slouží jako „signál sytosti“, který působí primárně na úrovni hypotalamu ke snížení chuti k jídlu; takže snížené hladiny leptinu nebo leptinová rezistence mají za následek vyšší příjem potravy [30]. Kromě své ústřední role může mít leptin přímý účinek na DNL; receptory pro leptin byly také nalezeny v periferních tkáních včetně jater [31], takže změny v signalizaci leptinu mohou také vést k přímé pozitivní modulaci enzymu DNL [24]. V játrech vede nadměrná akumulace tuku k lipotoxicitě, což je stav, který podporuje oxidační stres a ovlivňuje fyziologické funkce mitochondriálního a endoplazmatického retikula [32]. Celkově tyto procesy vedou k jaternímu chronickému zánětu doprovázenému buněčnou smrtí, aktivací jaterních hvězdicových buněk (HSC) a fibrózou. Původní předpoklad, že steatóza vždy předchází zánět, však není vždy správný; ve skutečnosti může být NASH také počátečním poškozením jater: je to načasování a kombinace inzultů, které určují, zda se nejdříve objeví steatóza nebo NASH [33]. Nedávno byl identifikován deficit lipofagie jako další přispěvatel k nadměrné akumulaci lipidů v patogenezi NAFLD [34]. Lipofagie je vysoce regulovaný krokový proces, který sestává z (1) proteinem zprostředkované sekvestrace lipidových kapének v cytosolových vezikulách a vytvoření fagozomu; (2) transport fagosomu do lysozomu a vytvoření autofagolysozomu; a (3) degradace lipidů lysozomálními lipázami [35]. Na tomto procesu se podílí mnoho proteinů. Nákladní adaptér p62 je nezbytný, protože spojuje lipidický náklad s autofagozomy; zvýšené hladiny P62 jsou obvykle markerem snížené autofagie. LC3-II, protein, který se zaměřuje na prodlouženou autofagozomální membránu, je degradován lysozomálními proteázami; proto nárůst LC3-II naznačuje jeho zhoršený obrat [36]. Bylo zjištěno, že proteiny P62 i LC{67}}II se akumulují v samcích myší C57BL/6J a buňkách Huh7 kultivovaných s vysokým obsahem tuku/vysokým obsahem glukózy [35]. Kromě toho u pacientů s NAFLD byly lysozomy naplněné lipidovými kapkami a klastr P62/sekvestozom (SQSTM)1 spojeny se skóre aktivity NAFLD (NAS) a stádiem fibrózy, v daném pořadí, stejně jako úrovně exprese lysozomálních genů a genů souvisejících s autofagií, ukazují, že narušená autofagie je spojena s rysy pokročilého onemocnění [35].
3. Střevní mikrobiota a oxidační stres
Lidská mikroflóra se skládá ze široké škály mikroorganismů, které sídlí v různých částech těla, včetně kůže a gastrointestinálního, genitourinárního a dýchacího traktu [37]. Kromě těchto tělesných okrsků má své mikroby močová trubice a mléčné žlázy [38]. GM je komplexní a dynamický ekosystém bilionů komenzálních mikroorganismů, včetně různých společenstev bakterií a některých členů archaea, hub a virů, které žijí v gastrointestinálním traktu a dávají vzniknout vzájemnému vztahu s hostitelem [39,40 ]. Kolonizace trávicího traktu bakteriemi začíná in utero, přes placentu a plodovou vodu matky [41], zatímco po porodu způsob porodu (přirozený nebo císařský řez), krmení (kojení nebo umělé), požívání antibiotik nebo probiotik. v prvních dnech života ovlivňují složení GM genetika a faktory prostředí [39,42]. Bifidobacterium dominuje především v profilu mikrobioty kojenců, který se může během prvních 3 let života neustále měnit [43] v závislosti na řadě faktorů, jako je výživa, geografické rozšíření [44], genetické pozadí a imunologické podněty [45]. . Po 3 letech věku získává GM komplexnější vzorec dospělých, který je relativně stabilní po celou dobu dospělosti [37]. Konkrétně, GM zdravých dospělých se skládá z anaerobních bakterií, z nichž většina (více než 90 procent) patří do kmene Bacteroidetes (Bacteroides, Prevotella a Porphyromonas) a Firmicutes (Clostridia), následuje malé procento (1– 8 procent) Actinobacterium (Bifidobacterium), Proteobacteria a Verrucomicrobia [46,47]. GM je nezbytný pro lidské zdraví; skutečně může modulovat vrozené a adaptivní imunitní reakce, regulovat buněčný růst a zachovat funkci epiteliální bariéry [48]. Kromě toho se GM také podílí na metabolismu glukózy a lipidů, energetické bilanci, detoxikaci, syntéze vitaminu K a produkci mastných kyselin s krátkým řetězcem (SCFA; acetát, propionát a butyrát) [45,47].
Celkově je GM na základě svého složení popisován jako orgán s vysokou mírou variability a heterogenity, schopný se měnit a přizpůsobovat potřebám lidského těla hostitele [37]. V důsledku toho má GM každého člověka jedinečné složení, které se liší od ostatních [49]. Nicméně složení GM se drasticky mění, jak lidé stárnou v důsledku různých faktorů, včetně životního stylu, stravovacích návyků, stresu, užívání antibiotik a léků a environmentálních podnětů [39,50] (obrázek 1). Tato událost má za následek poškození a ztrátu střevní homeostázy [51], a tak u starších osob získává GM specifické vlastnosti, jako je méně prospěšných bakterií, změny dominantních druhů střev (snížení Firmicutes a zvýšení fakultativních aerobních bakterií) a proliferace proliferace patobiontů (streptokoky, stafylokoky, enterobakterie a enterokoky), kteří jsou zodpovědní za vznik zánětlivého stavu ve střevě [37,52,53]. Dále dysbiotická mikroflóra již není schopna plnit své primární prospěšné funkce, což vede k produkci toxických metabolitů a k zánětu, který následně způsobuje rozvoj různých metabolických onemocnění, jako je hypercholesterolémie, diabetes, obezita, NAFLD. a jeho progrese do NASH [54,55].
Vzhledem k tomu, že starší lidé mají potíže s otoky a žvýkáním ve spojení se sníženou pohyblivostí trávení [56], hraje výživa klíčovou roli při změně profilu GM [57]. Například strava s nedostatkem vlákniny a bílkovin, stejně jako nedostatek vitaminu D a vápníku, může změnit složení GM [58,59]. Navíc konzumace rostlinných bílkovin, živočišných bílkovin, inulinu, olivového oleje a omega-3 polynenasycených mastných kyselin (PUFA) může také modulovat GM [60]. Kromě stravy může být GM dysbióza způsobena také oxidativním stresem a léčbou léky zaměřenými spíše na lidské buňky než na mikroorganismy, jako jsou antidiabetika (metformin), inhibitory protonové pumpy (PPI), nesteroidní protizánětlivé léky (NSAID) a atypická antipsychotika (AAP) [61,62].
Akumulace ROS produkovaných buněčnými metabolickými a respiračními procesy je uznávána jako jedna z příčin, které podporují stárnutí [63]. Konkrétně ROS a reaktivní druhy dusíku (RNS) jsou nezbytné pro buněčnou proliferaci a diferenciaci, uvolňování cytokinů, metabolismus a imunitní odpověď. Jsou přirozeně produkovány buňkami organismu v nízkém množství [7]. Za fyziologických podmínek má organismus několik antioxidačních obranných mechanismů, včetně enzymů (kataláza, glutathionperoxidáza a superoxiddismutáza) a antioxidantů (jako je vitamín C, vitamín E, kyselina močová, karotenoidy a flavonoidy), které jej mohou chránit před oxidantem. druh; místo toho, jak lidé stárnou, existuje buněčná nerovnováha mezi těmito obranami a tvorbou ROS ve prospěch oxidantů, což vede k OS [7,64]. OS způsobuje molekulární a buněčné poškození, zejména proteinů, lipidů, DNA a organel [7,65], čímž přispívá k nekontrolované proliferaci, zánětu a buněčné smrti prostřednictvím apoptózy [66].

V průběhu stárnutí alterace buněčných makromolekul, stejně jako dysfunkce na úrovni mitochondrií, které představují primární zdroj energie, a následná další produkce ROS nakonec vedou ke vzniku poruch souvisejících s věkem [64].
Konkrétně na střevní úrovni vede kontinuální vystavení sliznice oxidantům pocházejícím ze stravy a bakterií k nadměrné produkci ROS a následnému nástupu oxidačního stresu [66]. OS může narušit těsná spojení epitelu tlustého střeva, následně zvýšit propustnost střevní sliznice, což vede k fenoménu známému jako syndrom „leaky gut“. Tento stav je charakterizován translokací prooxidantů a antigenů, jako jsou lipopolysacharidy (LPS), bakterie a jejich endotoxiny do systémové cirkulace, kde se dostávají do různých cílových orgánů [40,46], což vede k několika patologickým stavům, včetně metabolických poruch a infekčních a systémových onemocnění (jako jsou srdeční, neurodegenerativní a neoplastické) [40,67].
Jak již bylo zmíněno dříve, zatímco složení GM se zdá být přímo spojeno s produkcí ROS ve střevě [68], jiní autoři [60] naopak odhalili, že množství a složení GM může ovlivnit střevní produkci ROS. Konzumace probiotických bakterií a antioxidačních živin schopných změnit GM může snížit produkci ROS inhibicí prooxidačních enzymů a stimulací antioxidačních enzymů a souvisejících drah [60]. Kromě toho může GM sám o sobě produkovat molekuly antioxidantů (glutathion, butyrát a folát) schopné chránit střevo před toxiny a ROS [69].
A konečně, vzhledem k tomu, že nerovnováha mezi tvorbou druhů kyslíku a antioxidační obranou způsobuje poškození střev, nadměrné množství ROS a RNS vede ke zvýšenému buněčnému oxidačnímu stresu, což přispívá k GM dysbióze, která podporuje několik gastrointestinálních stavů, jako jsou záněty a metabolické poruchy, jako NAFLD [60]. Změna střevní mikrobioty je důležitým faktorem, který přispívá k patogenezi NAFLD a její progresi do NASH [54]. Zejména dysbióza a oxidační stres vedou k dysregulaci střevní permeability, což má za následek uvolňování endotoxinů a metabolitů mikrobioty, pocházejících ze sacharolytické a proteolytické fermentace, na úrovni jater, s následným zvýšením akumulace jaterního tuku. a zánět [8], typické znaky tohoto onemocnění. V průběhu času, pokud tyto stavy přetrvávají, NAFLD progreduje do NASH, závažnější formy, charakterizované hepatocelulárním poškozením, chronickým zánětem a fibrózou [70] (obrázek 2).
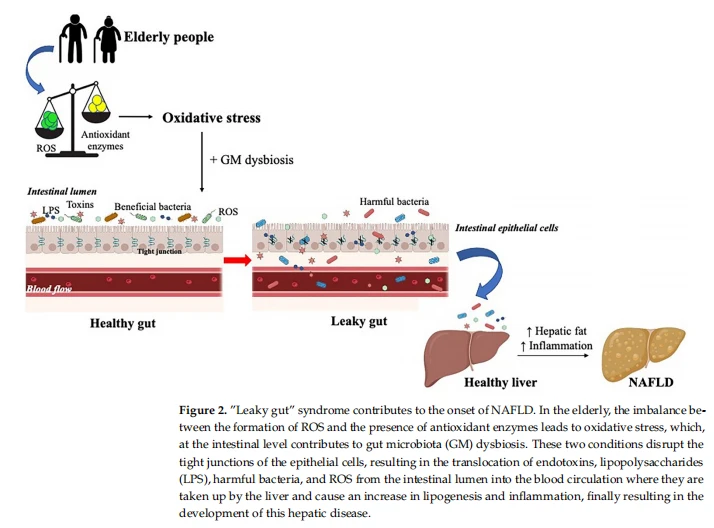
4. Vývoj střevní mikroflóry a NAFLD na zvířecích modelech
V posledních desetiletích poskytly experimenty s fekální transplantací u myší rostoucí množství důkazů o kauzální roli mezi GM alteracemi a rozvojem NAFLD/NASH [71,72]. GM byla studována na různých zvířecích modelech NAFLD a bylo zjištěno, že její změna souvisí s genezí a progresí NAFLD. Dospělé bezmikrobní myši krmené běžnou stravou, když byly vystaveny mikrobiotě sklizené z konvenčně chovaných zvířat, vykazovaly 60procentní nárůst obsahu tělesného tuku a nárůst inzulinové rezistence, pravděpodobně v důsledku zvýšené absorpce monosacharidů z lumen střeva, což vede k indukci jaterní de novo lipogeneze [73]. Podobně bezmikrobní myši divokého typu krmené stravou západního stylu s vysokým obsahem tuků a na cukry jsou méně náchylné k rozvoji steatózy ve srovnání se zvířaty chovanými v konvenčních podmínkách [74,75]. Naopak, steatóza se pravidelně rozvíjí u bezmikrobních knockout myší (KO), kterým chybí adipózní faktor vyvolaný hladověním (FIAF), inhibitor cirkulující lipoproteinové lipázy normálně potlačovaný GM, což naznačuje, že FIAF je mediátorem mikrobiálně regulovaného ukládání energie [74] ]. Uznání role GM ve vývoji NAFLD také implikuje koncept, že NAFLD je potenciálně přenosný proces [76]. U bezmikrobních myší kolonizovaných obsahem slepého střeva odebraným od dárců, kteří buď reagovali, nebo nereagovali na dietu s vysokým obsahem tuku, se vyvinuly příznaky srovnatelné s příslušným dárcem, když byly krmeny stejnou stravou. Jinými slovy, u bezmikrobních myší, které dostávaly střevní mikroflóru z myší respondérů, se vyvinula makrosteatóza a hyperglykémie; jinak se u myší, které dostávaly střevní mikroflóru od nereagujících myší, nevyvine NAFLD, když jsou krmeny dietou s vysokým obsahem tuků [77]. Podobný účinek byl pozorován u myší kolonizovaných lidskou GM od zdravých jedinců nebo pacientů s NAFLD: u myší krmených dietou s vysokým obsahem tuků se vyvinuly závažnější symptomy NAFLD, když dostávaly mikroflóru od pacientů s NAFLD a naopak [78]. V novější práci byl kvercetin podáván dárcovským myším krmeným dietou s vysokým obsahem tuku, aby se upravilo složení mikrobioty; transplantace mikroflóry od dárců léčených kvercetinem bezmikrobním myším vedla k ochrannému fenotypu proti NAFLD vyvolanému dietou [79]. Dále u myší krmených západní stravou bylo zhoršení symptomů NASH spojeno s deplecí chemokinového receptoru CX3CR1 spřaženého s G proteinem; bylo také zjištěno, že vyčerpání GM pomocí širokospektrých antibiotik chrání myši před NASH vyvolaným dietou, podobně jako to, co bylo prokázáno u bezmikrobních myší [80].
Methionin-cholin deficientní (MCD) dieta je dalším dobře zavedeným zvířecím modelem NAFLD. V tomto modelu nedostatek cholinu ovlivňuje export triglyceridů prostřednictvím lipoproteinů s velmi nízkou hustotou (VLDL), což vede ke steatóze jater; nedostatek methioninu navíc zhoršuje syntézu glutathionu, což způsobuje významný nárůst oxidačního poškození [14]. NAFLD vyvolaná MCD dietou je charakterizována jaterním balonem, výrazným oxidačním stresem, chronickým zánětem a fibrózou, bez rozvoje hyperglykémie, dyslipidémie a inzulínové rezistence; proto je vhodnější pro studium zánětu a fibrózy [81]. U myší vyvolává podávání MCD diety přetrvávající změny v GM a narušení střevní bariéry [82]. Neočekávaně však u myší MCD léčba širokospektrými antibiotiky zaměřená na depleci mikroflóry nevyvolává stejný účinek jako u myší bez mikrobů nebo myší léčených antibiotiky krmených západní stravou, což vede ke zhoršení steatózy, zánět, vyšší histopatologické skóre aktivity NAFLD (NAS) a významně vyšší poměr hmotnosti jater k tělesné hmotnosti [83]. Naproti tomu modulace mikroflóry prostřednictvím probiotik prokázala příznivé účinky jak v modelu NAFLD s vysokým obsahem tuku, tak v modelu NASH vyvolaném MCD [84], což naznačuje, že v modelu MCD si mikroflóra zachovává svou ochrannou aktivitu, která se ztrácí při vysokých -tukové a západní dietní modely NAFLD. Tyto poslední práce naznačují, že mikrobiota by měla být vnímána jako potenciální terapeutická látka i cíl léčiva pro léčbu NAFLD.
Alternativní model NAFLD spočívá v suplementaci vysokých dávek fruktózy v běžné stravě [14]. Je zajímavé, že suplementace vysokým obsahem fruktózy nemusí nutně vést k nárůstu tělesné hmotnosti, ale ve skutečnosti ke zvýšení poměru hmotnosti jater/tělesné hmotnosti [75], což podporuje nově získanou představu, že steatóza jater způsobená dietou nemusí nutně předcházet zvýšení tělesné hmotnosti [85] ]. Fruktóza ve vysokých dávkách je spojena s přemnožením mikrobioty a zvýšenou propustností střeva, což vede k aktivaci jaterních Kupfferových buněk závislé na endotoxinu. Potlačení endotoxinem zprostředkované aktivace Kupfferových buněk u toll-like receptor (TLR)-4 mutantních myší vedlo ke snížení akumulace triglyceridů v játrech přibližně o 40 procent ve srovnání s myší divokého typu krmenou fruktózou [{{ 11}}]. Fruktózou indukovaná steatóza také chybí u bezmikrobních myší, což potvrzuje, že bakteriální produkty, jako je LPS, jsou nutné k indukci jaterní steatózy a naznačuje, že střevní mikroflóra se podílí na patogenezi experimentálního ztučnění jater [75].
Bylo formulováno několik hypotéz, jak GM může přispět k rozvoji NAFLD a progresi do NASH. Jak již bylo zmíněno, zahrnují zvýšenou propustnost střeva, což vede ke zvýšené absorpci mikrobiálně produkovaných toxinů a metabolitů hostitelem, jako je LPS, trimethylamin N-oxid (TMAO), cholin a etanol, které spouštějí zánět a ovlivňují imunitu [71] . Zdá se, že infiltrující imunitní buňky, jako jsou makrofágy odvozené od monocytů a neutrofilní granulocyty, dva mediátory zánětu jater během NASH, mají významnou roli ve zhoršení NAFLD zprostředkovaném mikrobiotou; Antagonisté chemokinových receptorů inhibicí náboru monocytů snižují balonování hepatocytů, fibrózu a zánět jak u modelů západní diety, tak u dietních modelů MCD [87]. Infiltrující imunitní buňky exprimují vysoké hladiny receptorů rozpoznávajících patogeny (PRR), včetně členů rodiny zánětu NLR, určených k rozpoznávání toxinů uvolňovaných mikrobiotou, které se dostávají do jater portální cirkulací [88]. Je zajímavé, že u myší s deficitem zánětu NLRP3 a NLRP6 je nepříznivá střevní mikroflóra spojena se ztrátou integrity střevní bariéry a zvýšenou translokací toxinů mikrobiálního původu do jater, kde aktivují zánět jater [89]. Tyto údaje naznačují, že translokace bakteriálních produktů ze střeva do jater je součástí vysoce regulované série komplexních interakcí mezi střevem, jeho mikrobiotou a játry, často označované jako osa střevo-játra a přispívající k játrům. akumulace tuku a zánět u NASH [90].
【Další informace: david.deng@wecistanche.com / WhatApp:{0}}】