Výhodný/nepříznivý účinek kvercetinu na membrány buněk SK-N-SH neuroblastomu 2. část
Apr 29, 2022
prosím klikněteoscar.xiao@wecistanche.comPro více informací
2.2.2. Antioxidační aktivita kvercetinu
Pro testování účinnosti kvercetinu při ochraně membrán před oxidačním stresem byly provedeny experimenty, ve kterých byly lipidové modely membrány vystaveny ozónu v nepřítomnosti (obrázek 4a) a přítomnosti kvercetinu v koncentraci 6,25 μM (obrázek 4b).
Vlivem ozónu se mění průběh obou závislostí, tj. π{{0}}f(A)a Cs-1=f(rn). Izotermy získané pro šíření monovrstvy na subfázi obsahující ozon se vyznačovaly menším sklonem a posunem k nižším hodnotám A. Hodnoty Cs-1 se navíc vlivem ozónu snížily. Tyto změny byly největší při koncentraci ozonu asi 0,4 ppm.cintancheDalší zvýšení koncentrace ozonu nezvýšilo změny v charakteristikách monovrstvy (obrázek 4a vložený obrázek).

Obrázek 4. Izotermy povrchového tlaku a odpovídající modul stlačitelnosti (vložka) lipidového modelu vrstev neuroblastomu rozprostřených na podfázi obsahovaly uvedené koncentrace ozonu rozpuštěného v pufru. Izotermy: (a) v nepřítomnosti antioxidantů; (b) v přítomnosti kvercetinu (6,25 μM) přidaného do pufru obsahujícího ozon.
Při zavedení kvercetinu v koncentraci 6,25 μM do subfáze ozon významně neovlivnil průběh izotermy r(A); hodnoty kompresního modulu se však v přítomnosti ozonu měnily podobně jako v případě nepřítomnosti kvercetinu (obrázek 4b vložený text).

Číselné hodnoty parametrů charakterizujících monovrstvy stanovené na základě získaných izoterm jsou uvedeny v tabulce 3.
Tabulka 3. Povrchové parametry monovrstev Alim a Cs-I vypočtené pro monovrstvy modelu šíření membrány neuroblastomu na subfázi obsahovaly uvedené koncentrace ozonu rozpuštěného v pufru v nepřítomnosti a v přítomnosti kvercetinu (6,25 uM). Data představují průměr ze tří experimentů ± SD. Různá písmena označují významné rozdíly (p Menší nebo rovno 0.05).
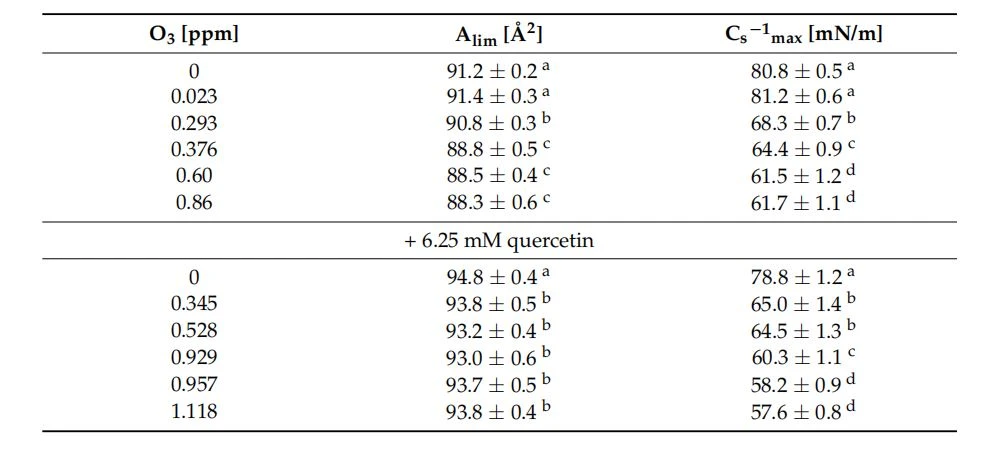
V přítomnosti ozonu je pozorováno mírné zmenšení plochy povrchu na molekulu (Alim) v hustě zaplněné monovrstvě. Maximální snížení tohoto parametru je 3,2 procenta ve srovnání s kontrolou (monovrstva na čistém pufru). Parametr Cs-I je rovněž snížen a dosahuje plató při koncentracích ozonu nad 0,6 ppm O. Maximální snížení tohoto parametru dosahuje 24 procent ve srovnání s kontrolou.
Když je v subfázi přítomen kvercetin v koncentraci 6,25 uM, hodnoty Alim (1-2 procent) mírně klesají, zatímco snížení hodnoty Cs-1 je asi 27 procent.
Povaha změn Alim v přítomnosti ozónu a ozónu v kombinaci s kvercetinem má různé průběhy. Při koncentraci ozonu asi 0,3 ppm, v nepřítomnosti kvercetinu, se Aim náhle sníží na asi 88,3 A2. Poté dosáhne minimální hodnoty plató poskytující charakteristickou závislost tvaru S (obrázek 5a, červené body). V přítomnosti kvercetinu dochází k mírnému hladkému monotónnímu poklesu Alim, dosahující vyšší koncentrace ozonu na plató asi 93,5 A2 (obrázek 5a, zelené body).
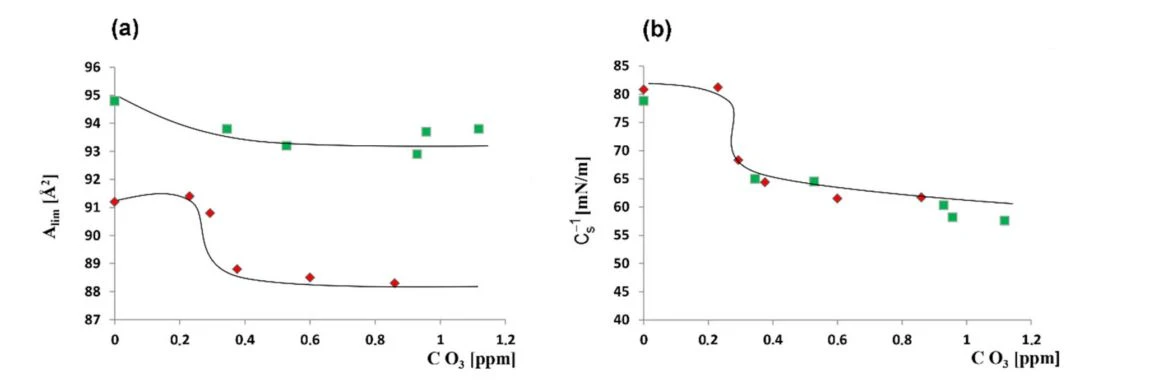
Obrázek 5. Závislost plochy na molekulu na koncentraci ozonu (a) a závislost kompresního modulu na koncentraci ozonu (b) pro membránu neuroblastomu na subfázi: Bez kvercetinových červených bodů; s kvercetinově zelenými body. Čáry nepředstavují žádný fyzický model, byly matematicky přizpůsobeny a byly nakresleny pro usnadnění sledování změn parametrů. Hodnoty maximálního kompresního modulu vrstvy se mění podobně s koncentrací ozonu pro oba: v nepřítomnosti i v přítomnosti kvercetinu (obrázek 5b).
3. Diskuse
Mechanismus účinku kvercetinu je intenzivně studován již řadu let, ale výsledky experimentů jsou často rozporuplné a naznačují, že za určitých okolností je tato sloučenina pro buňky prospěšná a za jiných nepříznivá. Analýza dostupných studií ukazuje, že účinek této sloučeniny na buňky souvisí se dvěma aspekty, tj. s její interakcí s membránami a antioxidační aktivitou. V buňkách však není možné rozlišit tyto dva způsoby působení kvercetinu a posouzení vhodnosti této sloučeniny jako potenciální látky, např. s protinádorovou aktivitou. Z tohoto důvodu byly experimenty naplánovány tak, aby kvalitativně i kvantitativně posoudily vliv této sloučeniny na mechanické vlastnosti membrán a také její antioxidační aktivitu v modelovém systému, který eliminuje účinky činnost dalších metabolických drah.
Na základě provedených experimentů bylo potvrzeno, že i při nejnižších koncentracích (6,25 uM) kvercetin modifikuje (jak je indikováno zvýšením Alimvalue) modelové monovrstvy napodobující lipidovou část membrány neuroblastomových buněk. Poukazuje na možnost interakce kvercetinu s membránami těchto buněk při vstupu do mozku i při nízkých koncentracích. To je zvláště důležité pro nervové buňky, jejichž membrány obsahují relativně velké množství lipidů.

Cistanche může zlepšit imunitu
Přibližný poměr lipid-protein pro nervové buňky je 80:20 procent a například pro membránu erytrocytů je tento poměr 50:50 procent [29]. Taková hladina lipidů v membráně nervových buněk je spojena s úlohou těchto buněk při přenosu elektrických signálů. Přitom i jemné změny fyzikálně-chemických vlastností, jako je pružnost a tuhost buněčné membrány, mohou tuto funkci výrazně narušit.
Akční potenciál se přenáší po membráně nervové buňky díky práci iontových kanálů a následně se díky působení iontových pump obnovuje klidový potenciál. Správné fungování těchto proteinů (zejména určené jejich tvarem) je úzce závislé na lipidovém prostředí. Navíc změny mechanických vlastností membrány mohou narušit činnost kanálů, jejichž vtokový mechanismus závisí právě na mechanických vlastnostech membrány.
Tyto teze potvrzují studie, které ukázaly, že účinek kvercetinu na buněčnou membránu souvisí mimo jiné s transportem Ca2 plus iontů a/nebo Ca2 plus metabolismem [30,31]. Zavedení molekul kvercetinu do prostředí membrány (zejména nervových buněk) tedy může mít významné důsledky na jejich fungování.
Aby se ověřilo, zda účinek kvercetinu stanovený v modelových systémech hraje prospěšnou nebo nepříznivou roli v buňkách, byly výsledky získané pro modelové membrány porovnány s účinkem této sloučeniny na celé buňky neuroblastomu. Pro SK-N-SH buňky byl proveden MTT test,Extrakt z Cistanche proti Alzheimerově choroběposkytuje informaci o buněčné životaschopnosti buněk, která je zase přímo úměrná enzymům mitochondriální dehydrogenázy.
Získané výsledky ukázaly, že přítomnost kvercetinu v koncentracích 100 a 200 uM zvýšila počet životaschopných buněk. Podobné výsledky byly získány Bao et al. [32], zkoumající účinek kvercetinu na PC-12 buňky. Na stejných hladinách kvercetinu byl zkoumán i únik LDH do extracelulárního prostředí, který dává informaci o narušení buněčné membrány. Získané výsledky prokázaly, že membrány testovaných buněk nebyly za takových podmínek poškozeny. Boots a kol. [2], kteří studovali účinky kvercetinu na buňky plicního epitelu, zaznamenali podobné výsledky. Lze tedy učinit závěr, že v těchto koncentracích má kvercetin pozitivní vliv na buňky a zvyšuje jejich životaschopnost.
Druhý důležitý aspekt mechanismu účinku kvercetinu souvisí s jeho antioxidačními vlastnostmi. Pro posouzení souvisejícího účinku studovaného polyfenolu byly provedeny experimenty, ve kterých bylo ověřeno, zda kvercetin hraje protektivní roli v buňkách vystavených oxidativnímu stresu. Oxidační stres byl generován zavedením H, O2 do buněčného prostředí.Cistanche pro zlepšení pamětiJak bylo prokázáno v této studii, peroxid vodíku způsobuje významnou buněčnou mortalitu, vyjádřenou jako poškození mitochondrií.
Když byly buňky SK-N-SH kultivovány po dobu 3 hodin v médiu obsahujícím 3 a 5 mM H202, životaschopnost buněk se snížila na přibližně 44 procent životaschopnosti neošetřených buněk (test MTT). Studie ukázaly, že 24 hodinová předúprava buněk kvercetinem způsobuje zvýšení počtu živých buněk ve srovnání s buňkami ošetřenými H2O2. Suematsu a kol. [13] zaznamenali podobné účinky.
Měřili jsme také hladinu MDA, což je biomarker oxidačního stresu jako konečný produkt peroxidace lipidů[33]. Předběžné ošetření buněk vysokými koncentracemi kvercetinu s následným přidáním peroxidu vodíku vedlo k mírnému zvýšení obsahu MDA ve srovnání s buňkami vystavenými samotné H202. To může být způsobeno tím, že kvercetin (ve vyšších koncentracích) může také podléhat oxidoreduktivní aktivaci a být předmětem redoxního cyklování, generujícího intracelulárně reaktivní formy kyslíku [34].
U buněk ošetřených kvercetinem a H2O2 nedošlo k žádným významným změnám v destrukci membrány (jak ukazuje nezměněná hladina LDH) ve srovnání s případem, kdy byly buňky vystaveny pouze oxidativnímu stresu. Lze tedy usoudit, že navzdory zvýšení peroxidace lipidů (při vysokých koncentracích kvercetinu) to nebylo dostatečně významné, aby zničilo membrány a narušilo jejich kontinuitu.
Pozorování získaná pro nativní systém byla konfrontována s pozorováními získanými pro modelový systém, kde je možné přesně řídit jak koncentraci kvercetinu, tak hladinu stresu. Bylo ověřeno, jak je lipidová část membrány neuroblastomu odolná vůči oxidativnímu stresu. Stresové podmínky byly vytvořeny zavedením ozonu do pufru, kde ozon ve vodním prostředí prochází rozkladnými reakcemi za vzniku oxidačních radikálů, mimo jiné hydroxylových radikálů a superoxidových aniontových radikálů [35]. Získaná směs reaktivních forem kyslíku odpovídá těm, které se přirozeně vyskytují v buňkách, kvůli nerovnováze redoxního stavu [36-38].
Vlivem napětí se změnil tvar izoterm, což ukazuje na významný pokles plochy na jednu molekulu v hustě sbalené monovrstvě. K takovým změnám došlo v důsledku oxidace nenasycených vazeb v řetězcích mastných kyselin. Tento účinek se zvýšil se zvýšením koncentrace ozonu na přibližně {{0}},3 ppm, a pak tento parametr izotermy zůstal na stejné úrovni navzdory nárůstu ROS. To znamená, že při koncentraci ozonu asi 0,3 ppm byly všechny nenasycené mastné kyseliny přítomné v monovrstvě oxidovány (v modelu neuroblastomu bylo celkové množství nenasycených mastných kyselin 52 procent).
Oxidované monovrstvy mají značnou tuhost,cistanche v čínštinějak je reprezentováno hodnotou Cs-1 (čím vyšší je hodnota tohoto parametru, tím větší je tuhost vrstvy). V přítomnosti kvercetinu i při nízké koncentraci (6,25 μM) byly modifikace membrány vystavené ozónu, jak je patrné ze změn hodnoty Alim, významně sníženy (obrázek 5a), což dokazuje antioxidační aktivitu této sloučeniny. . Stojí však za zmínku, že ačkoli kvercetin vychytával radikály a chránil nenasycené mastné kyseliny před oxidací, nezvrátil změny v tuhosti membrány (obrázek 5b).
Bylo tedy prokázáno, že kvercetin vykazuje antioxidační působení, ale jeho pouhá přítomnost mezi molekulami lipidů ovlivňuje (určuje) parametry laveru, tj. i přes ochranu řetězců mastných kyselin před oxidací se výrazně snížila tuhost membrány (Cs- Hodnotím asi o 25 procent níže oproti kontrole).
Tyto výsledky naznačují, že je to změna membrány, která je hlavním faktorem v buněčných účincích vyplývajících z přítomnosti kvercetinu. Důsledky této změny (úprava signalizace, transport) se však liší v závislosti na počtu molekul polyfenolu, počátečním složení membrány a funkci buňky. To vysvětluje, proč za různých okolností a v různých studiích vykazuje kvercetin ochranný účinek, zatímco v jiných zcela opačný.
V situaci vysokého oxidačního stresu pomáhá antioxidační účinek buňce tím, že chrání její složky před poškozením. Pokud jsou však membrány významně modifikovány umístěním této sloučeniny v jejich prostředí, což vede k distribuci signálních nebo transportních drah změnou tuhosti membrány, může to vést k nepříznivým účinkům. Je třeba také pamatovat na to, že mnoho procesů v buňce probíhá současně, a to jak procesy související s membránami, tak procesy, které generují oxidační stres. Efekt, který lze pozorovat a měřit stanovením úrovně konkrétních ukazatelů, je vždy celkový. Jsou tedy situace, kdy je účinek kvercetinu vnímán jako příznivý a nepříznivý.
4. Materiály a metody
4.1.Materiály
Složení modelu lipidové části membrány buněk neuroblastomu bylo stanoveno na základě práce autorů [39-41]. Fosfolipidy: 1-oleoyl-2-palmitoyl-sn-glycerol-3-fosfocholin;1-hexakosanoyl-d4-2-hydroxy-sn-glycerol-3-fosfocholin; 1,2-dioleoyl-sn-glycerol-3-fosfocholin; L- -fosfatidylethanolamin (mozek); sfingomyelin (Brain)-(Avanti Polar Lipids Inc., Alabaster, AL, USA). Cholesterol byl zakoupen (Sigma-Aldrich, Darmstadt, Německo). Poměr fosfolipidů k cholesterolu byl 79 procent ku 21 procentům. Poměr nasycených a nenasycených mastných kyselin byl 48 procent ku 52 procentům.
Rozpouštědla (chloroform, ethanol) chemické čistoty - Poch (Gliwice, Polsko); čerstvě deionizovaná voda vyrobená HLP 5 Hydrolab (Straszyn, Polsko). Kultivační médium, sérum a antibiotika byly zakoupeny od CytoGen GmbH. Chemická činidla použitá v experimentech byla získána od Sigma Aldrich.
4.2. Buněčná kultura
Lidská neuroblastomová buněčná linie SK-N-SH (The European Collection of Authenticated Cell Cultures (ECACC) byla kultivována v 10 procentech fetálního bovinního séra (FBS) v Dulbeccově modifikovaném Eagle médiu (DMEM), doplněném 0,01 procenta penicilinu -streptomycin při 37 stupních ve zvlhčené atmosféře, obsahující 5 procent CO2.
4.3. Měření životaschopnosti buněk (MTT test)
Buňky byly nasazeny na {{0}}jamkovou destičku v hustotě 1x10⁴ buněk na jamku v objemu 0,1 ml. Buňky byly ošetřeny po dobu 24 hodin různými koncentracemi kvercetinu (3.75-200 μM). Po uplynutí této doby byly na 3 hodiny přidány 3 mM a 5 mM peroxid vodíku. Vzhledem k nedostatku rozdílů mezi účinky HO2 v koncentracích 3 a 5 μM, pro statistické studie byly ošetřeny jako stejné ošetření a popsány jako ošetření 3-5uM H2O2.
Poté 50μl MTT(3-【4,5-dimethylthiazol-2-yl】-2,5 difenyltetrazolium bromidu)roztok (sterilní zásobní roztok 5 mg/ml) byl přidán k buňkám a inkubován po dobu 2 hodin při 37 stupních ve zvlhčené 5% CO2 atmosféře. Poté bylo do každé jamky přidáno 0,4 ml dimethylsulfoxidu (DMSO) a udržováno po dobu 10 minut. Po centrifugaci byla měřena optická hustota supernatantu při 570 nm pomocí čtečky mikrolitrových destiček (BioTek Instruments, VT, USA).
4.4. Test poškození membrány (LDH test)
Test laktátdehydrogenázy (LDH) byl použit jako marker celistvosti buněčné membrány.
Buňky v množství 1× 1{{10}}* buněk na jamku byly nasazeny na 96-jamkovou destičku a inkubovány v přítomnosti kvercetinu (3.75-200 μM) po dobu 24 hodin; Poté byly na 3 hodiny přidány 3 mM a 5 mM H20. Do zkumavek obsahujících 0,5 ml 0,75 mM pyruvátu sodného a 10 ul NADH(140 μM) (zahřátých na 37 °C po dobu 10 minut) bylo přidáno 150 ul supernatantu a inkubováno po dobu 30 minut při 37 stupních. Poté bylo ke vzorku přidáno 0,5 ml 2,4-dinitrofenylhydrazinu a po 1 hodině byla měřena absorbance při 450 nm.
4.5. Stanovení peroxidace lipidů (koncentrace MDA)
Peroxidace membránových lipidů byla odhadnuta reakcí kyseliny thiobarbiturové (TBA) s malondialdehydem (MDA). Buňky byly nasazeny do {{0}}jamkových destiček obsahujících kvercetin a H, O2 (v koncentracích a časech popsaných výše) v množství 1×10⁴ buněk na jamku v objemu { {10}},25 ml. Po ošetření byly vzorky odebrány a odstředěny (1000×&,5 min). K peletám se přidalo 0,5 ml 0,5% TCA, míchalo se 1 minutu na vortexu a lyžovalo se sonikací po dobu 5 minut. Po centrifugaci při 10 000 x g po dobu 10 minut bylo 0,4 ml supernatantu přidáno k 1,25 ml 20% TCA s 0,5% TBA a zahříváno v suchém termobloku (100 stupňů) po dobu 30 minut. Po ochlazení byla měřena absorbance při 532 nm s použitím molárního extinkčního koeficientu MDA rovného 155 M-1 cm-1.
4.6.Modelové membrány
Ozonizace pufru. Fosfátový pufr (0,01 M, pH 7,4) byl nasycen ozonem vyrobeným ozonovým generátorem FM 500 (Grekos, Polsko). Koncentrace ozonu v pufru byla stanovena podle Badera a Hoigna [42].
Izotermy povrchového tlaku.cistanche růst penisuLangmuirův žlab (KSV, Finsko) byl použit pro registraci izotermy povrchového tlaku při konstantní rychlosti stlačení odpovídající bariérové rychlosti 5 mm/min. Lipidová monovrstva byla vytvořena nanesením definovaného množství lipidového chloroformového roztoku o koncentraci 1 mg/ml na subfázi složenou z vodného 0,01 M fosfátového pufru, pH 7,4 s nebo bez kvercetinu a s nebo bez ozónu. Povrchové napětí bylo měřeno Pt-Wilhelmyho destičkou. Experimenty byly prováděny při 25 stupni ± 1 stupeň.
4.7. Statistická analýza
Pro každou testovanou variantu bylo provedeno tři až šest nezávislých analýz a zprůměrovány (±SD). Významné rozdíly ve srovnání s kontrolami byly odhadnuty použitím postupu SAS ANOVA. Statistická analýza byla provedena Duncanovým vícenásobným rozsahovým testem, přičemž str<0.05. statistical="" tests="" were="" carried="" out="" using="" statistica="" 13.3(cracow,="">
Autorské příspěvky: Konceptualizace, BK, BD a ER-S.metodologie, BKBD; software, BK, BDvalidace, BK, BD, ER-S., ABwriting – příprava originálního návrhu BK, BD, ER-S., psaní – kontrola a editace, BK, BD, ER-S., ABvizualizace, BK, BDsupervize, BK, BD, ER-S., AB Všichni autoři si přečetli publikovanou verzi rukopisu a souhlasí s ní.
Financování:Tento výzkum nezískal žádné externí financování.
Prohlášení institucionální revizní rady: Nelze použít.
Prohlášení o informovaném souhlasu: Nelze použít.
Prohlášení o dostupnosti dat: Údaje jsou obsaženy v článku. Střet zájmů: Autoři neprohlašují žádný střet zájmů.
Tento článek je extrahován z Molecules 2021, 26, 4945. https://doi.org/10.3390/molecules26164945 https://www.mdpi.com/journal/molecules