Exogenní oxid dusnatý stimuluje časný odchod sporozoitů Eimeria Tenella z primárních buněk kuřecích ledvin in vitro
May 10, 2022
Pro více informací Kontakttina.xiang@wecistanche.com
Abstraktní-Výtok hraje zásadní roli v životním cyklu apikomplexních parazitů včetně Eimeria tenella, který přitahuje pozornost různých výzkumných skupin. Mnoho nedávných studií se zaměřilo na časný odchod indukovaný imunitními molekulami za účelem vyvinutí nové metody eliminace parazita apikomplexa. V této studii jsme zkoumali, zda oxid dusnatý (NO), imunitní molekula produkovaná různými typy buněk v reakci na stimulaci cytokiny, může indukovat časný odchod amerických sporozoitů in vitro. Sporozoity Eimeria tenella byly extrahovány a kultivovány v primárních buňkách kuřecích ledvin. Počet sporozoitů uvolněných z infikovaných buněk byl analyzován průtokovou cytometrií po ošetření NO uvolněným dihydrátem nitroferikyanidu sodného (II). Výsledky ukázaly, že exogenní NO stimuloval rychlý odchod sporozoitů E.tenella z primárních kuřecích ledvinových buněk před replikací parazita. Zjistili jsme také, že výstup byl závislý na hladinách intraparazitických iontů vápníku (Ca2) a po výstupu nedošlo k žádnému poškození hostitelských buněk. Virulence uvolněných sporozoitů byla významně nižší než virulence čerstvých sporozoitů Výsledky této studie přispívají k novému oboru zkoumání interakcí mezi apikomplexními parazity a jejich hostitelskými buňkami, stejně jako vylučování intracelulárních patogenů hostitelemimunitní systém.
Klíčová slova: Egress, Eimeria tenella sporozoites, Oxid dusnatý.
Cistanche tubulosaje bohatý naechinakosidaverbascoside, takže má dobrý vliv na zlepšení imunity. Cistanche tubulosa je cenný léčivý materiál, který může vzrušovat hypofýzu a kůru nadledvin nebo má účinek podobný hormonům jako kůra nadledvin a reguluje imunitní funkce těla. Je prokázáno, že polysacharidy Cistanche tubulosa mohou posílit imunitní funkci těla; účinek na posílení imunitypolysacharidsložky mohou hrát hlavní roli v posilujícím a tonizačním účinku Cistanche tubulosa. Verbasin, jedna z účinných látek Cistanche tubulosa, má podle odborníků také pozitivní účinky na imunitní regulaci. Podle dosavadních výzkumných dat v akademické sféře lze mít za to, že imunomodulační funkce a projímavé funkce tradiční čínské medicíny Cistanche má velký klinický význam pro posílení imunity organismu a uzdravení pacientů s COVID-19.

Kliknutím se naučíte cistanche nootropika
Úvod
Členové kmene Apicomplexan jsou obligátní intracelulární patogeny a patří mezi ně Toxoplasma Gondi, Plasmodium spp. a Cryptosporidium spp., které infikují mnoho hostitelů obratlovců včetně člověka a způsobují vážná onemocnění [9,25,33]. Paraziti apikomplexu podstupují ve svých asexuálních stádiích složité procesy včetně invaze, replikace a úniku [28]. Mezi těmito procesy je únik životně důležitým krokem, který umožňuje parazitům invazi do jiné hostitelské buňky za účelem dalšího vývoje [14]. Výstup obvykle vede k lýze hostitelských buněk, což vede ke zhoubným následkům [5, 6]. Protože je tento proces klíčový jak pro patogeny tohoto kmene, tak pro hostitele, bylo v této oblasti provedeno mnoho studií [29, 30]. Většina těchto zpráv je však omezena na Plasmodium spp. a Toxoplasma Gondi [6]. Eimeria spp. je dalším důležitým rodem apikomplexových parazitů, který má vážné negativní dopady na drůbežářský průmysl po celém světě, ale o procesu egrese tohoto rodu je známo jen málo [11].
Eimeria spp. může vést k závažným střevním onemocněním u kuřat, což způsobuje celosvětové ztráty drůbežářského průmyslu přibližně 3 miliardy USD ročně [16, 31]. Pochopení vztahu mezi Eimeria spp. a jejich hostitel je velmi zajímavý pro kontrolu kokcidiózy. Naše předchozí studie odhalila, že sekrece vápenatých iontů (Ca2t) a proteinu mikronememu 2 (EtMic 2) byla rozhodující pro únik eimerických parazitů [35, 36].
Mnoho nedávných studií se zaměřilo na indukovatelný výstup stimulovaný imunitními molekulami s cílem vyvinout strategie pro léčbu apikomplexových parazitů [12,27,37]. Například buněčná smrt indukovaná interferonem-y vede k časnému úniku tachyzoitů T. Gondi, což může narušit životní cyklus hostitelských buněk a podpořit eliminaci tohoto patogenu [26]. Nedávno jsme uvedli, že oxid dusnatý (NO) by mohl stimulovat rychlý odchod tachyzoitů T. gondii z infikovaných makrofágů (imunitní buňky) a fibroblastů lidské předkožky (neimunitní buňky)[19,34].
NO je produkován mnoha typy buněk, jako jsou dendritické, žírné, přirozené zabíječe a fagocytární buňky, v reakci na stimulaci cytokiny a hraje důležitou roli v imunologicky zprostředkované ochraně proti mnoha typům patogenů in vitro a na zvířecích modelech, včetně prvoků[10] ,17]. Během infekce prvoky, jako je Plasmodium spp. a Toxoplasma Gondi zvýšená produkce NO zprostředkovává ochranu hostitele buď přímo zabíjením parazitů, nebo omezením růstu parazitů [8]. Předchozí studie uváděly vyšší produkci NO během primární infekce E. tenella, takže NO působí jako antikokcidiální efektor [1]. Proto jsme se pokusili zjistit, zda by NO mohl stimulovat časný výstup sporozoitů E. tenella z hostitelských buněk in vitro, abychom poskytli více informací pro studium Eimeria spp. egress a předložila nové poznatky o odstraňování intracelulárních patogenů hostiteli.

Materiály a metody
Paraziti, kuřata a buněčné kultury
Kmen E. tenella M2e, transgenní kmen, který stabilně exprimuje zesílený žlutý fluorescenční protein (EYFP)[21] použitý v této studii, byl udržován množením v brojlerech Arber Acres bez kokcidiánů, které byly zakoupeny od společnosti Beijing Arbor Acres Poultry Breeding Co. , Ltd.; Peking, Čína. Všichni ptáci byli umístěni v izolátorech, aby se zabránilo kontaminaci jinými druhy Eimeria spp. Izolace, purifikace a sporulace oocyst byly prováděny podle zavedených protokolů [22]. Všechny pokusy na zvířatech byly prováděny v souladu s etickými postupy na zvířatech schválenými Výborem pro dobré životní podmínky zvířat a experimentální experimentální inspekci zvířat Čínské zemědělské univerzity (číslo schválení.20160921-2). Purifikace sporozoitů byla provedena tak, jak bylo popsáno dříve [35]. Čerstvě purifikované sporozoity byly suspendovány ve fyziologickém roztoku pufrovaném fosfátem (PBS) a počet parazitů byl spočítán pomocí destičky pro počítání krevních buněk. Primární buňky kuřecí ledviny (PCK) byly připraveny, jak bylo popsáno dříve [12] a naočkovány do 24-jamkových kultivačních destiček doplněných Dulbeccem modifikovaným Eagle médiem (DMEM) obsahujícím fetální bovinní sérum (10 procent, v/v), penicilin( 200 U/ml) a streptomycin (100 ug/ml). Hustota buněk byla upravena na 1 x 10 stupňů buněk/jamku.
Měření koncentrace NO
Koncentrace NO uvolněného SNP byla hodnocena měřením NO,/NO; poměr Griessovou reakcí za použití testovací soupravy NO (Applygen Tech Inc., Beijing, Čína), podle pokynů výrobce.
NO-indukovaný výstupní test
PCK byly kultivovány při 41 stupních a 5 procentech CO, přes noc, poté následovaly tři promytí PBS, aby se odstranily neadherentní buňky. Po 2 dnech byly PCK inkubovány se sporozoity EtM2e při multiplicitě infekce (MOIof 2.{6}}(poměr parazit/buňka 2:1) při 37 stupních po dobu 12 hodin. Neinvazivní sporozoity byly odstraněny promytím s PBS. Buňky byly poté inkubovány buď s různými koncentracemi (10, 20 a 40 mM) dihydrátu nitroferkyanidu sodného (I) (SNP; Sigma) nebo samotným nosičem DMEM po různé doby ošetření (10, 20 a 30 Po ošetření byli vyloučení parazité suspendováni v 500 ul DMEM a 10 ul suspenze bylo analyzováno průtokovou cytometrií (C6, Accuri Cytometers, Inc. Ann Arbor, MI, Spojené státy americké).
Video mikroskopie
PCK byly ošetřeny 40 mM SNP po 12 hodinách inkubace se sporozoity EtM2e při MOI 2,0. Progrese výstupu byla zaznamenána pomocí světelného mikroskopu (Carl Zeiss, Olympus).
Detekce vlivu na vývojové stádium parazitů
Před ošetřením 40 mM SNP po dobu 30 minut se sporozoiti nechali vyvinout v PCK po dobu 24 nebo 36 hodin, což je trofozoitové stadium tohoto parazita. Po ošetření byli vyloučení parazité suspendováni v 500 ul DMEM a 10 ul suspenze bylo analyzováno průtokovou cytometrií.
Stanovení životaschopnosti hostitelské buňky
PCK byly promyty po NO-indukovaném výstupu, invazi sporozoitů, ošetření SNP a v neošetřené skupině, v daném pořadí, a životaschopnost buněk byla měřena pomocí propidium jodidu (PI;eBioscience). Stručně, PCK v každé skupině byly promyty PBS a po ošetření jemně trypsinizovány a jednotlivé buňky byly obarveny PI podle pokynů výrobce. Procento životaschopných buněk bylo analyzováno průtokovou cytometrií.
Inhibiční test
Pro inhibiční testy byly k vyhodnocení účinku Ca2 plus na sporozoity použity intra Ca2 plus chelátor BAPTA-AM (Sigma, St. Louis, MO, Spojené státy americké) a fosfoinositid specifický inhibitor fosfolipázy C U-73122 (Sigma). výtok. V dalším experimentu byl cytochalasin D(CyoD; MerckDarmstadt. Německo) použit k blokování parazitické motility. Infikované PCK byly předem ošetřeny 10 uM BAPTA-AM. U-73122.nebo CytoD připravené v dimethylsulfoxidu (Sigma) po dobu 30 min. Poté byly buněčné kultury inkubovány s 40 mM SNP po dobu 30 minut. a počet uvolněných sporozoitů byl vyhodnocen jak je popsáno výše.
Virulence vyřazených parazitů
PCK byly inkubovány se sporozoity po dobu 12 hodin, poté následovalo ošetření 40 mM SNP po dobu 30 minut. Buněčné kultivační médium obsahující volné parazity po ošetření SNP bylo shromážděno a třikrát promyto PBS. a životaschopnost parazitů byla testována za použití 4% vyloučení trypanové modři. Vyloučené parazity byly spočítány pomocí destiček na počítání krevních buněk. Pro detekci virulence byly testovány reinvazivní a reprodukční schopnosti egresivních parazitů po ošetření 40 mM NO po dobu 30 minut. PCK byly inkubovány s uvolněnými parazity v
Virulence vyřazených parazitů
PCK byly inkubovány se sporozoity po dobu 12 hodin, poté následovalo ošetření 40 mM SNP po dobu 30 minut. Buněčné kultivační médium obsahující volné parazity po ošetření SNP bylo shromážděno a třikrát promyto PBS. a životaschopnost parazitů byla testována za použití 4% vyloučení trypanové modři. Vyloučené parazity byly spočítány pomocí destiček na počítání krevních buněk. Pro detekci virulence byly testovány reinvazivní a reprodukční schopnosti egresivních parazitů po ošetření 40 mM NO po dobu 30 minut. PCK byly inkubovány s uvolněnými parazity a byly použity jako kontrola. K vyhodnocení reprodukční schopnosti hostitele byly 2 × 10" čerstvě připravené sporozoity a stejné množství vyvržených parazitů naočkovány do 3-týdenních brojlerů AA kloakální cestou a všichni ptáci byli umístěni v izolátorech [13 Celková produkce oocyst na ptáka byla měřena pomocí komůrky pro počítání vajíček McMaster v 6-9 dnech po infekci [15].
Statistické analýzy
K analýze rozdílů mezi léčenou a kontrolní skupinou byl použit software SPSS 20.0 (SPSS Inc.). Všechny ostatní statistické analýzy byly provedeny pomocí softwaru GraphPad Prisma 5.01 (Graphpad Software). Data jsou vyjádřena jako průměr ± standardní chyba průměru (SEM). Experimentální skupiny byly porovnány pomocí jednocestné analýzy rozptylu (ANOVA).
Statistická významnost byla hodnocena na hladinách p < 0,05 (významné) a p<0.01 (highly="">
Výsledek
Exogenní NO stimuloval výstup sporOzoitů E. tenella
Před provedením výstupních testů jsme ověřili, zda lze koncentraci NO uvolněného z SNP udržet stabilní, když se rozpustí v DMEM do 30 minut pomocí Griessovy reakce (obr. 1A). Poté jsme inkubovali buněčné kultury infikované sporozoity s různými koncentracemi SNP po různé doby trvání, jak je popsáno výše. Počet volných sporozoitů se zvýšil, když byly infikované PCK inkubovány s SNP (obr. 1B). Také jsme sledovali proces úniku parazita pomocí videozáznamu (obr. 1C).

Vliv stádia vývoje parazitů na výstup stimulovaný NO
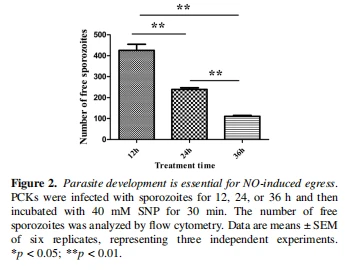
Zajímalo nás, zda výtok indukovaný NO může být ovlivněn vývojovými stádii tohoto parazita v PCK. Před ošetřením 40 mM SNP po dobu 30 minut jsme nechali sporozoity vyvinout se v hostitelských buňkách po dobu 24, respektive 36 hodin, což je stádium trofozoitů tohoto parazitního místa. Překvapivě jsme zjistili, že počet vyvržených parazitů se významně snížil s prodloužením doby vývoje parazita (obr. 2), což naznačuje, že vývojové stadium parazita je důležitým prvkem NO-indukovaného úniku.
Únik parazitů závislý na parazitárním Ca2 plus a mobilitě
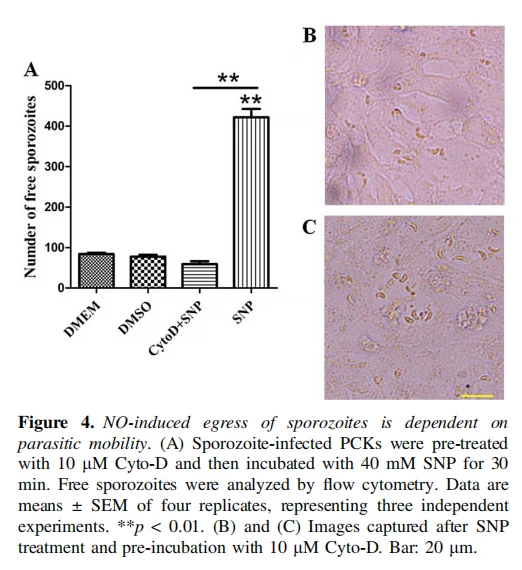
Předchozí studie ukázala, že intraparazitický Ca2 hrál zásadní roli během výstupu sporozoitů E. tenella [12, 34]. Provedli jsme experimenty ke stanovení významnosti Ca2t v NO-indukovaném úniku parazita. Jak je znázorněno na obrázcích 3A a 3B, výstup indukovaný NO byl blokován předběžnou léčbou jak BAPTA-AM, tak U-73122, což ukazuje na zásadní roli intraparazitárního Ca2 plus a že zdroj Ca2 plus v

endoplazmatického retikula (ER). Navíc předběžné ošetření pomocí Cyto-D k zablokování mobility parazita ukázalo podobné výsledky (obr. 4A a 4B), což ukazuje, že mobilita parazita je dalším důležitým faktorem pro únik sporozoitů.
Výstup parazita není spojen s poškozením hostitelské buňky
Aby se prozkoumala možnost, že NO-indukovaný výstup byl toxický pro hostitelské buňky, měřila se životaschopnost buněk pomocí PI barvení. Výsledky ukázaly, že procento PI buněk se zvýšilo po ošetření SNP a nebyl žádný rozdíl mezi neinfikovanými a infikovanými skupinami, což ukazuje, že inkubace SNP vedla k poškození buněk, ale ne k úniku parazita (obr. 5A a 5B).

Virulence parazita snížena po NO-indukovaném výstupu
Egressed parasites were collected and shown to remain viable by trypan blue exclusion (>85procentní životaschopnost). Poté jsme vyloučené parazity přidali do PCK nebo je inokulovali do 3-týdenních brojlerových kuřat AA jednotlivě kloakální cestou. Obě invazivní účinnost (str<0.01)(fig.6a)and productivity="" in="" chickens=""><0.01)(fig.6b)of the="" parasites="" after="" no-induced="" egress="" decreased="" dramatically="" compared="" to="" that="" of="" freshly="" prepared="">

Diskuse
V této studii jsme zjistili, že exogenní NO stimuloval časný odchod sporozoitů E. tenella z infikovaných PCK v procesu závislém na Ca2-. Výstup parazita nevedl k žádnému poškození hostitelských buněk a reinvazivní schopnost a virulence parazitů uniklých se významně snížila. Tyto výsledky společně naznačují nový model pro studium mechanismu úniku eimerického parazita a poskytují nový způsob, zprostředkovaný NO, ke snížení intracelulárních patogenů v hostitelských buňkách.
Egrese je důležitý proces, který umožňuje eimeriánským parazitům opustit hostitelské buňky a napadnout sousední buňky, aby zahájili nový intracelulární životní cyklus; výstup tedy hraje klíčovou roli v patogenezi v hostiteli. Naše předchozí zprávy se zaměřily na předběžné mechanistické studie úniku eimerského parazita [35,36]. V této studii byl zahrnut NO. Zjistili jsme, že NO může indukovat únik parazitů krátce po dokončení invaze a dlouho před výskytem výstupu zralého merozoitu, který narušil životní cyklus tohoto patogenu. V této studii nedošlo u infikovaných PCK k žádnému poškození během výstupu, což se liší od zpráv o nekróze hostitelské buňky v podobných studiích výstupu tachyzoitů T. Gondi [19, 20]. Jedním přijatelným vysvětlením tohoto rozdílu je, že sporozoiti se nereplikovali před provedením testu výstupu. Proto hostitelské buňky neosídlili více než dva parazité, což je hodnota mnohem nižší než u tachyzoitů uváděných v předchozích studiích [19, 32]. Dalším možným vysvětlením je, že na rozdíl od tachyzoitů T. gondi nebo eimerických merozoitů postrádá parazit specifický protein, který by zničil hostitelské buňky pro přirozený únik ve stadiu sporozoitů. Nenašli jsme však žádné přímé důkazy, které by tyto hypotézy podpořily. Naše výsledky ukázaly signifikantní snížení virulence egresních sporozoitů, na rozdíl od tachyzoitů T. Gondi, kteří si po výstupu udržují normální virulenci [27, 37]. Předpokládáme, že se parazit vyvíjel ze sporozoitů na schizonty, když byl proveden test výstupu, a že genová exprese regulující proteiny specifické pro stádium parazita se mohla změnit. Na rozdíl od eimerských sporozoitů podléhají tachyzoiti T. Gondi binárnímu štěpení v hostitelských buňkách, čímž si udržují normální virulenci. Proto jsme se domnívali, že pokud by existovaly určité stimulátory, které by mohly vyvolat únik Eimeria spp. po invazi pak egresní paraziti nemohli udržet svou normální virulenci in vivo, jako v experimentech in vitro. Tento imunitou zprostředkovaný výstup může narušit životní cyklus parazita a případně podpořit odstranění parazita imunitními buňkami.
Nedávné studie odhalily zásadní roli Ca2 při úniku apikomplexních patogenů [7,18]. Sekundární messenger inositol 1,4,5-trifosfát (IP3) stimuluje uvolňování Ca2 z ER do cytoplazmy prostřednictvím vazby na IP3 receptor [3]. Ukázalo se, že IP3 indukuje uvolňování Ca2 z intracelulárních zásob jak u T. gondi [24], tak u Plasmodium falciparum [2]; o genomové přítomnosti IP3 receptorů u apikomplexních parazitů je však známo jen málo [4,23]. V této studii byly intracelulární dráhy Ca2 a IP3 blokovány pomocí BAPTA-AM a U-73122, aby se otestovalo, zda NO-indukovaný výstup sporozoitů je závislý na Ca plus a aby se určil zdroj Ca2t. Naše výsledky ukázaly, že výstup byl omezen jak BAPTA-AM, tak U-73122, což ukazuje, že intracelulární Cap hraje zásadní roli při výstupu sporozoitu E. tenella. Ačkoli jsme prokázali, že intracelulární Ca2 plus je životně důležitý pro únik parazita, dráha a funkce příbuzných proteinů vyžadují další studium pomocí pokročilejších a přesnějších metod.
V souhrnu výsledky této studie naznačují, že NO může stimulovat časný únik sporozoitů E. tenella z infikovaných PCK a poskytnout předběžné informace o mechanismu tohoto úniku. V budoucích studiích se budeme snažit identifikovat další imunitní molekuly, které indukují časný odchod sporozoitů E. tenella, a zkoumat, zda NO může indukovat časný odchod eimerických parazitů z epiteliálních buněk kuřecího střeva in vitro a in vivo.