Zachovaná dlouhá nekódující RNA, GAPLINC, moduluje imunitní odpověď během endotoxického šoku
Jun 10, 2022
Pro více informací prosím kontaktujtedavid.wan@wecistanche.com
Význam
Zánět byl z velké části studován v kontextu genů kódujících proteiny. Nedávné studie odhalily IncRNA jako důležité regulátory imunity. Funkční charakterizace těchto genů zůstává aktivní oblastí výzkumu. V této studii identifikujeme GAPLINC jako funkčně konzervovanýIncRNAmezi lidmi a myšmi. Deplece GAPLINC vede ke zvýšené expresi genů imunitní odpovědi, které jsou příméNF-kBcíle. Překvapivě jsme pozorovali, že Gaplinc knockout myši vykazují odolnost vůči LPS-indukovanému endotoxickému šoku a zjistili jsme, že bazální exprese zánětlivých genů brání tvorbě teček, aby se chránila před multiorgánovým selháním a smrtí. Tato zjištění mají důsledky v léčbě sepse, ve které mohou nové terapie zaměřené na IncRNA přispět cennými informacemi k pochopení zánětu a zlepšení výsledků pacientů.

Kliknutím sem se dozvíte více o Cistanche
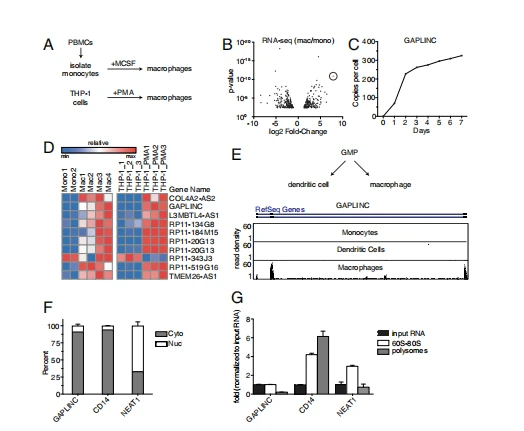
FG 1. identifikace a charakterizace makrofágově specifickýchIncRNA GAPLINC. (A) A schematic for macrophage differentiation in vitro using primary human celeb or immortalized THP-1 cells, Isolated monocytes from human P8MCs are differentiated into macrophages using recombinant magnon stimulating factor. PHP-1 cells are differentiated into macrophages by treatment with PMA (100 nM). (8)RNA-Seg analysis on macrophages differentiated from monocytes isolated from human PBMCs (n = 4 donors). Results are represented in a volcano plot. GAPUNC (shown in red) is the most up-regulated and RNA (>1,000-fok). (C) Analýza RNA-SeqGAPLNCexprese během diferenciace monocytů na makrofágy pro uvedené časové body. Exprese GAPLINC je reprezentována jako kopie na buňku (FPKM. (D) Tepelná mapa představuje genovou expresi z vlastního panelu Nanostring, který ukazuje 10 nejlepších odlišně exprimovaných InciNA srovnávající monocyty s makrofágy v primární lidské buňky a buňky THP-1. Údaje z Nanotringu byly provedeny v biologických duplikátech (E) Schéma pro progenitorové buňky granulocytů a monocytů, které dává vzniknout dvěma odlišným populacím: 1) MDDC a 2) MDM. Stopa prohlížeče genomu UCSC zobrazuje čtení RNA-Seq z monocytů, makrofágů a dendritických buněk naGAPLINCmísto. () qPCR analýza RNA purifikovaných z jaderných (bílých) a cytoplazmatických (šedých) frakcí v MDM (G qPCR analýza Russe izolovaného z různých polysomálních frakcí MDM systémů (10 až 50 procent gradient sacharózy, SW41, 40 K ot./min., pro ~ 1,5 h).
Nedávné studie identifikovaly tisíce dlouhých nekódujících RNA (ncRNA) v savčích genomech, které regulují genovou expresi v různých biologických procesech. Ačkoli byly IncRNA identifikovány v různých imunitních buňkách a podílejí se na imunitní odpovědi, biologická funkce a mechanismus většiny zůstávají neprozkoumané, zejména u sepse. Zde identifikujeme roli hdRNA – prediktivní dlouhé intergenové nekódující RNA (GAPLINC) pro adenokarcinom žaludku – dříve charakterizované svou úlohou u rakoviny, nyní v kontextu vrozené imunity, makrofágů a endotoxického šoku vyvolaného LPS. Analýza transkriptomu makrofágů z lidí a myší ukazuje, že GAPLINC je konzervovaná IndRNA, která je vysoce exprimována po diferenciaci makrofágů. Po zánětlivé aktivaci je GAPLINC rychle regulován směrem dolů. Makrofágy zbavené GAPLINC vykazují zvýšenou expresi zánětlivých genů na začátku, zatímco nadměrná exprese GAPLINC tuto odpověď potlačuje. V souladu s buňkami ochuzenými o GAPLINC vykazují knockoutované myši Gaplinc zvýšené bazální hladiny zánětlivých genů a vykazují odolnost vůčiindukované LPSendotoxický šok. Mechanicky je přežití spojeno se zvýšenými hladinami jaderného NF-xB u Gaplinc knockout myší, které řídí bazální expresi cílových genů, které se typicky aktivují až po zánětlivé stimulaci. Ukázali jsme, že tato aktivace genů imunitní odpovědi před výzvou LPS vede k tvorbě krevních sraženin v odlehlých oblastech, které chrání Gaplinc knockout myši před multiorgánovým selháním a smrtí. Společně naše výsledky identifikují dříve neznámou funkci GAPLINC jako negativního regulátoru zánětu a odhalit klíčovou roli této lncRNA při modulaci endotoxického šoku.
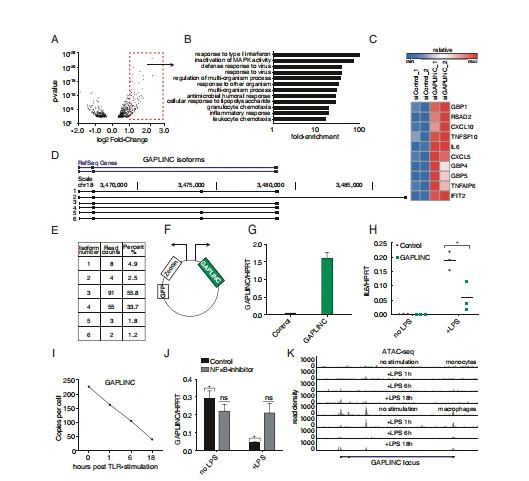

Obr.2. GAPLINC je negativní regulátor zánětu a je závislý na signalizaci Nf-sB. Monocyty izolované z lidských PBMC a diferencované na makrofágy byly transfekovány kontrolní nebo GAPLINC siRNA. (A)RNA-sekvenační analýzana GAPLINC kd nebo kontrolní siRNA MDM. RNA-Seq byla provedena v biologických duplikátech. Výsledky jsou znázorněny v grafu sopky. Významně up-regulované geny s násobnou změnou větší nebo rovnou 2 jsou označeny červeně. (6) GO-Term analýza na významně up-regulovaných genech. (C)Tepelná mapa představuje genovou expresi špičkových genů souvisejících s imunitou up-regulovaných na GAPLINC kd. Data z RNA-Seq byla provedena v biologických duplikátech. Izoformy (D)GAPLINC v MDM byly stanoveny sekvenováním R2C2 na bázi Nanopore. Data ze sekvenování Nanopore byla provedena v biologických duplikátech (hrubá data jsou dostupná na SRAunder Bloproject PRINA639136). (E) Tabulka představující počty přečtených a procenta každé izoformy GAPLINC. (F)Obousměrný vektor exprimující GFP-Zetocin na jedné straně a GAPLINC na druhé straně. (G a H) qPCR analýza exprese GAPLINC v buňkách THP-1 exprimujících ektopický GAPLINC nebo kontrolu prázdného vektoru. Hladiny IL6 byly kvantifikovány po stimulaci LPS (200 nal ml) po dobu 6 hodin; data byla shromážděna ze tří nezávislých experimentů.*P<0.05. ()="" rna-seq="" analysis="" of="" mdms="" stimulated="" with="" lps(200="" ng/ml)="" for="" the="" indicated="" time="" points.="" data="" from="" rna-seq="" was="" performed="" in="" biological="" duplicates.="" galplinc="" expression="" is="" represented="" as="" copies="" per="" cell="">FPKM), U qPCR analýza GAPLINC u MDM (n=3)předem ošetřených DMSO nebo BAY-7082(10μM), následovaná LPS stimulací (200 ngmL) po 6 ht data byla shromážděna ze tří nezávislých experimentů. *P<0.05. (k)atacseq="" analysis="" of="" monocytes="" and="" macrophages,="" untreated="" and="" treated="" with="" lps="" (200="" ng/ml)="" for="" 1,6,="" and="" 18h.ucsc="" browser="" track="" displays="" atac-seq="" reads="" at="" the="" gaplinc="">
sepse je život ohrožující onemocnění způsobené přehnanou reakcí těla na přítomnost infekce, která může rychle vést k multiorgánovému selhání a smrti. Imunitní systém je nezbytný při poskytování ochrany před infekcí; nekontrolovaná aktivace však může mít pro hostitele vážné následky. Podle Centra pro kontrolu a prevenci nemocí má jeden ze tří pacientů, kteří zemřou v nemocnici, sepsi (1). a přesto stále nerozumíme základním molekulárním mechanismům, které vedou k smrtelnosti. Klinické možnosti léčby sepse jsou omezeny na podávání tekutin, antibiotik a podpůrné péče a po celá desetiletí zůstaly v podstatě nezměněny. Přestože včasná diagnostika a rychlá léčba zlepšily výsledky sepse (2), existuje zásadní potřeba vyvinout nové terapie. Ačkoli byly provedeny studie genové exprese za účelem prozkoumání potenciálních terapeutických cílů pro sepsi, tyto cíle zůstávají do značné míry necharakterizované(3). Identifikovali jsme dlouhou nekódující RNA (lncRNA) s rolemi při kontrole imunitní reakce a endotoxického šoku, která poskytuje cesty pro vývoj nových léků k zacílení sepse.
Výsledek

Obr. 3. GAPLINC je konzervovaný u myší a reguluje odpověď na endotoxický šok. (4) GAPLINC je konzervován v synteny. GAPLINC se nachází na Chr18 u lidí a na Chr17 u myší, mezi geny kódujícími protein Dlgap1 a Gift. Dlgapil není vyjádřen vmakrofágy. (B)MCA ukazuje distribuci hladin Gaplicu v různých typech imunitních buněk (BM). (C) qPCR analýza exprese Gaplinc v B buňkách a BMDM; tato data (průměr ± SD) jsou reprezentativní pro tři nezávislé experimenty, (D) qPCR analýza exprese Gaping v BMDME stimulované LPS (200 na/ml) po dobu 6 hodin; tato data (průměr ± SD) jsou reprezentativní pro tři nezávislé experimenty. (E) Schéma lokusu Gaplinc před a po deleci zprostředkované CRISPRCas9. Přerušované čáry označují přibližnou oblast delece. Gel představuje PCR amplifikaci genomických dat. Délky amplikonů jsou porovnány pro myši WT a Gaping KO, (F) qPCR analýza exprese Gaplinc ve WT a Gaplinc-KO BMDM s použitím kombinace primerů pro detekci Exon1, Exon2 a exon-spaning regionů Gaplincova transkriptu; tato data (průměr ± SD) jsou reprezentativní pro tři nezávislé experimenty. Analýza (G)RNA-Seq v BMDM z myší WT a Gaplinc KO (n =3). Výsledky jsou znázorněny v grafu sopky. Výrazně up-regulované geny s násobnou změnou větší nebo rovnou 2 jsou zobrazeny červeně. (H) GO-Term analýza na významně up-regulovaných genech. (I a J) Údaje o přežití WT a Gaplinc KO myší jsou uvedeny v reakci na E. coli LPS výzvu (5 mg/kg/myš) (n =6 až 10). Statistický test rozdílů byl počítán pomocí log-rank testu (Mantel-Cox). "…P< 0.001.="" changes="" in="" body="" temperature="" of="" wt="" and="" gapline="" ko="" mice="" were="" recorded="" at="" the="" indicated="" time="" points.="" (k)="" survival="" data="" of="" wt="" and="" gaplinc="" ko="" mice="" are="" shown="" in="" response="" to="" the="" e.="" coli="" lps="" challenge(20="" mg/kg/mice)(n="10)." the="" statistical="" test="" of="" differences="" was="" calculated="" using="" the=""><>
Protože exprese lncRNA může regulovat imunitní odpověď ovlivněním diferenciace imunitních buněk a jejich příslušných funkcí (4-7), chtěli jsme prozkoumat roli ncRNA v makrofázích. Makrofágy jsou důležité vrozené imunitní buňky, které mohou být odvozeny z monocytů a jsou kritické pro rozpoznání patogenů pomocí Toll-like receptorů (TLR). Po aktivaci. TLR iniciují komplexní signální dráhy, které aktivují klíčové transkripční faktory, jako je NF-kB, což vede k transkripci stovek genů imunitní odpovědi (8).
Abychom identifikovali IncRNA zapojené do diferenciace a funkce makrofágů, provedli jsme sekvenování RNA (RNA-Seq) v lidských primárních makrofázích odvozených od monocytů (MDM) a monocytární buněčné linii THP-1s (obr. 1A a příloha SI, obr. S1). Identifikovali jsme prediktivní dlouhou intergenickou nekódující RNA (GAPLINC) adenokarcinomu žaludku jako nejvíce up-regulovanou IncRNA během diferenciace monocytů na makrofágy (obr. 1B). Hladiny GAPLINC byly detekovatelné v den 1 a zvýšily se na ~300 kopií na buňku (obr. 1C). Pomocí technologie profilování RNA (nCounter, Nanostring) jsme potvrdili GAPLINC jako jednu z 10 nejlepších mRNA exprimovaných v diferencovaných primárních MDM a THP{10}} (obr. 1D). Také jsme potvrdili, že GAPLINC je vysoce exprimován v MDM, ale není exprimován v blízce příbuzných dendritických buňkách odvozených od monocytů (MDDC) (obr. 1E), což naznačuje, že exprese GAPLINC je specifická pro buněčný typ. Provedením experimentu s buněčnou frakcionací a měřením hladin GAPLINC v cytoplazmatických a jaderných kompartmentech makrofágů pomocí qPCR jsme zjistili, že GAPLINC je převážně lokalizován v cytosolu ve srovnání s CD14, cytoplazmatickou mRNA, a NEAT1, jadernou IncRNA (obr. 1F). To je v souladu s nálezy v rakovinných buňkách, ve kterých je GAPLINC lokalizován hlavně v cytoplazmě(9). Abychom zajistili, že GAPLINC je nekódující, provedli jsme polysomální profilování, metodu používanou k analýze, zda je gen aktivně přeložen do proteinu. Na rozdíl od CD14 nebyly NEATI ani GAPLINC nalezeny ve frakci s vysokým obsahem polysomů, což naznačuje, že GAPLINC není překládán (obr. 1G),
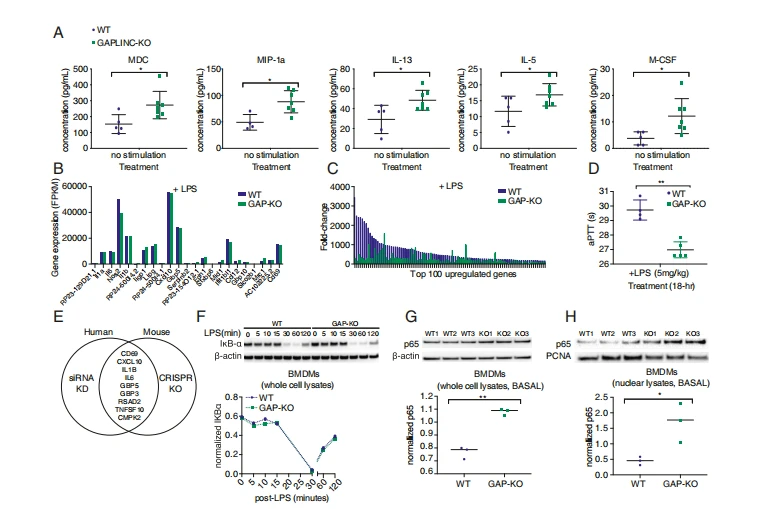

Obr.4. Gaplnc KO up-reguluje IRG a vykazuje zvýšenou hladinu p65 v nahé na začátku. (A) Hladiny cytokinů v séru myší WT a Gaplinc KO na bazální hodnotě.n=4 až 7,*P<0.05.(b and="" c)rna-seg="" analysis="" in="" bmdms="" from="" wtand="" gaplinx="" ko="" mice="" stimulated="" with="" lps="" (200naiml)for6h="" (n="3)." the23aenes="" up-regulated="" in="" gap/inc="" ko-only="" condition="" are="" compared="" to="" wt="" and="" gapfinc-ko="" bmdms="" stimulated="" with="" lps.="" the="" resulting="" fold="" change="" upon="" lps="" stimulation="" is="" shown="" for="" wt="" and="" gapinc-ko="" bmdms.genes="" are="" ranked="" according="" to="" their="" fold="" change="" in="" wt.="" (d)="" coagulation="" parameters="" assessed="" for="" wt="" and="" gapinc="" ko="" mice="" challenged="" ip.with="" e.="" coils(5mg/kg/mice)(n="4" to="" 5).plasma="" was="" collected="" 18h="" post-lpsiniection.="" aptt="" was="" measured.="" (e)genes="" upregulated="" non="" sirna="" kd="" of="" human="" gaplnc="" in="" mdms="" are="" compared="" to="" genes="" up-regulated="" upon="" crsprcas9="" knockout="" of="" mouse="" gaplincin="" bmdms="" (fold="" change="" ≥1.5).="" up-regulated="" genes="" overlapping="" in="" both="" humans="" and="" mice="" are="" shown="" in="" the="" middle.="" (f)="" western="" blot="" of="" kb-gin="" wt="" and="" gaplinc-ko="" bmdms="" at="" the="" indicated="" time="" points="" following="" stimulation="" with="" lps="" (200="" ngml);="" these="" data="" are="" representative="" of="" three="" independent="" experiments,(g)="" western="" blot="" of="" p65="" in="" wt="" and="" gaplinc-ko="" bmdms="" (n="3)" at=""><0.01. (h="" western="" blot="" of="" p65="" in="" the="" nuclear="" fraction="" of="" wt="" and="" gaplinc-ko="" bmdms="" (n="">
Dále jsme zkoumali účinek umlčování GAPLINC na diferenciaci makrofágů. Jak se hladiny GAPLINC během diferenciace zvyšovaly, předpokládali jsme, že knock-down GAPLINC (KD) ovlivní geny zapojené do diferenciace. Pomocí spojené malé interferující RNA (siRNA) jsme dosáhli ~ 55 až 65 procent kd GAPLINC v primárních MDM (příloha SI, obr. S2). Provedli jsme RNA-Seq a identifikovali jsme řadu genů, které byly dysregulovány po GAPLINC kd (obr. 24). Nejlepší zásahy jsme potvrdili pomocí Nanostringu (příloha SI, obr. S3). Analýza obohacení genové ontologie (GO) ukázala, že geny imunitní odpovědi byly významně nadměrně zastoupeny v genech up-regulovaných na GAPLINC kd a nikoli v genech zapojených do diferenciace makrofágů, na rozdíl od naší původní hypotézy. (Obr. 2B). Mezi odlišně exprimované geny v buňkách GAPLINC-KD patří prozánětlivé cytokiny a chemokiny (IL6, CXCL10 a TNFSF10), geny stimulované IFN (ISG) (IFIT2 a RSAD2) a proteiny vázající guanylát (GBP) (GBP3 a GBP5). (obr. 2C a příloha SI. obr. S4). Pro ověření, že diferenciace makrofágů nebyla ovlivněna GAPLINC kd. hladiny CD11B.CD16 a CD14 byly měřeny u kontrolních makrofágů a makrofágů ošetřených signalizací a bylo zjištěno, že jsou podobné (příloha SI, obr. S5). Dále jsme použili další přístup kdCRISPRinhibice (CRISPRi) k cílení na místo začátku transkripce pomocí GAPLINPoužití tří různých vodících RNA (gRNA) v buňkách THP-1 stimulovaných forbol 12-myristát 13-acetátem (PMA). Dosáhli jsme přes 80 procent kd GAPLINCa opět pozorujeme zvýšenou expresi prozánětlivého cytokinu IL6, když je GAPLINC sražen na základní linii (příloha SI, obr. S6 A a B). Je zajímavé, že po aktivaci lipopolysacharidu (LPS) byly hladiny IL6 podobné v kontrolních buňkách oproti GAPLINC kd THP-1 buňkám (SIAppendix, obr. S6C). Protože se základní hladiny liší, celková násobná indukce IL6 je snížena, když je GAPLINC odstraněn. (Příloha S7, obr. S6D).
Protože GAPLINC kd vedl k up-regulaci genů imunitní odpovědi, vytvořili jsme buněčnou linii THP-1 nadměrně exprimující GAPLINC, abychom určili, zda zprostředkovává opačný účinek. Použití dlouhých sekvenačních dat. identifikovali jsme dominantní izoformy GAPLINC exprimované v MDM (obr. 2D). Nejhojnější izoforma, která odpovídá anotaci genu referenční sekvence (RefSeq), byla začleněna do našeho konstruktu (obr. 2E). Použili jsme lentivirový vektor obsahující obousměrný promotor k paralelnímu řízení zeleného fluorescenčního proteinu (GFP)/zeocinu a GAPLINC (obr. 2F). Pomocí qPCR jsme potvrdili, že GAPLINC byl stabilně exprimován v THP-1s ve srovnání s kontrolou (obr. 2G). Nadměrná exprese GAPLINC redukovala IL6 na úrovni RNA ve srovnání s kontrolou po stimulaci LPS, složkou gramnegativních bakterií (obr. 2H). Tato pozorování naznačují, že GAPLINC působí jako negativní regulátor zánětlivé reakce.
Dále jsme zkoumali hladiny GAPLINC u primárních MDM v reakci na zánět. Po stimulaci LPS jsme zjistili, že GAPLINC byl rychle regulován směrem dolů (obr. 2I). Kromě toho pomocí qPCR ukazujeme, že GAPLINC je také down-regulován po aktivaci různými látkamiTLRligandy (příloha SI, obr. S7A). Byla potvrzena indukce pozitivních kontrolních zánětlivých genů TNF-a, IL6 a CCL5 (příloha SI, obr. S7B). Tato data naznačují, že exprese GAPLINC musí být po stimulaci snížena, aby došlo k optimální indukci zánětlivého genu. Pro vyhodnocení role NF-kB při kontrole exprese GAPLINC byly MDM předem ošetřeny dimethylsulfoxidem (DMSO) nebo BAY11-7082, inhibitorem NF-B,
následovala stimulace LPS po dobu 6 hodin. U MDM léčených BAY11-7082- byla down-regulace GAPLINC narušena ve srovnání s kontrolou (obr. 2/). což naznačuje, že regulace GAPLINC je závislá na signalizaci NF-KB. Indukce pozitivních kontrolních zánětlivých genů TNF- a IL6 po stimulaci LPS byla potvrzena (příloha SI, obr. S7C). Abychom pochopili, jak je GAPLINC regulován, použili jsme test pro chromatin přístupný transposáze pomocí sekvenování (ATAC-seq) v MDM. posoudit dostupnost chromatinu lokusu GAPLINC. Zjistili jsme, že GAPLINC je aktivně transkribován v klidových makrofázích, ale těsně uzavřen po stimulaci LPS (obr. 2K), což naznačuje, že GAPLINC je regulován na úrovni transkripce.
Prozkoumat zachování GAPLINC mezi lidmi a myšmi. snažili jsme se identifikovat syntenické lokusy, ve kterých jsou geny pozičně konzervovány mezi stejnými dvěma geny kódujícími protein. následuje posouzení funkční konzervace. Zde ukazujeme, že Gaplinc je pozičně konzervovaný, lokalizuje transkript mezi geny Dlgap1 a TgifI (obr. 3A). K potvrzení specifičnosti buněčného typu jsme použili Atlas myších buněk (MCA).
(10) k posouzení hladin transkriptu v imunitních buňkách v kostní dřeni (BM) a zjistili, že je nejvyšší exprimován v makrofázích, s nižšími hladinami exprese v progenitorech neutrofilů (obr. 3B). Dále, abychom určili, zda byly expresní vzory zachovány během diferenciace makrofágů u lidí i u myší, provedli jsme RNA-Seq porovnáním BM buněk s makrofágy odvozenými z kostní dřeně (BMDM), dokončili de novo sestavení transkriptu a zjistili jsme, že hladiny Gaplicu u myší se po diferenciaci zvýšily. (Příloha SI, obr. S8A). Ověřili jsme to pomocí qPCR, srovnáním hladin Gaplicu v buňkách BM s BMDM (obr. 3C). Srovnatelné s lidským GAPLINC. myší Gaplinc je rychle down-regulován u LPS-stimulovaných BMDM (obr. 3D). Jako kontrola jsme potvrdili indukci zánětlivých genů The-a a I6 (příloha SI, obr. S8B). Myší Gaplinc je také rychle down-regulován po aktivaci různými TLR ligandy. Byla také potvrzena indukce pozitivních kontrolních genů 116 a Ccl5 (příloha SI, obr. S8C).
Pomocí CRISPR jsme vytvořili Gaplinc knockout (KO) myš, ve které byl odstraněn Exon I a většina prvního intronu (obr. 3E). Chaplin KO myši se chovaly normálně a nevykazovaly žádné zjevné vývojové vady. Delece Gapline byla potvrzena PCR amplifikací genomové DNA u myší divokého typu (WT) a myší Gaplinc KO, s velikostí amplikonu ~1 300 bp pro myši WT a ~ 500 bp pro myši Gaplinc KO (obr. 3E), Úplná strategie genotypování pro potvrzení WT a Gaplinc KO je zvýrazněno v příloze SI, obr. S9. Také jsme potvrdili deficit Gaplicu u BMDM pomocí qPCR (obr. 3F). Abychom vyhodnotili, zda deficit Gaplicu ovlivnil diferenciaci, obarvili jsme WT a Gaplinc-KO BMDM pro CD11B a F4/80; vzory barvení byly podobné, což naznačuje normální diferenciaci makrofágů (příloha SI, obr. S104). Abychom vyhodnotili, zda Gaplinc KO narušil funkci makrofágů, porovnali jsme aktivitu fagocytózy u WT a Gaplinc-KO BMDM a nenašli jsme žádné rozdíly (příloha SI, obr. S10B).
Pro posouzení globálního dopadu deficitu Gaplinc v makrofázích jsme provedli RNA-Seq na WT a Gaplinc-KO BMDM; obě byly neošetřeny a LPS stimulována po dobu 6 hodin. U Gaplinc-KO BMDM byla exprese 23 genů (zobrazeno červeně, obr. 3G) na počátku významně up-regulována. Tyto geny zahrnují prozánětlivé cytokiny a chemokiny (Il6.l1-a. I1-8 a Cxd10), ISG (Ifitlbl1), členy rodiny GBP (Gbp5 a Gbp0) a markery buněčného povrchu specifické pro aktivované makrofágy (Cd69). GO analýza potvrdila, že geny zapojené do imunitní odpovědi jsou nadměrně zastoupeny v Gaplinc-KO BMDM ve výchozím stavu (obr. 3H). Tyto geny jsou typicky up-regulovány po stimulaci LPS (příloha SI, obr. S11). Podobně jako údaje získané z našich studií na lidech, tato data tomu nasvědčujíGAPLINCje funkčně konzervován napříč druhy, aby v podstatě kontroloval expresi genů zánětlivé odpovědi (IRG). Mezi WT a Gaplinc-KO BMDM (Dataset S1) nebyl žádný velký rozdíl v genech, které byly up-regulovány po stimulaci LPS.
Četné studie prokázaly schopnost IncRNA regulovat transkripci sousedních genů(11). Jako takový jsme prozkoumali potenciální cis-regulační role pro Gaplinc, protože jeho sousední gen, Tgif1, se již dříve podílel na modulaci aktivace makrofágů (12). Pomocí našich dat RNA-Seq jsme potvrdili, že u GaplincKO BMDM nebyla exprese Tgifl vzhledem k T buňkám ovlivněna (SIAppendir.Fig.S124). Dále jsme pomocí qPCR potvrdili, že Tgifl byl v Gaplinc-KO BMDMs nezměněn (příloha SI, obr. S12B). Dále jsme zkoumali možnost, že narušení lokusu Gaplinc by mohlo odstranit důležitý regulační prvek, jako je zesilovač. Použili jsme ATAC-seq data z WT BMDM k posouzení transkripčně aktivních oblastí v lokusu Gaplinc (13). Neidentifikovali jsme signály v oblasti delece Gaplinc, pouze ty, které odpovídají promotoru Gaplinc (příloha SI, obr. S13). Souhrnně tato data naznačují, že up-regulace IRG při deficitu Gaplicu není způsobena účinky na sousední geny nebo odstraněním regulačního prvku.
Protože Gaplinc KO v BMDM up-reguluje expresi IRG za bazálních podmínek, chtěli jsme dále vyzvat zvířata Gaplinc KO in vivo, aby pozorovali rozdíly v reakci hostitele. Použili jsme model "endotoxického šoku". ve kterém byl Escherichia coli LPS intraperitoneálně (ip) injikován do WT a Gaplinc KO myší pro měření rozdílů v přežití. V dávce 5 mg/kg/myš. Myši WT vykazovaly 0 procenta přežití po 2 dnech (obr. 30. Nicméně 100 procent myší Gaplinc KO přežilo, což znamená, že myši Gaplinc KO mají odolnost vůči endotoxickému šoku vyvolanému LPS (obr. 31). jsou pozorovány významné teplotní rozdíly mezi WT a myšmi s deficitem Gaplinc (obr. 3). I při použití mnohem vyšší dávky LPS 20 mg/kg vykazují myši s deficitem Gqplinc významnou výhodu v přežití (obr. 3K). Tato data ukazují, že Gaplinc hraje důležitou roli při regulaci imunitní odpovědi in vivo.
Z našich studií na lidech víme, že GAPLINC může regulovat imunitní geny na začátku. I když neexistuje žádný rozdíl v expresi cytokinů po zánětlivé aktivaci, existuje rozdíl ve velikosti odpovědi, protože základní hladiny se liší. Proto, abychom lépe porozuměli těmto rozdílům v přežití in vivo, hodnotili jsme změny v expresi cytokinů na začátku. Použili jsme multiplexní cytokinové pole k současnému měření biomarkerů spojených s imunitní odpovědí, sepsí a rakovinou. Na začátku klíčové imunitní geny včetně MDC. MIP-1a.IL-13. IL-5. a M-CSF byl významně zvýšený v séru Gqplinc KO myší ve srovnání s WT (obr. 44). Tyto cytokiny se podílejí na získávání buněk: pomocí průtokové cytometrie jsme však potvrdili, že procento neutrofilů, T buněk, B buněk, eozinofilů, monocytů a makrofágů bylo srovnatelné mezi WT a Gaplinc KOmice na začátku (příloha SI, obr. S14). . Je zajímavé, že tato procenta byla také srovnatelná s post-LPS provokačními dávkami v časových bodech 6 h a 18 h (příloha SI, obr. S15 a S16). Kromě toho sérum od myší WT a Gaplinc KO testované na klinické rysy sepse, včetně laktátu a C-reaktivního proteinu (CRP) (příloha S7, obr. S17), nevykazovalo žádné rozdíly
Vzhledem k tomu, že zvýšené hladiny MDC nebo IL-13(obr.44) byly dříve charakterizovány tím, že hrají ochrannou roli proti endotoxickému šoku prostřednictvím modulace prozánětlivých cytokinů (14,15), dále jsme zkoumali rozdíly v hladinách prozánětlivých cytokinů včetně l6, Il1-, l1- a Cxcl10 po zánětlivé aktivaci. Zatímco hladiny WT a Gaplinc KO jsou stejné jak na úrovni transkriptu (obr. 4B), tak na úrovni proteinu (příloha SI, obr. S18A-C), velikost změny je mnohem nižší (obr. 4C), což naznačuje, že tento snížený násobek změna může hrát roli v prevenci citlivosti myší Gaplinc KO k LPS. indukovaný endotoxický šok.
Spolu s nekontrolovatelnou produkcí cytokinů. dalším klinickým aspektem endotoxického šoku, který může vést k úmrtí, je tvorba krevních sraženin v menších cévách, což vede k multiorgánovému selhání(16.17). Abychom to vyřešili, analyzovali jsme sérum myší ošetřených ip. LPS, abychom vyhodnotili rozdíly v koagulaci. Pomocí testu aktivovaného částečného tromboplastinového času (a), který měří čas do vytvoření sraženiny, jsme zjistili, že myši WT vykazují významně prodlouženou dobu ve srovnání s myšmi Gaplinc KO po expozici LPS (obr. 4D). Prodloužené časy aPTT naznačují, že myši WT již prošly koagulací a vyčerpáním klíčových koagulačních faktorů, takže v době testování, zahájení srážení a měření se doba do tvorby sraženiny prodloužila. Data naznačují, že rozdíly v přežití po expozici LPS jsou způsobeny tím, že myši WT podstupují zvýšenou srážlivost, což vede k eventuálnímu selhání orgánů a smrti.
Dále jsme se pokusili mechanicky pochopit, jak Gaplinc tento efekt zprostředkovává. Nejprve jsme potvrdili jeho lokalizaci a analyzovali hladiny Gaplicu v cytoplazmatickém i jaderném kompartmentu BMDM pomocí qPCR. Podobně jako lidský GAPLINC. myší Gaplinc byl převážně cytoplazmatický (příloha ST, obr. S19). Dále jsme provedli modifikovanou komplexní identifikaci RNA-vazebných proteinů (ChIRP), spojenou s hmotnostní spektrometrií a sekvenováním malých RNA, protože již dříve bylo prokázáno, že GAPLINC interaguje s mikro RNA(18). Nepozorovali jsme interakce s dříve identifikovanými cíli (příloha SI, obr. S20).
Protože jsme nemohli identifikovat přímého vazebného partnera, zaměřili jsme se na konzervovanou funkci mezi lidmi a myšmi, konkrétně na konzervované geny ovlivněné v našich studiích lidského GAPLINC kd a myší Gaplinc KO, z nichž většinu tvoří NF-kB regulátory (obr. 4E ). Nejhojnější formou NF-KB aktivovanou LPS je heterodimer p65:p50 a sedm z devíti konzervovaných genů jsou přímé cíle p65(19). Použili jsme nativní RNA imunoprecipitaci (RIP) a ukázali jsme, že neexistuje žádná přímá interakce mezi Gaplicem a p65 (příloha S7, obr. S21). V klasické signální dráze NF-kB jsou podjednotky p6:p50 umístěny v cytosolu a navázány na inhibiční I-kB- v klidových buňkách. Po aktivaci je I-KB- degradován, což umožňuje p65:p50 translokovat se do jádra a aktivovat cílové geny (20). U WT a Gaplinc-KO BMDM jsme měřili degradaci I-kB- pomocí Western blotu a nenašli jsme žádné rozdíly (obr. 4F). Dále jsme porovnávali celkové hladiny p65 v BMDM. V našich datech RNA-Seg jsou hladiny transkriptu p65 (RelA) v bazálních i LPS stimulovaných podmínkách pro WT a Gaplinc-KO BMDM srovnatelné (příloha SI, obr. S22). Když jsme však porovnali celkové hladiny proteinu p65 pomocí Western blotu, zjistili jsme významně zvýšené hladiny p65 v Gaplinc-KObuňkách ve srovnání s WT (obr. 4G). To naznačuje, že Gaplinc reguluje celkové hladiny p65 na translační úrovni. Kromě toho jsme hodnotili hladiny p65 v cytoplazmatických a jaderných kompartmentech a zjistili jsme, že jaderný p65 je hojnější v buňkách s deficitem Gaplinc ve srovnání s WT (obr. 4H). Společně tato data naznačují mechanickou roli GAPLINC při aktivaci kritických IRG.
Diskuse
Zde jsme identifikovali GAPLINC jako konzervovanou cytosolicky exprimovanou IncRNA u lidí a myší, která funguje tak, že kontroluje expresi zánětlivých genů prostřednictvím regulace NF-xB. Ve srovnání s publikovanými cytosolickými IncRNA, které ovlivňují translační účinnost modulací proteinové exprese nebo sestavení ribozomů (21-23), zjistíme, že Gapline cytosolicky přispívá k translační schopnosti p65; zbývá však určit mechanismus interakce, ať už přímé nebo nepřímé. Naše zjištění poskytují pohled na to, jak funkčně konzervovaná IncRNA reguluje imunitní odpověď, a poskytují možnosti výzkumu pro vývoj léčiv pro endotoxický šok.