Bělící účinek nové směsi peptidů regulací melanosomové biogeneze, přenosu a degradace, část 2
Mar 30, 2023
Směs peptidů inhibuje expresi melanosomových biogenezí/faktorů souvisejících s transportem
Pro zkoumání mechanismu depigmentačního účinku, který vykazuje směs peptidů, byly analyzovány hladiny exprese faktorů souvisejících s melanogenezí a faktorů souvisejících s transportem melanosomu.
navíccistanchemá také funkci podpory produkce kolagenu, který může zvýšit elasticitu a lesk pokožky a pomoci opravit poškozené kožní buňky.CistancheFenylethanolové glykosidy mají významný down-regulační účinek na aktivitu tyrosinázy a účinek na tyrosinázu se ukazuje jako kompetitivní a reverzibilní inhibice, která může poskytnout vědecký základ pro vývoj a použití bělicích složek v Cistanche. Proto,cistanchemá klíčovou roli při bělení kůže. Může inhibovat produkci melaninu, aby se snížilo zabarvení a matnost; a podporuje tvorbu kolagenuzlepšit pružnost a zářivost pokožky. Vzhledem k širokému uznání těchto účinků cistanche, mnohopřípravky na bělení kůžezačali přidávat bylinné přísady, jako je Cistanche, aby uspokojili poptávku spotřebitelů, čímž zvýšili komerční hodnotu Cistanche vbělení kůžeprodukty. Stručně řečeno, role cistanche vbělení kůžeje zásadní. Jeho antioxidační účinek a účinek produkující kolagen může snížit zabarvení a matnost, zlepšit elasticitu a lesk pokožky a dosáhnout tak bělícího účinku. Také široké použití Cistanche vbělení kůžeproduktů ukazuje, že jeho roli v obchodní hodnotě nelze podceňovat.

Klikněte na Kde mohu koupit Cistanche of Whitening
Požádat o víc:
david.deng@wecistanche.com WhatApp:86 13632399501
Jak je ukázáno na obr. 2A, hladiny transkripce MITF a jeho downstream genů, TYR, TYPR1 a TYRP2, byly sníženy směsí peptidů v buňkách B16F10. Kromě toho byly -MSH-indukované proteinové hladiny MITF a tyrosinázy významně sníženy směsí peptidů v buňkách B16F10 (obr. 2B).
Tyto výsledky naznačují, že k inhibičnímu účinku směsi peptidů na melanogenezi došlo inhibicí exprese faktorů souvisejících s melanogenezí.
Bylo publikováno, že MITF působí také jako transkripční faktor, který aktivuje motorické proteiny, které hrají roli v transportu melanosomů [28,29]. Abychom identifikovali, zda směs peptidů, která má inhibiční účinek na expresi MITF, snížila expresi motorických proteinů, analyzovali jsme hladiny mRNA a proteinů. Jak je znázorněno na obr. 2C, hladiny transkripce genů RAB27A, MLPH a MYO5A byly významně sníženy směsí peptidů v buňkách B16F10. Kromě toho, -MSH-indukované hladiny proteinu Rab27a a melanofilinu byly sníženy směsí peptidů v buňkách B16F10 (obr. 2D).
Tyto výsledky naznačují, že inhibice exprese MITF směsí peptidů může vést k inhibici transportu melanosomu.
Směs peptidů inhibuje aktivitu MITF prostřednictvím regulace fosforylace CREB a ERK
Abychom prozkoumali mechanismus účinku směsi peptidů na expresi MITF, analyzovali jsme hladinu fosforylace transkripčních a posttranslačních regulačních faktorů MITF.

Jak je znázorněno na obr. 3A, fosforylovaný CREB, transkripční faktor aktivující expresi MITF, byl snížen v závislosti na dávce peptidovou směsí. Již dříve bylo zjištěno, že aktivita MITF závisí na jeho posttranslačních modifikacích a proteazomem zprostředkovaná degradace proteinu MITF může být indukována fosforylovaným ERK1/2 [30]. Směs peptidů významně zvýšila hladinu p-ERK1/2 za podmínek stimulovaných -MSH v buňkách B16F10 (obr. 3B).
Tyto výsledky naznačují, že exprese a aktivita MITF může být snížena regulací fosforylace CREB a ERK1/2 směsí peptidů.
Směs peptidů potlačuje vychytávání keratinocytů HaCaT melanosomy
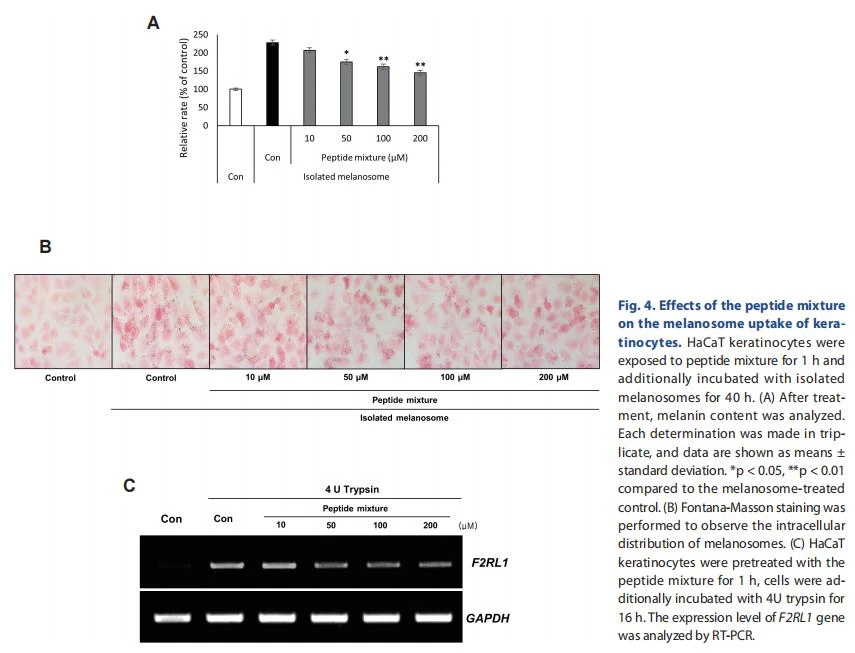
Je známo, že melanosomy jsou přenášeny z dendritických špiček melanocytů na keratinocyty prostřednictvím fagocytózy keratinocytů. Pro identifikaci, zda by směs peptidů mohla inhibovat přenos melanosomu na keratinocyty, byly keratinocyty HaCaT ošetřeny směsí peptidů v koncentracích 10, 50, 100 a 200 M a dále ošetřeny melanosomy izolovanými z buněk B16F10. Počet melanosomů přenesených do buněk byl v závislosti na dávce snížen směsí peptidů (obr. 4A). Analýza obrazu pomocí Fontana-Massonova barvení ukázala, že distribuce hnědě zbarvených melanosomů se významně snížila ve skupině léčené směsí peptidů způsobem závislým na dávce (obr. 4B).
Dále, exprese genu F2RL1 (PAR-2), receptoru, který reguluje fagocytózu keratinocytů, byla významně snížena směsí peptidů za podmínek stimulovaných trypsinem (obr. 4C).
Tyto výsledky naznačují, že směs peptidů může snížit fagocytózu prostřednictvím inhibice exprese PAR-2 v keratinocytech směsí peptidů.

Směs peptidů indukuje degradaci melanosomu v keratinocytech HaCaT
Je známo, že melanosomy přenesené do keratinocytů jsou postupně eliminovány kornifikací keratinocytů nebo degradovány intracelulárním autofagickým systémem. Abychom identifikovali, zda by směs peptidů mohla podporovat degradaci melanosomu, zpracovali jsme směs peptidů na melanosom obsahující keratinocyty HaCaT. Když byla sledována množství zbývajících melanosomů, byl pozorován na dávce závislý pokles u buněčného lyzátu ošetřeného směsí peptidů (obr. 5A). Analýza obrazu pomocí Fontana-Massonova barvení ukázala, že distribuce hnědě zbarvených melanosomů se významně snížila ve skupině léčené směsí peptidů způsobem závislým na dávce (obr. 5B).
Kromě toho, když byly sledovány hladiny proteinů souvisejících s autofagickou aktivitou v keratinocytech, hladiny proteinů Beclin-1 a LC3-II o tvorbě autofagozomů byly zvýšeny působením směsi peptidů, zatímco hladina proteinu p62 degradovala autofagolysozomy byla snížena působením směsi peptidů (obr. 5C).
Tyto výsledky naznačují, že směs peptidů indukovala autofagickou aktivitu k podpoře degradace melanosomů v keratinocytech.
Peptidová směs vykazovala anti-pigmentační účinek v modelu ekvivalentu kůže
Byl proveden experiment s použitím MelanoDerm, aby se zjistilo, zda by směs peptidů mohla vést k anti-pigmentaci pokožky. Po topickém ošetření liposomu obsahujícího 2,000 ppm směsi peptidů v dávkách 50 a 100 g po dobu 2 týdnů byla provedena světelná mikroskopie. Tvorba tmavých melanosomů byla indukována výhradně v tělech melanocytů a špičkách dendritů kontrolní tkáně, zatímco celková těla buněk byla světlá s menším počtem dendritů, protože produkce melaninu byla inhibována ve tkáni ošetřené směsí peptidů (obr. 6A ). Také obsahy melaninu byly v závislosti na dávce sníženy směsí peptidů, což podporuje vizuální pozorování (obr. 6B).
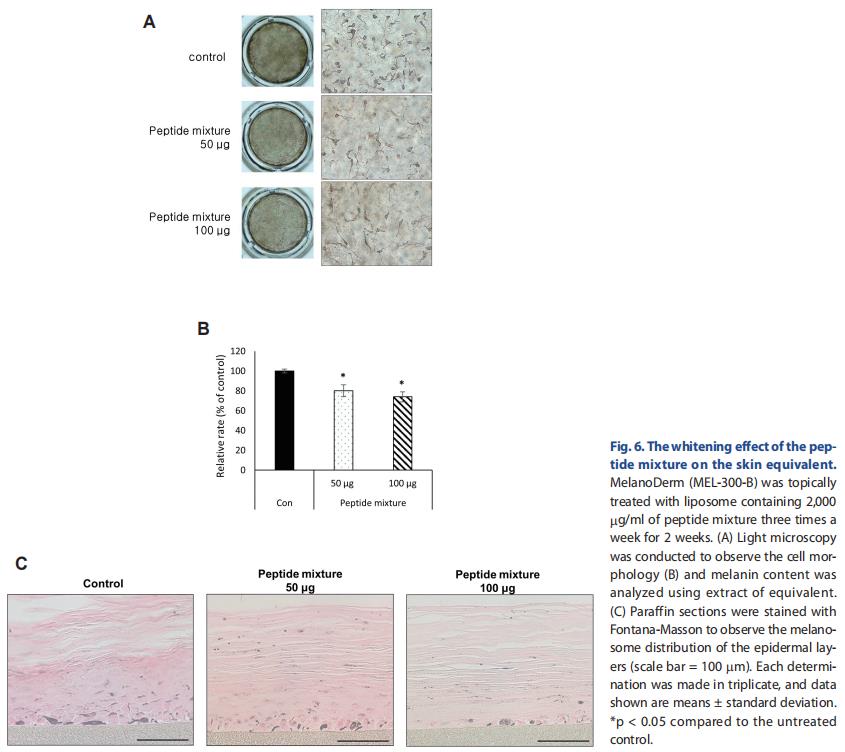
Kromě toho byla provedena histologie pro pozorování distribuce melaninu v epidermis. Podle výsledku kontrolní tkáň vykazovala výrazné zvýšení melanogeneze v melanocytech bazální vrstvy a v keratinocytech byl pozorován hnědě zbarvený melanin v důsledku doprovodného přenosu do blízkých keratinocytů. Značná hladina melaninu byla také pozorována ve svrchních zrohovatělých vrstvách. Na druhé straně byl obsah melaninu v melanocytech nízký ve tkáních ošetřených směsí peptidů a v keratinocytech a zrohovatělých vrstvách byl pozorován významný pokles obsahu melaninu ve srovnání s kontrolní skupinou (obr. 6C).
Tyto výsledky potvrdily významný anti-pigmentační účinek směsi peptidů na ekvivalenty kůže.
DISKUSE
Vývoj bělicích materiálů byl zaměřen především na inhibici melanogeneze v melanocytech prostřednictvím regulace faktorů souvisejících s melanogenezí [31-35]. Nedávno byly studovány další cíle depigmentace, včetně migrace, přenosu a degradace melanosomů a bylo identifikováno několik činitelů [36-42]. Protože pigmentace je akce zahrnující více mechanismů, mohlo by být účinné použít kombinaci terapeutických látek, které mají regulační účinky pro každý cíl.
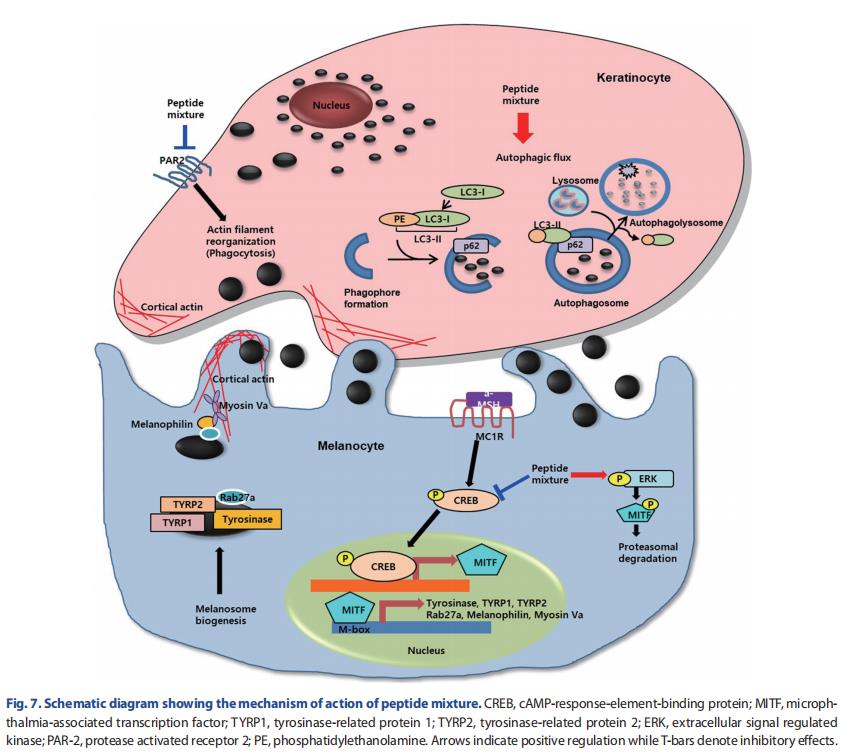
Tato studie zkoumala bělící aktivitu směsi peptidů obsahující čtyři různé peptidy se stejným molárním poměrem. Navrhovaný mechanismus účinku směsi peptidů proti biogenezi, přenosu a degradaci melanosomu je znázorněn na obr. 7. V melanocytech směs peptidů inhibuje fosforylaci CREB, což má za následek sníženou expresi MITF a indukuje fosforylaci ERK1/2, což vede k fosforylaci MITF a degradaci proteasomů . V důsledku toho je snížena exprese biogeneze melanosomu a proteinů souvisejících s transportem, včetně tyrosinázy, TYRP1, TYRP2, Rab27A, melanofilinu a MYO5A. V keratinocytech snižuje směs peptidů expresi PAR-2, která zprostředkovává fagocytární schopnost keratinocytů korelující s reorganizací aktinových vláken. Kromě toho směs peptidů aktivuje autofagický tok a přenesené melanosomy jsou degradovány v autofagolysozomu.
Peptidy byly rozsáhle zkoumány jako aktivní složky pro kosmetiku kvůli jejich vysoké biokompatibilitě a aktivitě napodobující proteiny [43]. Ale mají také některé nevýhody v tom, že mohou být snadno degradovány proteázami přítomnými v kůži a nemohou snadno proniknout do epidermis složené z lipidů kvůli jejich hydrofilitě [44]. Studie pro zvýšení stability peptidu navrhly způsoby substituce aminokyselin na předpokládaných místech štěpení, acetylaci N-konce a amidaci C-konce [45]. Kromě toho existuje mnoho studií na zlepšení transdermální penetrace peptidů: způsoby zahrnující použití induktorů penetrace, jako jsou alkoholy, azony, hexanoáty a nenasycené mastné kyseliny; způsoby zahrnující použití specifických peptidových sekvencí, které usnadňují permeaci; způsoby kombinující lipofilní deriváty; a způsoby zapouzdřování peptidů, jako jsou liposomy, transferzomy, niosomy a etosomy [46-48]. V tomto ohledu jsme připravili lipozomy zapouzdřující směs peptidů, abychom otestovali její bělící účinek na modelu ekvivalentu kůže topickým ošetřením a ve skupině s testovaným liposomem bylo prokázáno významné snížení obsahu melaninu v epidermálních vrstvách (obr. 6C).
Závěrem lze říci, že směs peptidů z této studie vykazovala bělící účinek prostřednictvím různých účinků, včetně inhibice syntézy a migrace melaninu, jakož i inhibice příjmu melanosomu keratinocyty a podpory degradace melanosomu. Peptidová směs z této studie by mohla být použita jako nový bělící materiál a lipozom, který usnadňuje stabilitu a penetraci peptidů pokožkou, by mohl být použit k vývoji účinných bělicích produktů.
PODĚKOVÁNÍ
Tato studie byla provedena za podpory projektu World Class 300 R&D Project Ministerstva obchodu, průmyslu a energetiky (číslo projektu: S2641452).
STŘET ZÁJMŮ
Autoři neprohlašují žádný střet zájmů.
REFERENCE
1. Hirobe T. Keratinocyty regulují funkci melanocytů. Dermatol Sin. 2014;32:200-204.
2. Hachiya A, Kobayashi A, Ohuchi A, Takema Y, Imokawa G. Parakrinní úloha signalizace faktoru kmenových buněk/c-kit při aktivaci lidských melanocytů při pigmentaci indukované ultrafialovým zářením B. J Invest Dermatol. 2001;116:578-586.
3. Hirobe T, Hasegawa K, Furuya R, Fujiwara R, Sato K. Účinky faktorů odvozených od fibroblastů na proliferaci a diferenciaci lidských melanocytů v kultuře. J Dermatol Sci. 2013;71:45-57.
4. Schauer E, Trautinger F, Köck A, Schwarz A, Bhardwaj R, Simon M, Ansel JC, Schwarz T, Luger TA. Peptidy odvozené od proopiomelanokortinu jsou syntetizovány a uvolňovány lidskými keratinocyty. J Clin Invest. 1994;93:2258-2262.
5. Chakraborty AK, Funasaka Y, Slominski A, Ermak G, Hwang J, Pawelek JM, Ichihashi M. Produkce a uvolňování peptidů odvozených od proopiomelanokortinu (POMC) lidskými melanocyty a keratinocyty v kultuře: regulace ultrafialovým zářením B. Biochim Biophys Acta. 1996;1313:130-138.
6. Wakamatsu K, Graham A, Cook D, Thody AJ. Charakterizace ACTH peptidů v lidské kůži a jejich aktivace melanokortinového-1 receptoru. Pigment Cell Res. 1997; 10:288-297.
7. Imokawa G. Autokrinní a parakrinní regulace melanocytů v lidské kůži a pigmentové poruchy. Pigment Cell Res. 2004;17:96-110.
8. Chakraborty A, Slominski A, Ermak G, Hwang J, Pawelek J. Ultrafialové B a melanocyty stimulující hormon (MSH) stimulují produkci mRNA pro alfa MSH receptory a peptidy odvozené od proopiomelanokortinu v myších melanomových buňkách a transformovaných keratinocytech. J Invest Dermatol. 1995;105:655-659.
9. Khaled M, Larribere L, Bille K, Aberdam E, Ortonne JP, Ballotti R, Bertolotto C. Glykogensyntáza kináza 3beta je aktivována cAMP a hraje aktivní roli v regulaci melanogeneze. J Biol Chem. 2002;277:33690-33697.
10. Kim YM, Cho SE, Seo YK. Aktivace melanogeneze pomocí p CREB a MITF signalizace s extrémně nízkofrekvenčním elektromagnetickým polem na melanomu B16F10. Life Sci. 2016;162:25-32.
11. Kameyama K, Sakai C, Kuge S, Nishiyama S, Tomita Y, Ito S, Wakamatsu K, Hearing VJ. Exprese tyrosinázy, tyrosinázy příbuzných proteinů 1 a 2 (TRP1 a TRP2), stříbrného proteinu a melanogenního inhibitoru v lidských melanomových buňkách s různými melanogenními aktivitami. Pigment Cell Res. 1995; 8:97-104.
12. Van Gele M, Geusens B, Schmitt AM, Aguilar L, Lambert J. Knockdown isoforem myosinu Va pomocí RNAi jako nástroj k blokování transportu melanosomu v primárních lidských melanocytech. J Invest Dermatol. 2008;128:2474-2484.
13. Ohbayashi N, Fukuda M. Role GTPáz rodiny Rab a jejich efektorů v melanosomální logistice. J Biochem. 2012;151:343-351.
14. Park JI, Lee HY, Lee JE, Myung CH, Hwang JS. Inhibiční účinek 2-methyl-nafto[1,2,3-de]chinolinu-8-one na transport melanozomů a pigmentaci kůže. Sci Rep. 2016;6:29189.
15. Oberhofer A, Spieler P, Rosenfeld Y, Stepp WL, Cleetus A, Hume AN, Mueller-Planitz F, Ökten Z. Adaptérový protein Myosin Va melanophilin prosazuje výběr stop na mikrotubulech a aktinových sítích in vitro. Proč Natl Acad Sci USA A. 2017;114:E4714-E4723.
16. Provance DW, James TL, Mercer JA. Melanofilin, produkt lokusu olova, je nezbytný pro zacílení myosinu-Va do melanosomů. Provoz. 2002;3:124-132.
17. Strom M, Hume AN, Tarafder AK, Barkagianni E, Seabra MC. Rodina Rab27-vazebných proteinů. Melanofilin spojuje funkci Rab27a a myosinu Va při transportu melanosomu. J Biol Chem. 2002;277:25423-25430.
18. Wu XS, Rao K, Zhang H, Wang F, Sellers JR, Matesic LE, Copeland NG, Jenkins NA, Hammer JA 3. Identifikace organelového receptoru pro myosin-Va. Nat Cell Biol. 2002;4:271-278.
19. Kuroda TS, Ariga H, Fukuda M. Aktin-vazebná doména Slac2-a/melanofilinu je nezbytná pro distribuci melanosomů v melanocytech. Mol Cell Biol. 2003;23:5245-5255.
20. Cardinali G, Ceccarelli S, Kovacs D, Aspite N, Lotti LV, Torrisi MR, Picardo M. Keratinocytový růstový faktor podporuje přenos melanosomu do keratinocytů. J Invest Dermatol. 2005;125:1190-1199.
21. Epstein JH. Fotokarcinogeneze, rakovina kůže a stárnutí. J Am Acad Dermatol. 1983; 9:487-502.
22. Speeckaert R, Van Gele M, Speeckaert MM, Lambert J, van Geel N. Biologie hyperpigmentačních syndromů. Pigment Cell Melanoma Res. 2014; 27:512-524.
23. Maymone MBC, Neamah HH, Secemsky EA, Vashi NA. Korelace indexu kvality života dermatologa a nástroje dotazníku pro hodnocení dopadu změny barvy kůže u poruch hyperpigmentace. J Dermatol. 2018;45:361-362.
24. Pillaiyar T, Manickam M, Namasivayam V. Činidla pro bělení kůže: perspektiva inhibitorů tyrosinázy z lékařské chemie. J Enzyme Inhib Med Chem. 2017;32:403-425.
25. Juhasz MLW, Levin MK. Úloha systémové léčby pro zesvětlení pleti. J Cosmet Dermatol. 2018; 17:1144-1157.
26. Zhang L, Falla TJ. Kosmeceutika a peptidy. Clin Dermatol. 2009; 27:485-494.
27. Reddy B, Jow T, Hantash BM. Bioaktivní oligopeptidy v dermatologii: část I. Exp Dermatol. 2012; 21:563-568.
28. Chiaverini C, Beuret L, Flori E, Busca R, Abbe P, Bille K, Bahadoran P, Ortonne JP, Bertolotto C, Ballotti R. Transkripční faktor spojený s mikroftalmií reguluje expresi genu RAB27A a řídí transport melanosomu. J Biol Chem. 2008;283:12635-12642.
29. Alves CP, Yokoyama S, Goedert L, Pontes CLS, Sousa JF, Fisher DE, Espreafico EM. Gen MYO5A je cílem MITF v melanocytech. J Invest Dermatol. 2017;137:985-989.
30. Hartman ML, Czyz M. MITF u melanomu: mechanismy jeho exprese a aktivity. Cell Mol Life Sci. 2015;72:1249-1260.
31. Lajis AFB, Ariff AB. Objev nových depigmentačních sloučenin a jejich účinnost při léčbě hyperpigmentace: důkazy ze studie in vitro. J Cosmet Dermatol. 2019; 18:703-727.
32. Garcia-Jimenez A, Teruel-Puche JA, Berna J, Rodriguez-Lopez JN, Tudela J, Garcia-Canovas F. Účinek tyrosinázy na alfa a beta arbutin: kinetická studie. PLoS One. 2017;12:e0177330.
33. Yu JS, Kim AK. Vliv kombinace taurinu a kyseliny azelaové na antimelanogenezi v buňkách myšího melanomu. J Biomed Sci. 2010;17(Suppl 1):S45.
34. Lee CS, Jang WH, Park M, Jung K, Baek HS, Joo YH, Park YH, Lim KM. Nový adamantylbenzylbenzamidový derivát, AP736, potlačuje melanogenezi prostřednictvím inhibice cAMP-PKA CREB-aktivovaného transkripčního faktoru spojeného s mikroftalmií a exprese tyrosinázy. Exp Dermatol. 2013; 22:762-764.
35. Huang HC, Chang SJ, Wu CY, Ke HJ, Chang TM. [6]-Shogaol inhibuje melanogenezi indukovanou -MSH prostřednictvím urychlení degradace MITF zprostředkované ERK a PI3K/Akt. Biomed Res Int. 2014;2014:842569.
36. Kim B, Lee JY, Lee HY, Nam KY, Park J, Lee SM, Kim JE, Lee JD, Hwang JS. Hesperidin potlačuje transport melanosomu blokováním interakce Rab27A-melanofilin. Biomol Ther (Soul). 2013; 21:343-348.
37. Chang H, Choi H, Joo KM, Kim D, Lee TR. Manassantin B inhibuje transport melanosomu v melanocytech narušením interakce melanofilin-myosin Va. Pigment Cell Melanoma Res. 2012; 25:765-772.
38. Makino-Okamura C, Niki Y, Takeuchi S, Nishigori C, Declercq L, Yaroch DB, Saito N. Heparin inhibuje vychytávání melanosomů a zánětlivou odpověď spojenou s fagocytózou prostřednictvím blokování signálních drah PI3k/Akt a MEK/ERK v lidských epidermálních keratinocytech . Pigment Cell Melanoma Res. 2014; 27:1063-1074.
39. Seiberg M, Paine C, Sharlow E, Andrade-Gordon P, Costanzo M, Eisinger M, Shapiro SS. Receptor 2 aktivovaný proteázou reguluje pigmentaci prostřednictvím interakcí keratinocyt-melanocyt. Exp Cell Res. 2000;254:25-32.
40. Murase D, Hachiya A, Takano K, Hicks R, Visscher MO, Kitahara T, Hase T, Takema Y, Yoshimori T. Autofagie má významnou roli při určování barvy kůže regulací degradace melanosomů v keratinocytech. J Invest Dermatol. 2013;133:2416-2424.
41. Kim ES, Shin JH, Seok SH, Kim JB, Chang H, Park SJ, Jo YK, Choi ES, Park JS, Yeom MH, Lim CS, Cho DH. Autofagie zprostředkovává antimelanogenní aktivitu 3'-ODI v buňkách melanomu B16F1. Biochem Biophys Res Commun. 2013;442:165-170.
42. Li L, Chen X, Gu H. Signalizace zapojená do autofagického aparátu v keratinocytech a terapeutické přístupy pro kožní onemocnění. Oncotarget. 2016; 7:50682-50697.
43. Schagen SK. Lokální peptidová ošetření s účinnými výsledky proti stárnutí. Kosmetika. 2017;4:16.
44. Reddy BY, Jow T, Hantash BM. Bioaktivní oligopeptidy v dermatologii: část II. Exp Dermatol. 2012; 21:569-575.
45. Strömstedt AA, Pasupuleti M, Schmidtchen A, Malmsten M. Hodnocení strategií pro zlepšení proteolytické rezistence antimikrobiálních peptidů pomocí variant EFK17, vnitřního segmentu LL- 37. Antimikrobiální látky Chemother. 2009;53:593-602.
46. Pai VV, Bhandari P, Shukla P. Topické peptidy jako kosmeceutika. Indian J Dermatol Venereol Leprol. 2017; 83:9-18.
47. Marepally S, Boakye CH, Shah PP, Etukala JR, Vemuri A, Singh M. Návrh, syntéza nových lipidů jako zesilovačů chemické permeace a vývoj systému nanočástic pro transdermální podávání léčiv. PLoS One. 2013;8:e82581.
48. Kalluri H, Banga AK. Transdermální podávání proteinů. AAPS PharmSciTech. 2011;12:431-441.
Požádejte o více: david.deng@wecistanche.com WhatApp:86 13632399501