Dva lidské metabolity zachraňují model Alzheimerovy choroby C. Elegans prostřednictvím cytosolické rozložené proteinové odpovědi
Mar 21, 2023
Změny buněčného metabolismu související s věkem mohou ovlivnit homeostázu mozku a vytvořit podmínkykteré umožňují vznik a progresi neurodegenerativních poruch, jako je např Alzheimer's a Parkinson's nemocemi. Ačkoli role metabolitů byla značně rozsáhlábyly studovány s ohledem na buněčné signální dráhy, jejich účinky na agregaci proteinů zůstávají relativně neprozkoumané. Výpočetní analýzou databáze lidského metabolomuidentifikovali jsme dva endogenní metabolity, karnosin a kyselinu kynurenovou, které inhibují agregaci amyloidního beta peptidu (A ) a záchrana aC. elegansmodelAlzheimer's nemocí. Zjistili jsme, že tyto metabolity působí tak, že spouští cytosolický nesbalený proteinodpověď prostřednictvím transkripčního faktoru HSF-1 a následných chaperonů HSP40/Jproteinů DNJ-12 a DNJ-19. Tyto výsledky pomáhají racionalizovat předchozí pozorování týkající semožné výhody těchto metabolitů proti stárnutí poskytnutím mechanismu jejich působení. Dohromady, našezjištěníposkytují spojení mezi homeostázou metabolitů aproteinová homeostáza, která by mohla inspirovat k preventivním zásahům protineurodegenerativní poruchy.

Požádat o víc:
E-mail:wallence.suen@wecistanche.com Whatsapp plus 86 15292862950
Alzheimer's nemoc (AD) je komplexní porucha charakterizovaná přítomností aberantních proteinových depozit v mozkových tkáních1–3. I když molekulární původ tohoto onemocnění je stále ještě třebapevněObecně se uznává, že přítomnost proteinových depozit je spojena s dysregulací sítě proteinové homeostázy4,5. Tento systém je zase součástí širšího systému buněčné homeostázy, který zahrnuje řadu dalších složek, včetně systému homeostázy metabolitů.6,7. Metabolity ovlivňují klíčové kroky v buněčných drahách, kde působí jako substráty pro enzymy nebo jako signální molekuly pro aktivaci biochemických drah. Například kalorická restrikce a přerušovaný půst zpomalují strukturální a funkční pokles během stárnutí u laboratorních hlodavců a opic8–10.
Kromě toho se vyvinuly signální dráhy, aby reagovaly na buněčné stresystárnutí, přičemž dráhy AMPK a mTOR jsou široce studovány v buněčném vývoji a stárnutí11–14. Je proto důležité pochopit, jak jsou neurodegenerativní poruchy spojené se stárnutím, jako je AD, spojeny s aberacemi v buněčné homeostáze. Specifickou hypotézou, kterou zde zkoumáme, je, zda je dysregulace hladin metabolitů spojena s aberantní agregací proteinů u AD. Přistupujeme k tomu testováním, zda doplnění dysregulovaných metabolitů může zabránit nebo odstranit agregaci špatně složených proteinů. Ke vzniku a progresi přispívá poškození různých biologických procesůINZERÁT, včetně opravy DNA, vflflamace, mitochondriální funkce, oxidační stres, excitabilita neuronální sítě, homeostáza kovových iontů, autofagie, hypotalamická regulace, neurogeneze dospělých a homeostáza proteinů (obr.1)1,15–28. Metabolity s malými molekulami hrají v těchto biochemických procesech klíčovou roli, ale stále není podrobně známo, které z těchto rolí jsouPrvnídysregulované a jsou spojeny s patofyziologickým začátkem a progresí onemocnění. V této souvislosti se teprve ukáže, zda je fenomén chybného skládání a agregace proteinů příčinou nebo důsledkem narušení těchto biologických procesů.pevnězaloženo. Široká škála studií ukázala, že agregace proteinů může přímo vést k aktivaci následných biochemických kaskád, kteréfifinemůže posunout patologii AD29. Toxické agregátní druhy jsou rozpoznány jako A a Tau oligomery, jejichž abnormální interakce s buněčnými složkami může narušit neuronální funkce29,30. Vzhledem k našemu současnému chápání AD může zpomalení nebo inhibice agregace proteinů přispět k prevenci rozvoje onemocnění. Pochopení toho, které cesty přispívají k tomuto cíli, tedy může nabídnout zasvěcená okna příležitostí pro preventivní a terapeutické intervence a také poskytnout pokyny pro udržitelné způsoby života (např. faktory životního stylu, cvičení a strava), které potlačujíINZERÁTa propagovatzdravé stárnutí.

Obr. 1 Metabolitová homeostáza a proteinová homeostáza vAlzheimer'nemoc (AD). a AD je spojena se širokou škálou dysfunkcí v buněčné homeostáze (barevné rámečky). Na regulaci těchto buněčných procesů se podílí řada endogenních metabolitů (vložky šedého rámečku).b Malá molekulaendogenní metabolity mohou modulovat procesy agregace proteinů spojené s onemocněním. Navržením systematických studií můžeme odhalit přesné molekulární mechanismy, kterými vyrovnávají homeostázu proteinů.
a chybné skládání a odpovědi na rozvinuté proteiny (UPR) v endoplazmatickém retikulu a mitochondriích31,32. Mnoho proteinů tepelného šoku z HSR jsou molekulární chaperony, které řídí konformaci proteinů během biogeneze a zabraňují chybnému skládání a agregaci, které narušují buněčnou funkci.21. Vzhledem k tomu, že cytoplazma je také souborem různých metabolitů produkovaných a přenášených přes biochemické sítě, očekává se, že jejich hladiny a prahové koncentrace v buňce mohou mít vliv jako regulátory malých molekul na síť proteinové homeostázy, a tak udržet proteiny náchylné k agregaci v jejich rozpustný stav. Patel a kolegové ukázali, že ATP zvyšuje rozpustnost proteinů ve fyziologických koncentracích (rozsah mM)33. Lze tedy předpokládat, že k modulaci agregace proteinů mohou přispívat i jiné endogenní metabolity. Bylo prokázáno, že zvýšená exprese molekulárních chaperonů, která je primárně regulována faktorem tepelného šoku 1 (HSF-1), obnovuje proteinovou homeostázu v různých modelech nemocí s nesprávným skládáním proteinů, což naznačuje, že tento mechanismus může představovat slibný cíl pro preventivní a terapeutické přístupy34. Calamini a kol. identifikovali nové třídy regulátorů homeostázy proteinů s malou molekulou, které indukují expresi chaperonu závislou na HSF{1}} a obnovují skládání proteinů v mnoha modelech konformačních onemocnění proteinů. Tyto příznivé účinky na stabilitu proteomu jsou zprostředkovány HSF1, FOXO, NRF2 a chaperonovým aparátem34. Ve skutečnosti jsou endogenní metabolity také malé molekuly, které regulují klíčové biologické procesy. Protože hladiny těchto metabolitů se mohou měnit v reakci na environmentální podněty, je důležité pochopit jejich přímé účinky na homeostázu proteinů. V této práci jsme se ptali, zda endogenní metabolity mohou či nemohou ovlivnit agregaci proteinů, a pokud ano, jaký je jejich mechanismus účinku. Jde o přímé ovlivnění vazbou na monomerní, oligomerní afibrilárnídruhů nebo agregátů, nebo je to nepřímé působením na různé jiné buněčné homeostatické mechanismy? Prostřednictvím našich výzkumů jsme identifikovali dva lidské endogenní metabolity, které spouštějí cytoplazmatickou rozloženou proteinovou odpověď zvýšením hladin HSF-1 a downstream ko-chaperonů J-proteinů HSP40, což nakonec vede k clearance A agregáty v aC. elegansmodel AD.

Výsledek
Identifikace endogenních metabolitů jako regulátorů homeostázy proteinů s malou molekulou.
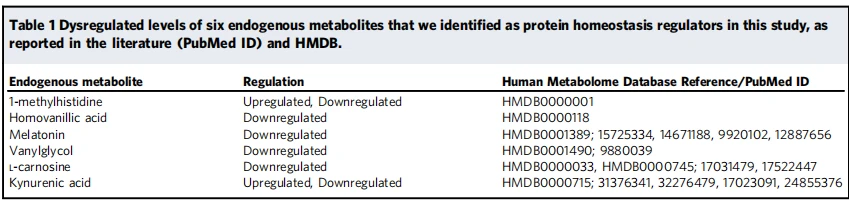
Aby bylo možné identifikovat metabolity spojené sINZERÁT, začali jsme výpočtem fragmentů a skóre podobnosti35 (viz"Metody" sekce) malých molekul uváděných jako regulátory proteinové homeostázy Cala mini et al.34 (obr.2A). Pomocí těchto fragmentů jsme provedli screening databáze lidského metabolomu (HMDB)36 pro metabolity detekované v mozkomíšním moku (CSF). Protože je CSF v přímém kontaktu s extracelulárním prostorem mozku, poskytuje okno pro metabolismus mozku tím, že odráží biochemii mozku.37 ve formě souvisejících metabolitů. V této práci jsme uvažovali pouze o endogenních metabolitech, protože jsme se chtěli podívat na molekuly aktivní v primárních buněčných mechanismech, které nezahrnují exogenní metabolické produkty. Naše úvaha je taková, že zaměření na endogenní metabolity může pomoci identifikovat základní buněčné procesy, které jsou při neurodegeneraci ohroženy jako reakce na prostředí a/nebo buněčné urážky. Protože detekce a kvantifikace metabolitů v tělesných tekutinách je náročná, filtrovali jsme pouze ty metabolity, které byly extenzivně detekovány a kvantifikovány. Poté jsme použili databázi KEGG38 identifikovat biochemické dráhy spojené s těmito metabolity a dále metabolity, které jsou zvláště dysregulované při neurodegeneraci (doplňková data 1). V případě dysregulace jsou úrovně upregulace a downregulace těchto metabolitů dostupné z HMDB a související literatury, která je v ní dostupná. Poté jsme provedli rešerši v literatuře, abychom potvrdili dysregulovaný stav metabolitů v neurodegeneraci. Tento stav jsme hodnotili jako skóre asociace provedením vyhledávání PubMed (viz"Metody" oddíl) (Doplňující údaje 1). V zásadě asociační skóre popisuje asociaci AD s identifikovaným endogenním metabolitem napříč studiemi uvedenými v PubMed. Klasifikace identifikovaných metabolitů na upregulované a downregulované poskytuje pohled na účinky jejich normálních koncentrací na udržení buněčné homeostázy a jejich dysregulaci při onemocnění. Zjistili jsme, že 186 z 380 endogenních metabolitů CSF je dysregulováno při neurodegeneraci (doplňková data 1). Poté jsme se zaměřili na šest z těchto metabolitů: 1-methylhistidin, kyselinu homovanilovou, melatonin,L-karnosin, vanylglykol a kyselina kynurenová (tabulka1), které byly vybrány, protože sdílely překrývající se fragmenty se známými regulátory homeostázy proteinů HSF{0}} (obr.2b). Poté jsme experimentálně zkoumali jejich možné role při modulaci agregace A 42, vysoce cytotoxická 42-zbytková forma A .
Karnosin a kyselina kynurenová zachraňují C. elegans model AD. C. elegansje dobře charakterizovaný model stárnutí sdílející základní biochemické podobnosti s lidmi.
Navíc s průměrnou životností 2–3 týdny, je to výkonný nástroj in vivo pro studium agregace proteinů. Protože zkoumáme endogenní metabolity a chtěli jsme prozkoumat, zda a jakým mechanismem mohou metabolity čistit agregáty, zvažovali jsme výběrC. elegansin vivo systém pro screening namísto in vitro screeningového přístupu. Nejprve jsme provedli screening závislý na dávce (0, 1, 5 a 10μM) (rozšířená data na doplňkových obrázcích 1 a 2) ze šesti metabolitů, které jsme identifikovali jako regulátory proteostázy, abychom otestovali celkovou zdatnost dobře zavedenéhoC. elegansmodel, GMC101 (GMC), ve kterém A 42 je nadměrně exprimován ve velkých svalových buňkách39. Tento model ukazuje tvorbu inkluzí v závislosti na věku a související toxicitu, kterou lze měřit snížením počtu ohybů těla za minutu (BPM), zvýšením míry paralýzy a snížením rychlosti pohybu.39 (obr.3). Hlásíme jakékoli známkyfifiPři léčbě metabolity nelze těžit ze změn v celkové kondici, kde kondici považujeme za celkovou behaviorální reakci červů jako funkci BPM, rychlosti (mm/s) a živého poměru. Použili jsme Thioflflavin-T (ThT) jako pozitivní kontrola, u které bylo dříve prokázáno, že výrazně prodlužuje životnost a zpomaluje stárnutí u dospělýchC. elegans40; tyto příznivé účinky ThT závisí na HSF-1, transkripčním faktoru odolnosti vůči stresu a dlouhověkosti SKN-1, molekulárních chaperonech, autofagii a proteazomálních funkcích40 (Doplňkové obr. 1 a 2). Červi GMC a divoký typ N2 byli přesunuti na metabolity ve stádiu L4, aby se zabránilo vývojovým účinkům, a podrobeni testům motility v den 5 dospělosti, kdy se fenotypové projevy A. 42 je výrazná toxicita (obr.3). Zjistili jsme, že tři metabolity, karnosin, jakýkoli glykol a kyselina kynurenová, zlepšily zdatnost červů ve srovnání s neléčenými červy GMC (doplňkové obrázky 1, 2 a pro podrobnou charakterizaci viz obr.3). ThT jsme použili jako pozitivní kontrolu červafifitness40. Zjistili jsme, že výsledky získané s karnosinem a kyselinou kynurenovou byly vysoce reprodukovatelné z hlediska zvýšené motility a výrazně snížily NIAD-4-obarvené agregáty ve srovnání s neošetřenými červy, a proto jsme vybrali tyto dva metabolity pro další charakterizaci.

Obr. 2 Identifikaceendogenních metabolitů jako regulátorů proteinové homeostázy, které jsou u AD dysregulovány. ASchéma strategie založené na výpočetních fragmentech, kterou jsme použili k identifikaci endogenních metabolitů z databáze lidských metabolomů (HMDB) jako kandidátních regulátorů proteinové homeostázy, které jsou také dysregulovány u AD.b Pomocí tohoto přístupu jsme identifikovališest kandidátních metabolitů, které slouží jako regulátory proteinové homeostázy (tab1, doplňkový obr. 1 a doplňková data 1).
Při různých dávkách metabolitů vykazují karnosin i kyselina kynurenová jasnou odpověď na zlepšení motility v den 5 (obr.3b–e) ve srovnání s počátečními (mladšími) dny dospělosti. Motilita GMC (v BPM) byla nejvyšší při koncentraci 15μM karnosin a 10μM kyselina kynurenová s odpovídajícím nižším počtem agregátů (obr.3f, g). Viděli jsme, že karnosin je stejně účinný v rozmezí koncentrací 10–25 μM a. Kyselina kynurenová byla nejúčinnější při snižování celkového počtu na 15μM koncentrace.
V obou případech další zvýšení koncentrací (Větší než nebo rovno50 μM) nevykazovalo žádné zlepšení motility, pravděpodobně kvůli nesouvisejícím toxickým účinkům metabolitů vC. elegans(Doplňkový obr. 1h, i). Nepozorovali jsme žádné zjevné účinky karnosinu a kyseliny kynurenové na změny motility červů a celkovézdatnostskóre u červů N2 divokého typu (doplňkový obr. 4). Celkovýzdatnostskóre se vypočítá pomocí metrik, které zahrnují ohyby těla, rychlost, míru ochrnutí, plochu na zvíře a střední chyby. Výslednáotisk prstuje generován ve formě radarového grafu pomocí softwaru s otevřeným zdrojovým kódem, jak je popsáno v Perni et al.41.