

Tubulosid B z Cistanche Salsa zachraňuje neuronové buňky PC12 před apoptózou a oxidačním stresem indukovanou 1-methyl-4-fenylpyridiniovými ionty
Mar 06, 2022
Kontakt: Audrey Hu Whatsapp/hp: 0086 13880143964 E-mail:audrey.hu@wecistanche.com
Guoqing Zheng, Xiaoping Pu, Li Lei, Pengfei Tu, Changling Li
Abstraktní:
Neuroprotektivumúčinky tubulosidu B z cistanche, jeden z fenylethanoidů izolovaných z čínbylinný lék Cistanche salsa, na 1-methyl-4-fenylpyridiniovém iontu (MPP plus )-indukovaná apoptóza a oxidační stres v neuronových buňkách PC12. Buňky PC12 ošetřené MPP – prošly apoptotickou smrtí, jak bylo stanoveno testem MTF, průtokovou cytometrií a elektroforézou na DNA agarózovém gelu; intracelulární akumulace reaktivních forem kyslíku (ROS) byla měřena barvením DCFH-DA laserovou skenovací konfokální mikroskopií (LSCM). Současná léčba tuhulosidem B výrazně zeslabila MPP+-indukovanou cytotoxicitu, fragmentaci DNA a intracelulární akumulaci ROS. Tyto výsledky silně naznačují, že tubulosid B zabraňuje apoptóze indukované MPP a oxidačnímu stresu. Tubulosid B může být aplikován jako anantiparkinsonské nemociagenti.

Úvod
Patologicky je sporadická Parkinsonova nemoc (PD) typicky charakterizována ztrátou katecholaminergních neuronů, zejména dopaminergních neuronů substantia nigra pars compacta (SNc), a přítomností charakteristických intraneuron| inkluze zvané Lewyho tělíska v postižených oblastech mozku. Navzdory řadě faktorů, které se podílejí na patogenezi PD, zůstávají mechanismy podílející se na iniciaci a progresi PD nejisté. I když příčina PD zůstává zodpovězena, několik linií důkazů silně naznačuje zapojení oxidačního stresu, což nakonec vede k neuronální smrti nebo apoptóze nadměrnou tvorbou volných radikálů [1], [2], [3]. Tuto hypotézu dále podporuje skutečnost, že nigrální dopaminergní systém může produkovat vysoké hladiny volných radikálů a má relativně nízké hladiny antioxidačního obranného systému. Studie in vivo i in vitro prokázaly oxidačním stresem zprostředkovanou neurotoxicitu MPP+, aktivního metabolitu l-methyl-4-fenyl-l,2,3,6-tetrahydropyridinu (MPTP) na dopaminergních neuronech [4 ], [5]. Zapojení volných radikálů nadměrně produkovaných oxidačním stresem jako bezprostřední příčina neurodegenerativních poruch, jako je PD, naznačuje klíčovou roli antioxidantů. Tubulosid B (obr. l) byl jednou z fenylethanoidních sloučenin izolovaných z kmenůCistanche salsa. Předchozí studie zjistily, že mnoho fenylethanoidů včetně tubulosidu B vykazovalo silnou aktivitu vychytávání volných radikálů [6], [7].
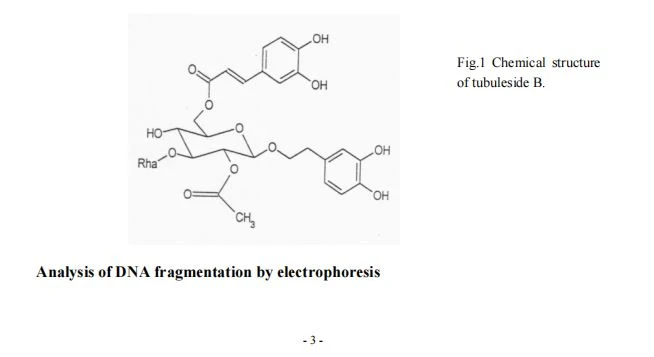
S ohledem na tato zjištění jsme v této studii zkoumali účinek tubu]nsidu B na neurotoxicitu indukovanou MPP plus in vitro s použitím feochromocytomové buněčné linie sympatického nervu PC12, která byla v průběhu let úspěšně používána ke studiu neuronální funkce [8], [9].
antiparkinsonská nemoc:cistanche
Materiály a metody
Materiály
Tubulosid B zCistanche salsabyl laskavě dodán Dr. Li Lei (Department of Natural Products, School of Pharmaceutical Sciences, Peking University, Peking, Čína). Čistota sloučeniny byla podle analýzy HPLC více než 98 procent. Dulbeccovo modifikované Eagleovo médium (DMEM), koňské sérum a fetální telecí sérum byly zakoupeny od GIBCO BRL, 1-methyl-fenylpyridinium ion (MPP plus ), poly-L-lysin, 3-(4, 5 -dimethylthiazol-2 -yl)-2,5- difenyltetrazoliumbromid (MTT), propidiumjodid (PI), RNáza A, proteináza K a 2,7'-dichlorfluorescein diacetát (DCFH-DA) byly zakoupeny od Sigma.
Buněčná kultura
PCI2 buňky byly udržovány v DMEM doplněném 10 procentem koňského séra, 5 procent fetálního telecího séra, 100 U/ml penicilinu a 100 ug/ml streptomycinu. Buňky byly kultivovány ve zvlhčeném inkubátoru provzdušňovaném 95 procenty vzduchu a 5 procenty CO2 při 37 stupních. Všechny experimenty byly provedeny 24-48 h po naočkování buněk. Buňky byly rutinně sklizeny trypsinizací 0,25 procenta, když se buňky přiblížily subkonfluentnímu stádiu, a umístěny do 25 cm kultivačních lahví rozdělených v poměru 1:8.
Analýza životaschopnosti buněk
Životaschopnost buněk byla stanovena pomocí modifikovaného testu MTT, jak bylo popsáno dříve [10]. Stručně řečeno, buňky PC12 byly nasazeny na 96-jamkové destičky v hustotě 1 × 10⁴ buněk na jamku. Kultury byly pěstovány po dobu 48 hodin a poté bylo médium vyměněno za médium obsahující různé koncentrace tubulnsidu B nebo MPP+. Po inkubaci po dobu až 48 hodin a 72 hodin byl do 96-jamkových destiček přidán MTr roztok (5 mg/ml v DMEM) a buňky byly ponechány inkubovat 4 hodiny při 37 stupních. Poté, co bylo médium odstraněno, byly buňky a krystaly barviva solubilizovány přidáním 200 ul DMSO a absorpce byla měřena při 570 nm (540 nm jako reference) pomocí modelu 550 čtečky mikrodestiček (Bio-Rad). Životaschopnost buněk byla také analyzována za použití vylučovací metody trypanové modři. Buňky byly shromážděny, jemně peletovány a obarveny 0,6% roztokem trypanové modři po dobu 3 dešťů. Procento nezabarvených buněk bylo následně hodnoceno v deseti náhodně vybraných mikroskopických polích. Jako pozitivní lék bylo použito 100 ng/ml epidermálního růstového faktoru (EGF).
Detekce apoptózy průtokovou cytometrií
Apoptotické buňky byly detekovány průtokovou cytometrií pomocí propidium jodidu (PI) [11••]. Stručně řečeno, přibližně 1 x 1{7}}6 buněk inkubovaných s testovanými látkami bylo sklizeno centrifugací a jednou promyto PBS. Buňky byly fixovány 70 procentním ethanolem po dobu 24 hodin při - 20 stupni a jednou promyty PBS. Buňky byly poté resuspendovány ve 300 ul PBS obsahujícím 0,5 mg/ml RNázy a 0,5 mg/ml PI. Po další inkubaci po dobu 30 minut ve tmě byla provedena průtoková cytometrie pomocí FACScan (Becton Dickinson, Heidelberg, Německo).
Použili jsme Moorův protokol [12], který izoloval pouze fragmentovanou DNA a experimenty byly normalizovány použitím stejného počtu kultur z každé testovací skupiny. Stručně řečeno, 3 × 10⁶ neuronů z každého z ošetřených vzorků bylo promyto v Hankově vyváženém solném roztoku (1000g po dobu 10 minut) a pelety vytvořené na dně zkumavky byly homogenizovány s 1 ml lyzačního pufru (10 mM Tris při pH 7,4, 5 mM EDTA, 1 procento Triton X-100) po dobu 20 minut na ledu. Po centrifugaci při 11,000 g po dobu 20 deště při 4 stupních byly supernatanty obsahující fragmentovanou DNA odstraněny a štěpeny 20 mg/ml RNázy A při 37 stupních po dobu 1 hodiny a 0,1 mg/ml proteinázy K při 56 stupních na další 1 h. Fragmentovaná DNA byla extrahována pomocí fenolu a chloroformu a centrifugována při 10,000g po dobu 1 deště při 4 °C. Vodná fáze byla přenesena do nové Eppendorfovy zkumavky, smíchána se 2 objemy ledově vychlazeného ethanolu a poté umístěn na -20 stupeň po dobu alespoň 1 hodiny, aby se vysrážela DNA. Po centrifugaci při 15,000g po dobu 20 minut při 4 stupních byly odstraněny supernatanty a pelety DNA byly jednou promyty 80% ethanolem (15 000 g po dobu 15 minut při 4 stupních), vysušeny na vzduchu a rozpuštěny ve 20 μl TE pufr při pH 7,6. Celý vzorek byl poté podroben elektroforéze na 1,5% agarózovém gelu po dobu 1 hodiny při 85 V. Gel byl zkoumán a fotografován systémem Ultra Violet Products Gel Documentation System (GELDOC-2000, Bio-Rad, USA).
Měření intracelulární tvorby ROS
Tvorba intracelulárních peroxidů byla detekována konfokálním skenovacím laserovým mikroskopem za použití nefluorescenční sloučeniny, 2"7"-dichlorofluorescein diacetátu (DCFH-DA) [13], který je v buňkách esterifikován endogenními esterázami na ionizovanou volnou kyselinu, 2 ;7"-dichlorfluorescein. 2",7-Dichlorfluorescin je možné oxidovat na fluorescenční 2"7"-dichlorfluorescein (DCF) hydroantioxidanty. Buňky byly inkubovány s 10 uM DCFH-DA po dobu 30 minut při 37 stupních. Kultury byly dvakrát promyty Hankovým vyváženým solným roztokem a zobrazeny ve stejném médiu. Zobrazování bylo provedeno pomocí konfokálního skenovacího laserového mikroskopu, DCF byl excitován při 488 nm a emisním filtrem byl bariérový filtr 510 nm. Aby bylo zajištěno platné srovnání, byly pro všechna pozorování použity stejné parametry akvizice. Byla nastavena optimální vertikální poloha uprostřed buněk a poté bylo pole rychle skenováno. Protože osvětlení při excitační vlnové délce 488 nm způsobilo zvýšenou fluorescenci v důsledku oxidace tohoto barviva, bylo každé pole vystaveno světlu přesně na stejnou dobu. Výchozí hodnoty z nestimulovaných buněk byly použity jako kontrolní hodnoty pro srovnání s buňkami ošetřenými MPP v přítomnosti nebo nepřítomnosti tubulosidu B. Po skenování byla průměrná relativní intenzita fluorescence v 15-20 tělech neuronových buněk na pole mikroskopu kvantifikována ve čtyřech oddělené kultury podle podmínek léčby.

cistanche
Statistická analýza
Všechny získané hodnoty byly vyjádřeny jako průměr ± SD. Statistická významnost rozdílů mezi skupinami byla stanovena Studentovým t-testem; Vypočítané hodnoty p menší než 0,05 byly považovány za statisticky významné.
Výsledek
Jak je znázorněno na obr. 2, MPP plus vyvolalo na dávce závislé snížení životaschopnosti buněk PCI2. Naproti tomu EGF, dobře známý neurotrofický faktor, produkoval významnou ochranu buněčné životaschopnosti při 100 ng/ml MPP+-indukované cytotoxické účinky byly také oslabeny v přítomnosti tubulosidu B (5, 10, 50 nebo 100 ug-ml-1 ), i když s menší účinností než referenční lék (obr. 3). Tubulosid B v těchto koncentracích vykazoval cytoprotektivní účinky v závislosti na dávce a samotná sloučenina nezpůsobovala žádnou zjevnou cytotoxicitu (data nejsou uvedena). Gelová elektroforéza DNA extraktu z PCI 2 buněk ošetřených 200 uM MPP plus po dobu 48 hodin ukázala DNA laddering. klasický charakteristický znak apoptózy, tubulosid B, v dávkách 10 a 100 μg·ml-1upravená tvorba DNA žebříčku (obr.4) Obr.5 ukazuje typické histogramy průtokové cytometrické analýzy apoptotické buněčné smrti indukované MPP+ v buňkách PC12 v přítomnosti nebo nepřítomnosti tubulosidu B. Kvantifikace profilu buněčného cyklu pomocí PI odhalila počet cel se subdiploidními charakteristikami (oblast M1), které svědčí o fragmentaci apoptotické DNA. V neošetřených buňkách byla apoptotická subdiploidní frakce minimální až do 5.94% z celkových 10 000 buněk (obr. 5 A). Po 48 hodinách expozice MPP+ se procento apoptózy zvýšilo na 43.02;j;(obr..5 B)!. Když byl tubulosid B přidán do buněčné kultury, inhiboval MPP – indukovanou apoptózu způsobem závislým na dávce. Při koncentraci 10 ug·ml-1 nebyla ochrana tubulosidem B statisticky významná, ale při 50 a 1 00ug·ml-1 45%a 63%snížení. Bylo pozorováno zvýšení procenta přežívajících buněk (obr. 5D, E).

Akumulaci intracelulárních ROS lze detekovat použitím DCFH-DA.Buňky PC12 ošetřené 200 uM MPP+ po dobu 48 hodin vykazovaly intenzivní fluorescenci uvnitř buňky po obarvení barvivem DCFH-DA (obr. 6). Simultánní léčba tubulosidem B (v dávkách 10 a 100 ug·ml.) inhibovala produkci ROS indukovanou MPP+一 (snížené procento bylo 24.52%a 55.63%, v tomto pořadí).
Diskuse
Patogeneze PD zahrnuje silný oxidační stres, snížené hladiny antioxidantů a mitochondriální defekty. o všech je známo, že indukují apoptózu v několika buněčných systémech. Zejména bylo prokázáno, že volné radikály spouštějí aktivní buněčnou smrt v neuronech[14]. MPTP způsobuje ireverzibilní a závažný syndrom podobný parkinsonismu, který způsobuje selektivní degeneraci nigrostriatálních dopaminergních neuronů u lidí. Tento neurotoxin byl použit k vytvoření zvířecích modelů PD[15].MPTP je přeměněn monoaminooxidázou B na MPP+, který se akumuluje v mitochondriích. kde inhibuje mitochondriální komplex I a tyto mitochondriální dny. Funkce způsobuje apoptózu[16].Proto se MPP plus 一indukovaná neurotoxicita v dopaminergních neuronech široce používá jako etiologický model PD pro screening neuroprotektivních látek.
V této studii jsme prokázali, že buněčná smrt indukovaná MPP plus prostřednictvím oxidačního stresu v buňkách PC12 byla snížena tubulosidem B. Dále jsme prokázali, že tubulosid B také chránil způsobem závislým na dávce proti žebříčku DNA indukovanému MPP plus a apoptóza, jak je měřeno pomocí DNA gelové elektroforézy a průtokové cytometrické analýzy. Kromě toho současné ošetření vyššími koncentracemi tubulosidu B inhibovalo produkci ROS indukovanou MPP. Tubulosid B tedy prokázal multifunkční neuroprotektivní účinky. Na působení tubulosidu B se může podílet několik mechanismů, samostatně nebo ve spojení. Antioxidační účinek je možným mechanismem neuroprotekce zprostředkované tubulosidem B. Xiong Q zjistil, že tubulosid B vykazuje silnou aktivitu vychytávání volných radikálů na 1,1-difenyl-2-pikrylhydrazylovém radikálu a xanthin]xanthinoxidázou generovaný superoxidový aniontový radikál [6].
V nedávné době bylo popsáno několik fenylethanoidů, které mají vlastnosti zachycující volné radikály a chrání toxická poškození vyvolaná oxidačním stresem. ROS produkované MPP plus, jako je peroxid vodíku, superoxidový aniont a hydroxylový radikál, snadno poškozují biologické molekuly, což může nakonec vést k apoptické nebo nekrotické buněčné smrti. Tubulosid B tedy může mít přímé vychytávací účinky proti ROS. I když naše data nestanoví přesné místo, kde tubulosid B působí k potlačení akumulace ROS, naznačují, že neuroprotektivní mechanismus zahrnuje stimulaci cest antioxidantů. Studie molekulární struktury tubulosidu B také ukazuje, že má silnou schopnost vychytávat volné radikály (osobní komunikace).
Další mechanismy mohou být také relevantní. Tubulosid B může mít například schopnost působit proti toxicitě MPP+ inhibicí otevírání přechodových pórů mitochondriální permeability a dysfunkcí. Kromě toho je třeba zvážit, zda má tubulosid B přímý účinek na podporu růstu na neuronální buňky. Přesný mechanismus neuroprotektivního působení tubulosidu B zůstává nejasný. K objasnění úplného obrazu jeho neuroprotektivního účinku jsou zapotřebí další studie.
Tubulosid B z extraktu Cistanche salsa má evidentní ochranné účinky na apoptózu indukovanou MPP plus a oxidační stres. Jeho neuroprotektivní účinky proti MPP + toxicita mohou být důležité a naznačují, že může mít terapeutický potenciál v prevenci a léčbě PD.
léčba PD: cistanche
Reference
7. Xiong Q, Tezuka Y, Kaneko 1", Li H, Tran LQ Hase K, Namba T, Kadota S. Inhibice oxidu dusnatého fenylethanoidy v aktivovaných makrofázích. Eur J Pharmaco12000; 400:137 –44
8. Greene LA, Tischler AS. Vytvoření noradrenergní klonální linie buněk adrenálního feochromocytomu, které reagují na nervový růstový faktor. Proč Nat Acad Sci 1976; 73:2424-8
9. Yao Z, Drieu K, Szweda LI, Papadopoulos V. Volné radikály a peroxidace lipidů nezprostředkovávají -amyloidem indukovanou smrt neuronových buněk. Brain Res 1999; 847: 203- 10
10. Yamamoto T, Yuyama K, Nakamura K, Kato T, Yamamoto H. Kinetická charakterizace toxicity oxidu dusnatého pro buňky PC12: vliv poločasu uvolňování NO. Eur J Pharmacol 2000; 397:25-33
11. Nicoletti l, Migliorati G, Pagliacci MC, Grignani E Riccardi C. Rychlá a jednoduchá metoda měření apoptózy thymocytů barvením propidium jodidem a průtokovou cytometrií. J Immunol Methods 1991; 139: 271-9
12. Moore KJ, Matlashewski C. Intracelulární infekce Leishmania do nova inhibuje apoptózu makrofágů. J Immunol 1994; 152: 2930- 7
13. Mark RJ, Keller JN, Kruman I, Mattson MP. Bazický FGF tlumí oxidační stres vyvolaný amyloidním peptidem, mitochondriální dysfunkci a narušení aktivity Na+-K+-ATPázy v hipokampálních neuronech. Výzkum mozku 1997; 756: 205-14
14. Merad-Boudia M, Nicole A, Santiard-Baron D, Saille C, CeballosPicot L Mitochondriální poškození jako časná událost v procesu apoptózy indukované deplecí glutathionu v neuronových buňkách: význam pro Parkinsonovu chorobu. Biochem Pharmaco 11998; 56: 645-55
15. Langston JW, Ballard P, Tetrud JW, Irwin I. Chronický parkinsonismus u lidí způsobený produktem syntézy analogů meperidinu. Science 1983; 219:979-80
16. Mizuno Y, Sone N, Suzuki K, Saitoh T. Studie toxicity 1-me ethyl-4-fenylpyridiniového iontu (MPP +) proti mitochondriím myšího mozku. J Neurol Sci 1988; 86: 97-110


