

Účinky omezení kalorií na autofagii: Role v intervencích proti stárnutí
May 06, 2022
prosím klikněteoscar.xiao@wecistanche.comPro více informací
Abstraktní:Autofagie je důležitý úklidový proces, který udržuje správnou buněčnou homeostázu za normálních fyziologických a/nebo patologických podmínek. Je zodpovědný za likvidaci a recyklaci metabolických makromolekul a poškozených organel prostřednictvím rozsáhlých lysozomálních degradačních procesů. Za stresových podmínek, včetně nedostatku živin, je autofagie podstatně aktivována, aby byla zachována správná funkce buněk a podporováno přežití buněk. Změněné procesy autofagie byly hlášeny v různých studiích stárnutí a dysregulovaná autofagie je spojena s různými nemocemi spojenými s věkem. Omezení kalorií (CR) je považováno za zlatý standard mnoha intervenčních metod stárnutí. Ačkoli je jasné, že CR má různé účinky v boji proti procesu stárnutí, přesné mechanismy, kterými tyto procesy moduluje, jsou stále kontroverzní. Nedávné pokroky ve výzkumu CR naznačují, že aktivace autofagie je spojena s pozorovanými prospěšnými účinky proti stárnutí. Důkazy ukázaly, že CR vyvolal silnou autofagickou odpověď v různých metabolických tkáních a že inhibice autofagie zeslabila účinky CR proti stárnutí. Mechanismy, kterými CR moduluje komplexní proces autofagie, byly do hloubky prozkoumány. V tomto přehledu bude diskutováno několik významných pokroků souvisejících s anti-agingovými mechanismy ČR a anti-aging mimetiky se zaměřením na modifikaci autofagické reakce.
klíčová slova:stárnutí; autofagie;omezení kalorií (CR); CR mimetikum
1. Úvod
1.1. Proces autofágie
Autofagie je evolučně dobře konzervovaný proces, který se vyskytuje ve všech eukaryotických buňkách od kvasinek po člověka [1]. Vysoce komplexní signální dráhy související s autofagií byly rozsáhle studovány za posledních 30 let a byly objasněny prostřednictvím kombinovaného studia genetiky a fyziologie u různých druhů [2]. Dosud byly identifikovány nejméně tři různé formy autofagie: makroautofagie, mikroautofagie a autofagie zprostředkovaná chaperony. Všechny tři formy závisí na lysozomální degradaci, přičemž makroautofagie (dále jen autofagie) je nejrozšířenější formou. Po aktivaci autofagie zahrnuje sekvestraci cytosolických složek (poškozené buněčné organely, proteiny nebo jiné makromolekulové živiny) fagofory, které dozrávají na autofagozomy, což jsou dvoumembránové vezikuly [2,3]. Autofagozomy se dále translokují a fúzují s kyselým lysozomem a tvoří autolysozom, kde dochází k degradaci a recyklaci. Různé substráty a bazální aktivita těchto procesů naznačují, že buňky jsou na nich vysoce závislé při udržování buněčné homeostázy. Důležitost udržení adekvátní autofagické odpovědi byla prokázána za fyziologických i patologických podmínek [4].

prosím klikněte sem a dozvíte se více
1.2. Molekulární strojní zařízení procesu autofagie
Rozsáhle byly studovány molekulární mechanismy a signální dráhy řídící autofagii [5]. Autofagie začíná de novo produkcí autofagozomových komponent, po které následuje sestavení řízené společným působením skupiny proteinů pojmenovaných ATG (autophagy-related genes). Protože podrobný molekulární aparát procesu autofagie byl dříve popsán v několika přehledových článcích, v tomto přehledu budou diskutovány pouze jeho celkové rysy. Na začátku procesu autofagie je iniciována tvorba fagoforu z rozhraní endoplazmatického retikula (ER)-mitochondrie a další prodlužování fagoforu závisí na Golgiho a plazmatické membráně. Progrese tvorby autofagozomů je do značné míry charakterizována náborem ATG proteinů do fagoforu [6].
Tvorba UMC-51-kinázy 1 (ULK1, homologní s kvasinkovými ATG1) komplexy je nejčasnější událostí při tvorbě autofagosomu. Aktivace ULK1 leží proti směru náboru jiného proteinu ATG a aktivita kinázy ULK1 je nutná pro nábor komplexu VPS34 (PI3-kináza třídy III) do fagoforu. To je klíčové pro fosforylaci fosfatidylinositolu (PtdIns) a následnou produkci PtdIns 3-fosfátu. Další nábor proteinů vázajících fosfolipidy do fagoforu je důležitý pro stabilizaci proteinových komplexů v blízkosti místa tvorby autofagosomu. V procesu prodlužování vezikuly jsou zapojeny dva konjugační systémy. Konjugace ATG5 na komplex ATG12 vyžaduje konjugační systém podobný ubikvitinu zahrnující ATG7 a ATG10.citrusové bioflavonoidyKonjugované komplexy ATG5-ATG12 jsou potřebné k další konjugaci fosfoethanolaminu (PE) na ATG8 (lehký řetězec 3 proteinu asociovaného s mikrotubuly; LC3). Pro tento proces konjugace jsou nutné ATG4, ATG7 a ATG3. Předpokládá se, že konverze LC3 z LC3-I (rozpustná forma) na LC3-II (forma spojená s vezikuly) PE konjugací je nezbytná pro uzavření expandující autofagozomální membrány. Nakonec je zralý autofagozom fúzován s lysozomem, aby se splnil hlavní účel procesu, který kulminuje degradací a recyklací substrátů v autofagozomu.
1.3. Autofagie je regulována signalizací snímání živin
Autofagický proces indukuje řada fyziologicky důležitých stimulů, včetně poškození organel (ER, mitochondrie), hypoxie a zánětu [2]. Avšak živiny a energetický stres jsou nejsilnějšími regulátory procesu autofagie [7]. Změny v buněčném energetickém stavu, jako je odebrání živin, jako je glukóza a aminokyseliny, indukují aktivaci procesu autofagie, od zahájení až po ukončení [8]. Hladiny živin mohou být přímo rozpoznány protisměrným signálním mechanismem autofagie, aby se regulovalo její zahájení v reakci na měnící se hladiny buněčné energie (obrázek 1).

Cistanche může působit proti stárnutí
Ze všech signálních molekul spojených s živinami se savčí cíl rapamycinu (mTOR) ukázal jako jeden z klíčových upstream modulátorů autofagické signalizace [9,10]. mTOR je vysoce konzervovaná serin/threonin kináza, která je regulována četnými signály včetně energetických hladin, růstových faktorů a dalších buněčných stresorů, aby koordinovala buněčnou proliferaci/růst a udržovala energetickou homeostázu. mTOR tvoří komplex, který je známý jako mTORC1 (mTOR komplex1) a mTORC2 (komplex mTOR 2).mTORC1 souvisí se změnami autofagické signalizace a je aktivován v přítomnosti živin nebo růstových faktorů. mTORC1 je obvykle aktivován za podmínek bohatých na živiny ]11. Může být přímo aktivován zvýšenou koncentrací aminokyselin v buňce nebo jako downstream signalizace působením růstových faktorů [11,12]. Po aktivaci mTORC1 přímo fosforyluje ULK1[13]. Rozhodující je, že aktivace mTORC1 je dostatečná k inhibici autofagie v přítomnosti dostatečného množství živin [14]. Přímá represe kinázy ULK1 pomocí mTORC1 je také dobře konzervovaná napříč druhy [15]. Ostatní složky komplexu ATG přímo interagují s mTORC1 a potlačují proces autofagie [16]. Kromě toho může mTORC1 nepřímo potlačit autofagii řízením biogeneze lysozomů [17,18]. Transkripční faktor EB (TFEB) je zodpovědný za transkripci lysozomálních genů a genů souvisejících s autofagií[19]. Fosforylace TFEB zprostředkovaná mTORC1- snižuje jeho transkripční aktivitu, a tím snižuje celkovou expresi genové exprese související s autofagií [20,21].
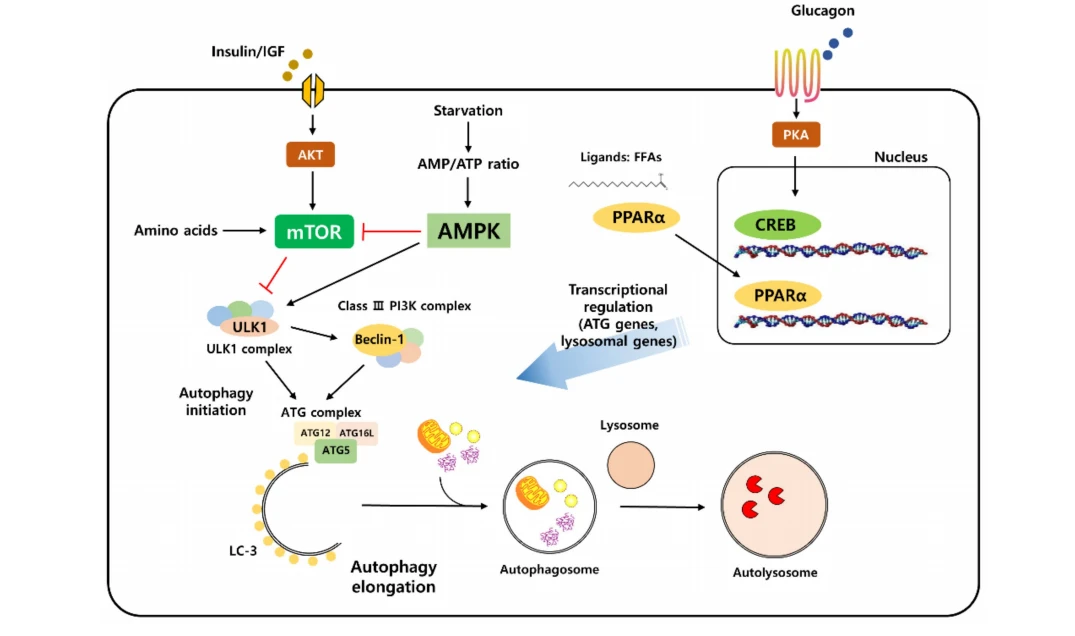
Obrázek 1. Autofagie je regulována signalizací snímání živin. Autofagická signalizace je modulována především signálními cestami snímajícími živiny. Inzulin a IGF (insulin-like growth factor) indukují aktivaci savčího cíle signalizace rapamycinu (mTOR) a inhibují iniciaci autofagie. Aktivace AMP-aktivované proteinkinázy (AMPK) zvýšeným poměrem AMP/ATP během hladovění přímo zvyšuje autofagii a inhibuje komplex mTOR. Aktivace CRE-binding proteinu (CREB) glukagonovou signalizací a aktivace receptoru aktivovaného peroxisomovým proliferačním faktorem (PPAR) jeho ligandy zvyšuje úroveň genové transkripce autofagie a proteinů souvisejících s lysozomy.

Za podmínek nedostatku živin je aktivace autofagie regulována několika dobře známými signálními proteiny citlivými na živiny. Jedním z nejvýznamnějších hráčů ve snímání nedostatku živin je proteinkináza aktivovaná AMP (AMPK)[13,22]. Molekulární poměr ATP k AMP odráží energetické hladiny buňky a zvýšené hladiny AMP představují vnitřní varovný systém buňky, který přiměje buňku šetřit energii pro udržení metabolické homeostázy. AMP je přímo snímána pomocí AMPK a aktivovaná AMPK byla charakterizována a bylo prokázáno, že má mnoho funkcí při regulaci buněčného metabolismu. Existuje několik mechanismů, kterými AMPK indukuje autofagii. Za prvé, AMPK přímo fosforyluje ULK, což je proces, který je nutný pro aktivaci ULK1 a zahájení autofagie za podmínek nedostatku živin[13]. Interakce mezi AMPK a ULK1 může být blokována fosforylací ULK1 zprostředkovanou mTORC1-, což ukazuje na složité spojení mezi těmito dvěma cestami. Za druhé, AMPK je negativní regulátor signální dráhy mTOR [23]. Mechanicky AMPK přímo fosforyluje komplex spojený s tuberkulózou (TSC), který je negativním regulátorem aktivace mTORC1. AMPK také přímo fosforyluje podjednotku Raptor komplexu mTORC1, čímž zvyšuje degradaci komplexu mTORC1. Tyto studie jasně ukázaly, že AMPK, kritický regulátor dostupnosti živin, je schopen regulovat autofagickou aktivitu koordinací mTOR-dependentních a nezávislých mechanismů.
1.4.Autofagie a stárnutí
Stárnutí je spojeno s různými změnami včetně genomové nestability, ztráty proteostázy, epigenetických změn a deregulovaných drah snímání živin [24]. Tyto změny jsou také spojeny s řadou onemocnění souvisejících s věkem, včetně kardiovaskulárních onemocnění, neurodegenerativních onemocnění a metabolických onemocnění. Mezi změnami, ke kterým dochází během stárnutí, jsou některé spojeny se signálními cestami souvisejícími s autofagií [24,25]. Pokles celkové proteolytické aktivity a změněná signalizace snímání živin je přímo spojena s autofagií. Snížená autofagie se stárnutím byla skutečně široce hlášena u široké škály organismů, kde bylo prokázáno, že dochází k progresivní akumulaci poškozených proteinů a buněčných organel [26].výhody cynomoriumSnížená hladina genových transkriptů a proteinů souvisejících s autofagií byla detekována u háďátek a vrtulí [27-29]. Stárnuté tkáně savců a lidí také vykazovaly nižší expresi klíčových autofagických proteinů [30-32]. V souladu se změnami v hladinách autofagických komponent nedávné studie dále prokázaly sníženou celkovou autofagickou kapacitu během stárnutí u C.elegans [33]. Pozorování elektronovou mikroskopií ukázala s věkem související akumulaci autofagických vakuol, což představuje zablokování toku autofagie. Podobně je během procesu stárnutí narušena celková aktivita proteolýzy a v játrech u starých potkanů byly detekovány dlouhotrvající proteiny, které nebyly správně degradovány [34].
Další pozoruhodné důkazy mezi stárnutím a autofagií pocházejí z několika genetických modelů narušené autofagie. Nezaujatý screening faktorů stárnutí u kvasinek, háďátek a ovocných mušek odhalil krátkotrvající mutanty s defekty v autofagii [27,35,36]. Navíc u knockoutovaných myší vedla celotělová delece genů souvisejících s autofagií k časné postnatální smrti, což ukazuje na zásadní roli autofagie v celkovém udržování fyziologických procesů [37-39]. Tkáňově specifické modely podmíněně knockoutovaných myší také odhalily mnohočetné fenotypy stárnutí, včetně agregace a akumulace intracelulárních proteinů, buněčných organel a dalších makromolekul [40-43]. Ztráta autofagické aktivity v těchto modelech pravděpodobně stále více omezuje schopnost buněk udržovat kontrolu kvality, což vede k akumulaci toxických inzultů a vede ke stárnutí a patologickým stavům souvisejícím s věkem [3]. Na druhou stranu, hromadící se důkazy naznačují, že experimentálně vylepšená autofagie prodlužuje životnost a oddaluje stárnoucí fenotyp. Nadměrná exprese specifických autofagických genů může prodloužit životnost několika druhů. Upregulace autofagické aktivity může prodloužit dlouhověkost u C.elegans, stejně jako u kvasinek, zatímco všudypřítomná nadměrná exprese Atg5 u myší je dostatečná ke stimulaci autofagie a prodloužení životnosti [44,45]. Souhrnně tato pozorování naznačují, že změny v autofagické aktivitě mohou být spojeny s dlouhověkostí a že rozšíření autofagické funkce může být účinným přístupem k oddálení stárnutí a podpoře dlouhověkosti u různých druhů, včetně savců.
Mechanismy, kterými se složky autofagie nebo autofagické procesy s věkem snižují, zůstávají nejasné. Vzhledem k tomu, že proces autofagie, od zahájení až po dokončení, je složitý a je spojen s různými kroky a různými proteiny, je pravděpodobné, že mechanismy přispívající k poklesu autofagie související s věkem jsou multifaktoriální. Nejpravděpodobnějším regulačním mechanismem přispívajícím k potlačení autofagie při stárnutí je změna v upstream signalizaci během iniciace autofagie. V regulaci iniciace autofagie hrají důležitou roli dva důležité proteiny snímající živiny, mTOR a AMPK [10,13]. Kromě toho tyto faktory odrážejí stav buňky, jako je hormonální regulace (mimo buňku) a nutriční stres (uvnitř buňky). Živinový senzor mTOR silně inhibuje nejen iniciaci autofagie, ale má také inhibiční účinek na více kroků v procesu autofagie. Je možné, že zvýšená signalizace mTOR během stárnutí hraje důležitou roli v potlačení autofagie související s věkem. Vzhledem k tomu, že zvýšená aktivita mTOR byla hlášena u různých onemocnění souvisejících s věkem, včetně metabolických a degenerativních poruch, je pravděpodobné, že zvýšená signalizace mTOR je převládající příčinou downregulace celkového procesu autofagie [46]. Na rozdíl od mTOR, který je obvykle hyperaktivován během stárnutí, je aktivita nebo exprese AMPK typicky potlačena [47]. Je pravděpodobné, že snížená AMPK by mohla ovlivnit nebo potlačit autofagii a působit ve shodě s mTOR. Za tímto účelem, ačkoli mechanismy narušující autofagickou signalizaci během stárnutí jsou multifaktoriální, je jasné, že modifikace v jeho upstream drahách jsou kritické pro jeho regulaci.

Dalším možným mechanismem zodpovědným za sníženou autofagii pozorovanou při stárnutí je transkripční regulace. TFEB byl dříve popsán jako regulátor transkripce genu souvisejícího s autofagií; nedávné studie však odhalily další důležité transkripční faktory, které regulují genovou expresi proteinů souvisejících s autofagií. Protein vázající transkripční faktor CRE nalačno (CREB) je upregulován glukagonem za podmínek nedostatku živin a také upreguluje expresi autofagických genů včetně ATG7, ULK1 a TFEB. Kromě CREB receptor aktivovaný peroxisomovým proliferačním faktorem (PPAR), další transkripční faktor, který hraje roli při hladovění, také řídí transkripci autofagických genů [19,4849]. Oba transkripční faktory mohou působit ve shodě ke zvýšení genové exprese související s autofagií. Genetická delece obou transkripčních faktorů redukovala autofagii a vedla k nedostatečné metabolické odpovědi, zejména při nedostatku živin. Ačkoli neexistují žádné přímé důkazy o tom, zda hrají roli v defektní autofagii během stárnutí, existují určité důkazy, že jsou důležité a dysregulované během stárnutí [50-52]. K odhalení vztahu mezi těmito transkripčními faktory a defektní autofagií během stárnutí budou nutné další studie.
2. Omezení kalorií (CR) moduluje procesy autofagie
2.1. Úvod do omezení kalorií
Omezení kalorií (CR) se ukázalo jako zavedená metoda prodloužení života regulující nemoci související s věkem i stárnutí samotné.pouštní hyacintAčkoli se liší metodika (obvykle 20 procent -40 procent ad libitum příjem, 40 procent snížení ve většině případů), CR prokázala prodlouženou životnost u široké řady druhů od kvasinek po subhumánní primáty a podporuje zdravé stárnutí člověka [ 53]. Kromě toho má CR preventivní účinky na různé stavy související s věkem, jako je rakovina, neurodegenerativní onemocnění, kardiovaskulární a další metabolická onemocnění [54]. Různá účinnost CR v boji proti stárnutí a nemocem souvisejícím s věkem z něj učinila zlatý standard intervenčních studií stárnutí. Ačkoli anti-aging účinky CR jsou reprodukovatelné, přesné mechanismy, jak CR uplatňuje své anti-aging účinky, jsou diskutabilní, protože CR reguluje několik různých aspektů fyziologie. Tyto změny zahrnují modifikace v energeticky citlivé signalizaci, oxidační stres, zánět a další mezibuněčné a intracelulární procesy. Mezi mnoha změnami vyvolanými CR jsou produkce a využití energie nejpříměji regulovanou signalizací vyvíjenou CR[55,56]. Protože snížený příjem energie a změny nutričního stavu po CR mohou změnit molekulární signální dráhy spojené s mechanismy snímání energie, mohou být sekundárními účinky tohoto procesu i jiné mechanismy.
2.2. Důkazy pro příznivé účinky autofagie zprostředkované CR
Na základě indukčního mechanismu autofagie a její role během hladovění bylo předpovězeno, že CR může indukovat autofagický proces. V mnoha různých nastaveních podmínek nedostatku živin, včetně CR, je autofagie indukována k regulaci homeostázy organismu. Ačkoli je jasné, že CR představuje silný fyziologicky autofagický induktor, není jisté, zda autofagie přispívá k účinkům CR proti stárnutí. Nedávno několik studií ukázalo, že indukce autofagie byla zásadní pro účinky CR proti stárnutí (tabulka 1).Metoda extrakce flavonoidů pdfBylo prokázáno, že CR podporuje dlouhověkost nebo chrání před hypoxií prostřednictvím procesu indukce autofagie závislém na Sirtuinovi -1- [57,58]. Další studie také ukázala, že prodloužení života restrikcí methioninu vyžaduje aktivaci autofagie[59]. Rostoucí důkazy podporují názor, že autofagie má podstatnou roli v příznivých účincích CR[60,61]. Kromě výzkumu dlouhověkosti prokázaly další studie, že CR robustně indukuje autofagii za různých fyziologických a patologických podmínek a že má ochranný účinek na udržení normálních funkcí v organismu. V následující části bude diskutována ochranná role autofagie v podmínkách CR.

Tabulka 1. Studie ukazují ochranné účinky autofagie vyvolané omezením kalorií (CR) v různých orgánech. LC3: lehký řetěz 3.
Tento článek je Živiny 2019, 11, 2923; doi:10.3390/nu11122923 www.mdpi.com/journal/nutrients


