Příznivé účinky extraktu z Cistanche Tubulosa na zlepšení nízké střevní propustnosti echinakosidu (ECH) a akteosidu (ACT).
Mar 25, 2022
Kontakt: Audrey Hu Whatsapp/hp: 0086 13880143964 E-mail:audrey.hu@wecistanche.com
Tadatoshi Taninoa, Noriaki Nagaib a Yoshinori Funakamib
* Farmaceutická fakulta, Tokushima Bunri University, Tokushima a b Farmaceutická fakulta, Kinki University, Osaka, Japonsko
Abstraktní
CíleCílem této studie bylo zabývat se příznivými účinkyCistanchetubulosavýpisna zlepšení nízké střevní permeability echinakosidu (ECH) a akteosidu (ACT).MetodyAbsorpce ECH a ACT v extraktu C. tubulosa byla charakterizována pomocí monovrstev lidských střevních Caco{0}} buněk s intaktními sloučeninami. Absorpce ECH a ACT závislá na glukózovém transportéru byla potvrzena in-situ intestinální perfuzní technikou.Klíčové poznatkyZdánlivá permeabilita (Papp) se významně nelišila mezi intaktní ECH a intaktní ACT. V přítomnosti floridzinu byl Papp ECH a ACT ve vysoké dávce snížen na 20 procent příslušného neléčeného stavu, ale nebyl ovlivněn phloretinem a verapamilem. Extrakt C. tubulosa v nízkých a vysokých dávkách zvýšil Papp ECH a ACT (obojí trojnásobně), což má za následek jejich velkou účast na na sodíku závislé absorpci glukózy nezávislé na transportéru. Při nízké koncentraci byly souběžné hladiny ECH a ACT v portální krvi významně potlačeny floridzinem.ZávěrDietní a léčivé C.tubulosavýpiszvýšení intestinální absorpce ECH a ACT může sloužit k lepšímu řízení lidského zdraví, ačkoli zapojení transportu citlivého na floridzin by mělo být sníženo.
Klíčová slovaakteosid; monovrstvy buněk Caco{0}};Cistanchetubulosavýpis; echinakosid; transportér glukózy citlivý na floridzin
Úvod
KořenyCistanchetubulosase tradičně používaly v lékařství a potravinářství. Je známo, že extrakt C. tubulosa má farmakologické účinky při různých mozkových onemocněních, funkcích proti stárnutí, metabolismu tuků a růstu vlasů.[1–4] Nedávno byly z C. tubulosa izolovány iridoidy, monoterpenoidy, fenylethanoidní glykosidy a lignany. . [5,6] Fenylethanoidové glykosidy, třída polyfenolických sloučenin, jsou hlavními chemickými složkamiCistanchedruhů,[7] ačkoli jejich množství se u různých druhů liší. Echinakosid (ECH; obrázek 1) je jedním z hlavních fenylethanoidových glykosidů v Herba Cistanchis. Je hydrolyzován na akteosid (ACT; také nazývaný verbascosid) enzymy bakteriálního původu v tlustém střevě.[8,9] ECH a ACT mají u hlodavců příznivou aktivitu hepatoprotekce[10] a protizánětlivého[11]. Překvapivě vysoce ve vodě rozpustná ECH zlepšuje behaviorální a neurochemické výsledky u myšího modelu Parkinsonovy choroby a inhibuje aktivaci kaspázy-3 a kaspázy-8 v neuronech cerebelárních granulí.[9] Je dobře známo, že hematoencefalická bariéra přísně omezuje vstup a distribuci xenobiotik do mozku z krve. Wu a kol. [12] také ukázali, že ve vodě rozpustný ACT byl rychle distribuován v mozkových tkáních potkanů. Proto mohou být ECH a ACT transportovány do mozku, střev a jater specifickým systémem (systémy).

Obrázek 1 Chemické struktury echinakosidu a akteosidu.
Ačkoli existují silné důkazy, které naznačují, že konzumace extraktu C. tubulosa je prospěšná pro lidské zdraví, propustnost čistého ECH přes monovrstvy Caco{{0}} buněk při apikální koncentraci 8,4 ± 1,6 ug/ml je stejný nebo nižší než paracelulární transportní marker manitol.[13] Když je čistá ECH podávána perorálně potkanům (dávka, 1{{10}}}0 mg/kg), absorpce je extrémně rychlá (Tmax, 15 min) a maximální koncentrace v séru je velmi nízká (Cmax, 0,61 ± 0,32 ug/ml).[14] Absolutní biologická dostupnost ECH je pouze 0,83 procenta. Podobně, když jsou Caco-2 buňky inkubovány s fenolickou frakcí částečně purifikovanou z odpadní vody z olivového mlýna, čistý příjem ACT je rychlý s vrcholem akumulace po 30 minutách a celkovou účinností akumulace 0,1 procenta, intracelulární hladiny 130 pmol/mg buněčného proteinu.[15] U potkanů bylo maximální koncentrace (0,13 ± 0,03 ug/ml) čistého ACT dosaženo do 30 minut po perorálním podání 100 mg/kg[12], což znamená rychlou střevní absorpci. Perorální biologická dostupnost ACT, stejně jako ECH, je poměrně nízká (0,12 ± 0,04 procenta), což naznačuje možnost účinků prvního průchodu ve střevním traktu a játrech. V potkaní žluči jsou hlavními metabolity methylační a glukuronidační konjugáty ECH,[16] ačkoli rozsah jaterního metabolismu zůstává nejasný. Předběžně jsme zjistili, že ECH a ACT byly docela stabilní v homogenátech krysí střevní sliznice a umělé žaludeční kyseliny (data nejsou uvedena). Najar a kol. [17] prokázali, že ACT inhibuje aktivitu P-glykoproteinu (P-GP)-ATPázy podobným způsobem jako verapamil (reprezentativní inhibitor P-gp), což znamená modulátor P-gp; není však jisté, zda je ACT dostupný jako substrát P-gp. Je zajímavé, že nedávné objevy dietních flavonoidů-D-glukosidů ukázaly, že protein multidrug rezistence (MRP2) maskoval na sodíku závislý glukózový transportér (SGLT)1- zprostředkovaný příjem kvercetin 4'-O- -glukózy, [18,19], který je zodpovědný za velmi špatnou absorpci. Velmi málo je však známo o citlivosti polyfenolických glukosidů na absorpční transportéry, včetně transportérů glukózy. Informace o absorpčních charakteristikách kvercetin 4′-glukosidu a rychle propustná ECH hematoencefalickou bariérou nás vedly k prozkoumání vychytávání fenylethanoidových glykosidů v dietním extraktu C. tubulosa citlivého na transportér.
V této studii jsme zkoumali absorpci intaktní ECH a ACT zprostředkovanou glukózovým transportérem pomocí monovrstev lidských střevních Caco-2 buněk. Současně byl absorpční transport ECH a ACT konkomitantní v dietním extraktu C. tubulosa charakterizován in vitro modelem a in-situ střevním perfuzním systémem s portálním odběrem krve, který může snadno rozlišit mezi rozsahem absorpce a vyhnutím se hepatickému -průjezdní dispozice.
Materiály a metody
Materiály
Intact ECH a ACT byly štědré dary od společnosti Eishin Trading Co., Ltd (Osaka, Japonsko). Phloridzin a phloretin byly zakoupeny od Tokyo Kasei Co., Ltd. (Tokio, Japonsko). Verapamil a kyselina p-kumarová, používané jako vnitřní standardy pro vysokoúčinnou kapalinovou chromatografii (HPLC), byly získány od Sigma-Aldrich (St Louis, MO, USA). Všechny ostatní použité chemikálie byly analytické čistoty a byly komerčně dostupné.
Rostlinný materiál a příprava methanolického extraktu
C. tubulosa (SCHRENK) R. WIGHT (Orobanchaceae) je vytrvalá parazitická rostlina rostoucí na kořenech druhů Salvadora nebo Calotropis a rozšířená v severoafrických, arabských a asijských zemích. Sušené stonky C. tubulosa byly rozdrceny na prášek a extrahovány třikrát methanolem pod zpětným chladičem po dobu 3 hodin. Odpaření rozpouštědla za sníženého tlaku poskytlo methanolický extrakt. Metanolový extrakt (komerční jakost, šarže č. 20070130;
obchodní název Sabaku Ninnjinn Kanka) byl velkorysým darem od Eishin Trading Co., Ltd prostřednictvím Muraoka a Morikawa (Kinki University, Japonsko) a botanickou identifikaci provedl profesor Jia Xiaoguang v Sin-ťianském institutu tradiční čínštiny a čínštiny. Etnologické léky.
Analýza rostlinného extraktu: chromatografie
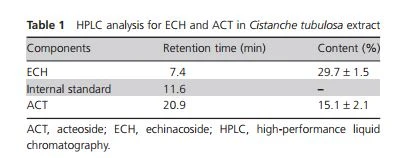
Stanovili jsme obsahy ECH a ACT v extraktu C. tubulosa (šarže č. 20070130) pomocí HPLC analýzy popsané níže. Získaná data jsou uvedena v tabulce 1.
Buněčná kultura
Buňky Caco{{0}}, zakoupené od American Type Culture Collection (ATCC, Rockville, MD, USA), byly použity v pasážích 38–53. Byly pěstovány v kultivačním médiu sestávajícím z Dulbeccova modifikovaného Eagleova média (DMEM, Nacalai Tesque Co., Kyoto, Japonsko) doplněného o 0,1 mM neesenciální aminokyseliny, 10 procent tepelně inaktivovaného fetálního hovězího séra, 100 U/ml penicilinu G a 0,1 mg/ml streptomycin sulfátu.
Dopravní studie
Buňky Caco{0}} byly naneseny v hustotě 6,4 × 10³ buněk/cm2 na polykarbonátové filtry. Monovrstvy byly použity pro transportní experimenty 21–25 dní po vysetí. Neporušené ECH a ACT, které byly ekvivalentní jejich obsahu vCistanchetubulosa výpis(4.5 and 13.5 mg/ml) were mixed with DMEM medium containing 0.5% dimethylsulfoxide to maintain the integrity of the cell monolayer over the periods of the experiments. Intact ACT equivalent to ECH content in the extract was also dosed in the incubation medium. The extract was suspended in a DMEM medium and was centrifuged to remove insoluble components. Supernatants were loaded to the apical side. At the indicated times, an aliquot of the incubation medium was withdrawn from the basolateral side and was mixed with acetonitrile containing an internal standard for the assay. In separate experiments, phloridzin (fifinal concentration, 1 mM) and verapamil (fifinal concentration, 0.2 mM) was added to the apical side of the monolayer; however, phloretin (fifinal concentration, 0.3 mM) was treated on both sides of the monolayer. The integrity of monolayers was monitored by transepithelial electrical resistance (TEER) using Millicell-ERS (Millipore, Bedford, MA, USA) before and after transport experiments. TEER values of monolayers used were >300 Ω·cm2.

In-situ střevní perfuze
Samci potkanů Wistar (23{{20}}–250 g) byli získáni od SLC Japan (Hamamatsu, Japonsko). Zvířata byla chována v klimatizované místnosti v 12hodinovém cyklu světlo/tma po dobu 1 týdne před použitím. Krysy byly krmeny standardní laboratorní potravou (Oriental Yeast Co., Ltd., Tokio, Japonsko) vodou ad libitum a před testem byly přes noc hladověny. Studie in situ recirkulační perfuze byla provedena podle modifikovaného postupu popsaného Miharou et al. [20] Stručně řečeno, krysy byly anestetizovány 25% uretanovým roztokem (1 mg/kg), aby se zabránilo poklesu krevního tlaku. Byla provedena střední čára břišní incize a bylo obnaženo tenké střevo. Žlučovod byl podvázán, aby se zabránilo sekreci žluči do perfuzátu. Celé tenké střevo jako jeden segment (od dvanácterníku po ileum) bylo proplachováno normálním fyziologickým roztokem při 37 stupních po dobu 10 minut, dokud se výplach neobjevil čirý. Skleněné hadičky spojené se silikonovými hadičkami byly poté kanylovány do obou konců tenkého střeva a zajištěny šicím závitem. Poté bylo tenké střevo nahrazeno v břiše a kanyly byly připojeny k peristaltické pumpě. Portální žíla byla kanylována polyethylenovou hadičkou (PE10). Komerčně dostupný extrakt C. tubulosa byl suspendován v Krebs-Henseleitově hydrogenuhličitanovém pufru (pH 7,4), čímž byla získána konečná koncentrace 4,5 mg/ml a byl centrifugován po dobu 10 minut při 8000 otáčkách za minutu, aby se odstranily nerozpustné složky. Supernatant v nepřítomnosti nebo přítomnosti floridzinu (1 mM) byl znovu shromážděn do rezervoáru, který byl v průběhu experimentu udržován při teplotě 37 ± 0,5 stupně. V uvedených časech byla krev odebrána kanylou portální žíly. Po odstředění krevních vzorků byla výsledná plazma deproteinována acetonitrilem obsahujícím vnitřní standard a byla odstředěna při 3000 ot./min. Supernatanty byly odpařeny a zbytek byl rozpuštěn v mobilní fázi sestávající z acetonitrilu a 0,5% kyseliny octové. Smíšený roztok byl nanesen na HPLC kolonu. Krysy byly použity v souladu s etickými postupy podle Směrnic pro péči a použití laboratorních zvířat vydaných japonskou vládou a Kinki University.
HPLC analýza
HPLC analýza byla provedena na systému vybaveném Shimadzu SPD{{0}}A, UV detektorem, Shimadzu LC-10A pumpou a Shimadzu C-R4A chronotopickým integrátorem (Kyoto, Japonsko). ECH a ACT byly separovány pomocí kolony Inertsil ODS (5 μm, 4,6 × 15 0 mm, GL Sciences Inc., Osaka, Japonsko). Byla použita mobilní fáze acetonitrilu a 0,5% kyseliny octové v poměru 15:85 (obj./obj.) při průtoku 1,0 ml/min. Detekce byla provedena při 334 nm.
Kinetická analýza
Zdánlivé koeficienty propustnosti (Papp) byly odhadnuty ze sklonu lineární části časového průběhu transportu sloučeniny přes monovrstvy buněk Caco{0}} takto:
Papp{{0}} (dQ/dt)/ A1C0)
kde dQ/dt je míra permeability, C0 je počáteční koncentrace rozpuštěné látky v donorové komoře a A je povrchová plocha membrány (4,7 cm2).
Ve studii in-situ střevní perfuze u potkanů byla plocha pod křivkou závislosti plazmatické koncentrace na čase (AUC0-90) v portální žíle od času nula do posledního měření vypočtena podle lineárního lichoběžníkového pravidla.
Fyzikálně chemické vlastnosti
Polární povrchová plocha a nepolární povrchová plocha sloučenin byla vypočtena pomocí programu SAS (verze 0.8, Olsson, T.; Sherbukhin, V., Synthesis and Structure Administration, 1997–2001, AstraZeneca, Cary , NC, USA). Experimentálně stanovené hodnoty log P a pKa byly získány z literatury.

Statistická analýza
Data byla analyzována jednosměrnou analýzou rozptylu následovanou Tukeyho posthoc testem. Hodnoty pravděpodobnosti menší než 5 procent byly považovány za významné.
Výsledek
Absorpční transport echinakosidu a akteosidu přes Caco-2 buněčné monovrstvy
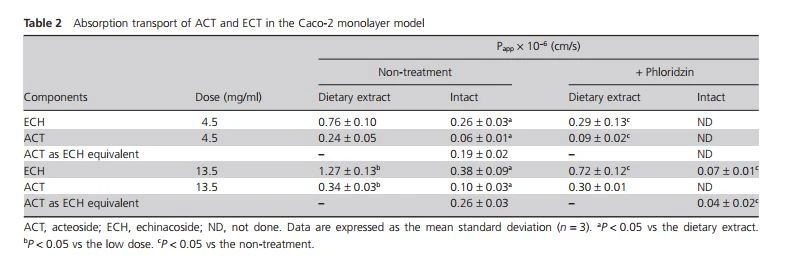
U myší a potkanů jsou intaktní ECH[1{{20}},14] a ACT[12,21] perorálně podávány v dávkách 100–1{{ 39}}00 mg/kg. Použitý extrakt C. tubulosa obsahoval přibližně 30 procenta ECH a 15 procent ACT na dávku. Protože extrakt změnil osmotický tlak a pH v inkubačním médiu, byly na základě orálního dávkování stanoveny koncentrace 4,5 a 13,5 mg/ml (neporušené sloučeniny: 2–20 mg/20 g tělo hmotnost) u myší. Extrakt v nízkých (4,5 mg/ml) a vysokých dávkách (13,5 mg/ml) obsahoval 2,0 a 6,1 mg pro ECH a 1,0 a 3,0 mg pro ACT, v daném pořadí. Aplikovali jsme množství extraktu C. tubulosa, která byla mnohem nižší než orální dávka ECH a ACT uváděná u lidí (doporučená dietní dávka extraktu: 150 mg obsahující přibližně 45 mg pro ECH a 22,5 mg pro ACT). Při nízkých a vysokých dávkách intaktních sloučenin se absorpční profily (obrázek 2) a Papp významně nelišily mezi ECH a ACT jako ekvivalentem ECH (tabulka 2). Když byl do média nanesen extrakt C. tubulosa ve vysoké dávce 13,5 mg/ml, hodnoty Papp (1,27 ± 0,13 a 0,34 ± 0,03 × 10⁻⁶ cm/s, v tomto pořadí) doprovodných látek ECH a ACT byly třikrát vyšší než hodnoty (0,38 ± 0,09 a 0,10 ± 0,03 x 10⁻⁶ cm/s, v tomto pořadí) intaktní ECH a ACT (tabulka 2). Extrakt na rozdíl od intaktních sloučenin výrazně zvýšil absorpční transport ECH a ACT.
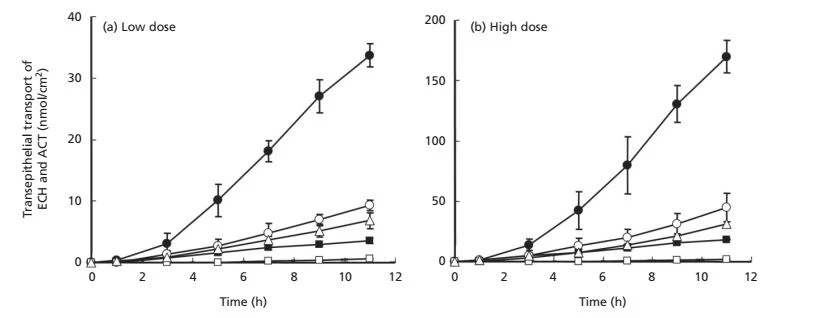
Obrázek 2 Absorpční transport echinakosidu a akteosidu přes monovrstvy buněk Caco-2 v systému transwell. Byl sledován apikální až bazolaterální transport. Uzavřené symboly jsou echinakosid (kruh) a akteosid (čtverec).Cistanchetubulosaextrakt dávkovaný v nízkých a vysokých koncentracích 4,5 (a) a 13,5 mg/ml (b). Otevřené symboly jsou intaktní echinakosid (kruh) a intaktní akteosid (čtverec) odpovídající obsahu echinakosidu a akteosidu vCistanchetubulosavýpisdávkované, resp. Intaktní akteosid (prázdný trojúhelník) byl také vložen do média jako ekvivalent dávky intaktnímu echinakosidu (prázdný kruh). Výsledky jsou uvedeny se standardními odchylkami (n=3).
Inhibiční účinek floridzinu, phloretinu a verapamilu
To characterize the intestinal absorption of ECH and ACT, Caco-2 cell monolayers were incubated with representative inhibitors. Apical glucose transporter 1-sensitive phloridzin dramatically reduced the Papp of intact ECH and ACT to 20% of non-treatment at the high dose (Table 2). Basolateral glucose transporter (GLUT) 2-sensitive phloretin did not decrease the transport of intact ECH and ACT (Figure 3). In this study, higher concentrations (>0.3 mM) phloretinu nebylo možné použít z důvodu patrné buněčné toxicity. Navíc byl P-gp identifikován jako důležitý hráč odpovědný za interakci mezi rostlinnými léky a klinicky důležitými substráty P-gp. Verapamil nezvýšil absorpční transport intaktních sloučenin (obrázek 3).
Absorpční transport ECH a ACT v extraktu (nízká dávka) byl významně inhibován floridzinem (tabulka 2 a obrázek 4). Extrakt ve vysoké dávce potlačil inhibici citlivou na floridzin, ačkoli transport intaktní ECH a ACT byl citlivější na floridzin (tabulka 2).
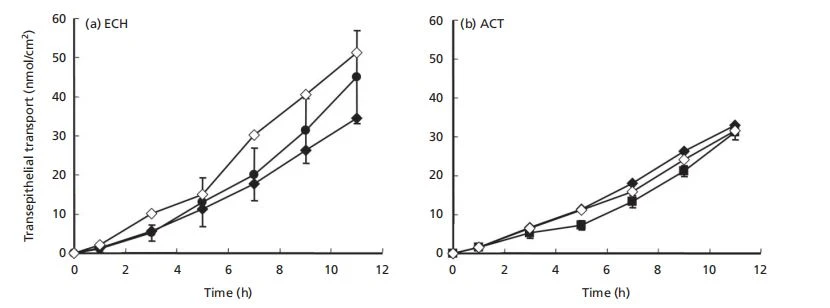
Obrázek 3 Vliv phloretinu a verapamilu na absorpční transport intaktního echinakosidu a akteosidu. Apikální až bazolaterální transport byl monitorován po aplikaci intaktního echinakosidu odpovídajícímu obsahu echinakosidu v 13,5 mg/ml extraktu na apikální straně (n=3). Akteosid (plný čtverec) byl v dávce ekvivalentní intaktnímu echinakosidu (plný kruh) v nepřítomnosti inhibitorů (n=3). Otevřené a uzavřené kosočtverce ukazují transport v přítomnosti 0,2 mM verapamilu a 0,3 mM floretinu, v daném pořadí. Inhibiční experimenty byly provedeny duplicitně.
Studie in-situ střevní perfuze
V in-situ studii jsme testovali, zda ECH a ACT v extraktu C. tubulosa byly transportovány SGLT1 umístěným na apikální straně tenkého střeva. Když byl dietní extrakt v nízké dávce (4,5 mg/ml) perfundován, ECH a ACT se rychle objevily v portální krvi (obrázek 5). AUC byla stanovena jako 2702,8 ± 384,1 μm·min pro ECH a 698,3 ± 197,2 μm·min pro ACT. Po normalizaci AUC s obsahem extraktu C. tubulosa se absorbované množství významně nelišilo mezi ECH a ACT. SGLT1-senzitivní floridzin, na rozdíl od florretinu, významně potlačoval absorpční transport souběžné ECH (AUC, 649,4 ± 248,2 μm·min) a ACT (nedetekováno).

Diskuse
Některé rostlinné složky jsou substráty P-gp vysoce exprimované v játrech, střevech, mozku a ledvinách. P-gp je určujícím faktorem pro in-vivo biologickou dostupnost, dispozice a distribuci bylinných přípravků, včetně třezalky tečkované, kurkuminu, echinacey, ženšenu, ginkga a zázvoru.[22,23] Biologická dostupnost genisteinu{{5} }glukosid, derivát flavonoidů, byl také omezen střevním transportérem MRP2.[24] Proto byla tato studie navržena tak, aby prozkoumala absorpční vlastnosti ECH a ACT současně v dietním a léčivém extraktu C. tubulosa.
Polarizované monovrstvy Caco{{0}} buněk, stejně jako střevo[25], exprimují hlavní střevní transportéry léku, jako je P-gp, MRP a protein rezistence na rakovinu prsu.[26] Bylo prokázáno, že dietní flavonoidy kvercetinu[27] a myricetinu[28] inhibují efflux zprostředkovaný P-gp jak v buněčných liniích, tak na zvířecích modelech. Verapamil, inhibitor P-gp, nezměnil permeabilitu ACT a ECH přes monovrstvy buněk Caco-2 (obrázek 3), což ukazuje, že intaktní ECH a ACT nebyly omezeny efluxní pumpou P-gp. Naše předchozí studie ukázaly, že proteiny MRP2 nebyly exprimovány v monovrstvách buněk Caco-2.[29] P-gp a MRP2-zprostředkovaný efflux lze vyloučit v transportu ECH a ACT. Některé glykosidy kvercetinu s nízkou lipofilitou byly absorbovány účinněji než samotný kvercetin.[30] Je také důležité poznamenat, že ACT s cukernou skupinou se rychle distribuuje v mozkových tkáních. Naše pozornost byla zaměřena na kombinované působení dvou glukózových transportérů v enterocytech: SGLT v membráně kartáčového lemu a facilitovaný difúzní transport glukózy (GLUT) v bazolaterální membráně. Buněčná kultura Caco-2 může být použita jako model pro studium transportérů GLUT2 citlivých na florretin a SGLT1 a 2 citlivých na floridzin.[31–34] Glukóza je transportována z apikální na bazolaterální stranu Caco{{27 }} monovrstvy vysokou rychlostí s Papp 36,8 ± 1,1×10⁻⁶ cm/s.[35] Má vyšší Papp než transcelulární transportní marker propranolol (23,4 ± 2,8 × 10⁻⁶ cm/s). Jak je uvedeno v tabulce 2, intaktní ECH a ACT měly mnohem nižší Papp, než je uvedeno u glukózy a pasivního propranololu. Vypočítali jsme logaritmus rozdělovacího koeficientu (oktanol-voda), log P, byl vypočten na -2,32 a 0,077 pro ECH a ACT, v daném pořadí. Předpokládá se, že polární nebo hydrofilní sloučeniny jsou transportovány paracelulární cestou (přes těsná spojení). Zdá se, že dva fenylethanoidní glykosidy, jako mannitol, jsou transportovány paracelulární cestou. Phloridzin však dramaticky snížil absorpční permeabilitu intaktních ECH a ACT (tabulka 2), což naznačuje, že apikální SGLT1 hraje hlavní roli ve střevní absorpci intaktních ECH a ACT. Při ekvivalentní dávce byla vyšší hydrofobní permeabilita ACT blízká permeabilitě ECH (obrázek 2 a tabulka 2). Yoshikawa a kol. [36] prokázali, že facilitativní transportéry (GLUT 1 a 2), stejně jako floridzin-senzitivní SGLT1, jsou intenzivně exprimovány v tenkém střevě. Protože absorbovaná množství sloučenin jsou založena na hmotnostní rovnováze mezi příjmem a eliminací, hodnotili jsme účast GLUT2. Glukóza prochází přes apikální membrány enterocytů pomocí SGLT1 s vysokou afinitou a nízkou kapacitou a vystupuje přes bazolaterální membránu přes GLUT2 s nízkou afinitou a vysokou kapacitou. Ploretin (specifický inhibitor GLUT2) nezrušil transport intaktních ECH a ACT (obrázek 3). Funes a kol. [37] prokázali, že ACT silně interaguje s fosfátovými skupinami fosfolipidových membrán. Vzhledem k tomu, že hydroxylové skupiny jsou ve struktuře ACT hojné, vodíkové vazby mezi těmito skupinami a glycerolovými polárními hlavami nebo fosfátovými skupinami fosfolipidů jsou nejpravděpodobnější interakce, ke kterým dochází. Když byly intaktní ECH a jeho ekvivalentní ACT inkubovány s Caco-2 monovrstvami po dobu 11 hodin, byla buněčná akumulace ACT (0,24 ± 0,04 nmol/cm2) třikrát větší než akumulace ECH (0,07 ± 0,01 nmol/cm2). Domnívali jsme se, že ECH a ACT citlivé na SGLT se pomalu přesunuly z enterocytů do krevního řečiště, což pravděpodobně vedlo k pozorované nízké Papp. Ve srovnání s vysoce hydrofilní ECH může být nízká permeabilita ACT způsobena interkalací do buněčných membrán.
Polyfenolické sloučeniny se při klinické aplikaci konzumují v bylinných směsích a jsou komerčně dostupné jako doplňky stravy. Ve studii in vitro bylo prokázáno, že absorpce fenolického epikatechinu nebyla ovlivněna složením složek nápojových potravin.[38] Naproti tomu produktové matrice Hypericum perforatum L. ovlivňují transport kvercetinových glukosidů (rutinu a isoquercitrinu) a hyperosidu přes buňky Caco-2 kvůli rozdílům ve fytochemickém složení matrice a transportních charakteristikách, tj. paracelulární přenos a nosičem zprostředkovaný nebo aktivní doprava.[39] V této studii poskytla C. tubulosa trojnásobně vyšší transepiteliální transport než intaktní ECH a ACT (obrázek 2 a tabulka 2). Předpokládáme, že složky v extraktu C. tubulosa aktivují transportér citlivý na floridzin a/nebo urychlují eliminaci intracelulárních ECH a ACT. Zdálo se, že extrakt z C. tubulosa ve vysoké dávce značně maskuje sílu transportu citlivého na floridzin (tabulka 2). Dietní sacharidy[40] a proteiny[41] interagují s některými polyfenoly v gastrointestinálním traktu. Morikawa a kol. [10] prokázali, že z v současnosti používaného extraktu C. tubulosa lze izolovat pět iridoidů, kankanosidy AD a kankanol, monoterpenový glykosid, kankanosid E, dva fenylethanoidní oligoglykosidy, kankanosidy F a G a acylovaný oligosacharid, kankanózu. Ostatní složky, včetně proteinů v extraktu C. tubulosa, zůstávají nejasné. Společně s výše uvedenými spekulacemi jsme navrženi tak, abychom prozkoumali, zda další složky interagují s SGLT1 a inhibují absorpci ECH a ACT.
In-vivo experiments cannot easily distinguish between the extent of absorption and avoidance of first-pass disposition through the liver. The in-situ intestinal perfusion model has an advantage over in-vivo and in-vitro models due to the easy control of experiment parameters exclusion of the impact of other organs and maintenance of an intact intestinal blood supply.[22] The involvement of the phloridzin-sensitive glucose transporter was evaluated in an in-situ intestinal perfusion system. As shown in Figure 5, absorbed amounts of ECH and ACT concomitants in C. tubulosa extract (low dose) were greatly abolished by phloridzin, which agrees with our in-vitro data (Figure 4). Using peptides and 20 drugs passively absorbed, a good correlation is obtained between in-vivo drug absorption and the drug permeability of Caco-2 monolayers.[42] Drugs with a Papp of >1 × 10⁻⁶ cm/s se u lidí vstřebává úplně, zatímco léky a peptidy se vstřebávají špatně (<1% of="" dose)="" have="" papp="" values="" of=""><1 ×="" 10−7="" cm/s.="" surprisingly,="" the="" papp="" of="" the="" ech="" concomitant="" (high="" dose)="" was="">1 × 10⁻⁶ cm/s (tabulka 2), což naznačuje vysokou orální biologickou dostupnost u zvířat a lidí. Crespy a kol. [43] prokázali, že efflux ve studii střevní perfuze in situ se mezi floridzinem a floretinem významně nelišil. Rovněž ukázali, že orální biologická dostupnost floridzinu s vysokou citlivostí na SGLT1 byla u potkanů pouze 10 procent. Budoucí studie potřebují vyhodnotit biologickou dostupnost a jaterní first-pass efekt souběžné ECH po perorálním podání dietního extraktu ve vysoké dávce. Výsledky in-situ naznačují, že příjem extraktu C. tubulosa může zlepšit nízkou orální absorpci intaktní ECH a ACT.
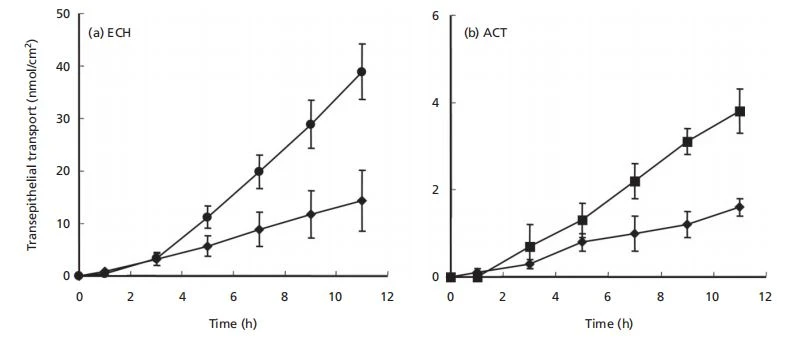
Obrázek 4 Inhibiční účinek floridzinu na absorpční transport echinakosidu a akteosidu vCistanchetubulosavýpis. Byl sledován apikální až bazolaterální transport. Uzavřená kolečka a čtverečky jsou echinakosid (a) a akteosid (b) v extraktu 4,5 mg/ml bez floridzinu. Plné kosočtverce ukazují ošetření 4,5 mg/ml extraktu včetně 1 mM floridzinu. Výsledky jsou uvedeny se standardními odchylkami (n=3).
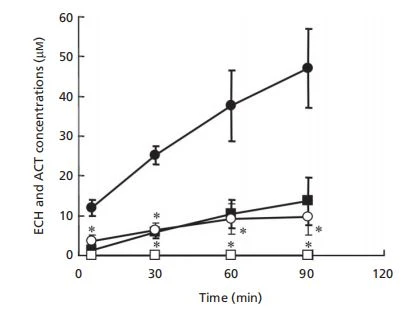
Obrázek 5 Časové průběhy koncentrací echinakosidu a akteosidu v portální krvi během in-situ recirkulační intestinální perfuze potkana. Symboly kruhu a čtverce jsou echinakosid a akteosid.Cistanchetubulosavýpisv koncentraci 4,5 mg/ml byla perfundována v nepřítomnosti (plné symboly) nebo přítomnosti (prázdné symboly) 1 mM floridzinu při 37 stupních. Výsledky jsou uvedeny se standardními odchylkami (n=3–4). *P < 0,05="" oproti="" dietnímu="" extraktu="" v="" přítomnosti="">
Závěr
Dietní a léčivý extrakt z C. tubulosa zvyšující střevní absorpci ECH a ACT může sloužit k lepšímu řízení lidského zdraví, i když zapojení transportu citlivého na floridzin by mělo být sníženo.
Prohlášení Střet zájmů
Autoři prohlašují, že nemají žádné střety zájmů, které by mohli zveřejnit.
Financování
Tato práce byla částečně podporována High-Tech Research Center z Kinki University.
Poděkování
Autoři chtějí poděkovat Osamu Muraokovi (Kinki University, Osaka, Japonsko) a Toshio Morikawovi (Kinki University, Osaka, Japonsko) za dodávkuCistanchetubulosavýpisa čisté složky. Jsme velmi vděční Masahiro Iwaki (Kinki University) za jejich studijní podporu.
Reference
1. Tanaka J a kol. ÚčinekCistanchetubulosa výpisna různá onemocnění mozku. Styl jídla 21 2008; 12: 24–26.
2. Tanaka J a kol. Funkce proti stárnutíCistanchetubulosa výpis. Styl jídla 21 2008; 12: 27–29.
3. Tanaka J et al. Funkce pro krásu a růst vlasůCistanchetubulosavýpis. Styl jídla 21 2008; 12: 29–32.
4. Tanaka J a kol. Účinek metabolismu tukůCistanchetubulosavýpis. Styl jídla 21 2008; 12: 30–33.
5. Yoshizawa F a kol. SložkyCistanchetubulosaSchrenk (Hook) f.II. izolace a struktura nového fenylethanoidového glykosidu a nového neolignanového glykosidu. Chem Pharm Bull 1990; 38: 1927–1930.
6. Yoshikawa M a kol. Fenylethanoidní aminoglykosidy a acylované oligocukry s vazorelaxační aktivitou zCistanchetubulosa. Bioorg Med Chem 2006; 14: 7468–7475.
7. Tu PF a kol. Analýza fenylethanoidových glykosidů Herba cistanche pomocí RP-HPLC. Yao Xue Xue Bao 1997; 32: 294–300.
8. Lei L a kol. Metabolická regulace fenylethanoidních glykosidů z Herbacistanchesv psím trávicím traktu. Yao Xue Xue Bao 2001; 36: 432–435.
9. Geng X a kol. Neuroprotektivní účinky echinakosidu u myšího MPTP modelu Parkinsonovy choroby. Eur J Pharmacol 2007; 564: 66–74.
10. Morikawa T a kol. Acylované fenylethanoidové aminoglykosidy s hepatoprotektivní aktivitou z pouštní rostlinyCistanchetubulosa. Bioorg Med Chem 2010; 18: 1882–1890.
11. Paola RD a kol. Účinky verbascosidu, biotechnologicky čištěného kulturami rostlinných buněk syringa Vulgaris, na modelu parodontitidy na hlodavcích. J Pharm Pharmacol 2011; 63: 707-717.
12. Wu YT a kol. Stanovení akteosidu vCistanchedeserticola a Boschniakia rossica a její farmakokinetika u volně se pohybujících potkanů pomocí LC-MS/MS. J Chromatogr B Analyt Technol Biomed Life Sci 2006; 844: 89–95.
13. Matthias A a kol. Studie permeability alkylamidů a konjugátů kyseliny kávové z echinacey pomocí modelu monovrstvy kakaových buněk -2. J Clin Pharm Therapeut 2004; 29: 7–13.
14. Jia C a kol. Stanovení echinakosidu v potkaním séru vysokoúčinnou kapalinovou chromatografií na reverzní fázi s ultrafialovou detekcí a její aplikace pro farmakokinetiku a biologickou dostupnost. J Chromatogr 2006; 844: 308–313.
15. Cardinali A et al. Verbascosidy z olivové mlýnské vody: posouzení jejich biologické dostupnosti a intestinálního příjmu pomocí in vitro systému trávení/kakaa{1}}. J Food Sci 2011; 176: H48–H54.
16. Jia C a kol. Metabolismus echinakosidu, dobrého antioxidantu, u potkanů: izolace a identifikace jeho žlučových metabolitů. Drug Metab Dispos 2009; 37: 431–438.
17. Najar IA a kol. Modulace aktivity P-glykoprotein ATPázy některými fytokonstituenty. Phytother Res 2009; 24: 454–458.
18. Walgren RA a kol. Efflux dietního flavonoidu kvercetinu 4′-beta-glukosidu přes monovrstvy lidských střevních caco-2 buněk pomocí apikálního proteinu asociovaného s multirezistencí-2. J Pharmacol Exp Ther 2000a; 294: 830–836.
19. Walgren RA a kol. Buněčný příjem dietního flavonoidu quercetin 4'-beta-glukosidázy na sodík-dependentním glukózovém transportéru SGLT1. J Pharmacol Exp Ther 2000b; 294: 837–843.
20. Mihara K a kol. Metabolismus eperisonu při prvním průchodu střevem u potkanů. Pharm Res 2001; 18: 1131–1137.
21. Isacchi B a kol. Antihyperalgetická aktivita verbascosidu ve dvou modelech neuropatické bolesti. J Pharm Pharmacol 2011; 63: 594-601.
22. Cook TJ a kol. Střevní permeabilita chlorpyrifosu pomocí jednoprůchodové intestinální perfuzní metody u potkanů. Toxikologie 2003; 184: 125–133,23. Kumar YS a kol. P-glykoproteinem a cytochromem P-450-zprostředkovaná rostlinná léková interakce. Drug Metabol Drug Interact 2010; 25: 3–16.
24. Walle UK a kol. Transport genistein- 7-glukosidu lidskými střevními buňkami CACO-2: potenciální role MRP2. Res Commun Mol Pathol Pharmacol 1999; 103: 45–56.
25. Ito K a kol. Apikální/bazolaterální povrchová exprese lékových transportérů a její role ve vektorovém transportu léků. Pharm Res 2005; 22: 1559–1577.
26. Laitinen L a kol. Buněčné kultury Caco-2 při hodnocení střevní absorpce: účinky některých současně podávaných léčiv a přírodních sloučenin v biologických matricích. (University of Helsinki, Finsko, 2006) Akademická disertace, s. 1–66.
27. Scambia G a kol. Quercetin potencuje účinek adriamycinu v multirezistentní MCF-7 lidské buněčné linii rakoviny prsu: P-glykoprotein jako možný cíl. Cancer Chemother Pharmacol 1994; 34: 459–464.
28. Choi DH a kol. Vliv myricetinu, antioxidantu, na farmakokinetiku losartanu a jeho aktivního metabolitu EXP-3174 u potkanů: možná role cytochromu P450 3A4, cytochromu P450 2C9 a P- inhibice glykoproteinu myricetinem. J Pharm Pharmacol 2010; 62: 908–914.
29. Tanino T a kol. Proléčivo paclitaxel-2′-ethylkarbonát může obejít buněčný eflux zprostředkovaný P-glykoproteinem a zvýšit cytotoxicitu léčiva. Pharm Res 2007; 24: 555–565.
30. Hollman PC a kol. Absorpce dietních kvercetinových glykosidů a kvercetinu u zdravých dobrovolníků s ileostomií. Am J Clin Nutr 1995; 62: 1276–1282.
31. Kellett GL a kol. Difuzní složka střevní absorpce glukózy je zprostředkována glukózou indukovaným doplňováním GLUT2 do membrány kartáčové desky. Biochem J 2000; 350: 155–162.
32. Matter K a kol. Třídění endogenních plazmatických membránových proteinů probíhá ze dvou míst v kultivovaných lidských střevních epiteliálních buňkách (Caco-2). Cell 1990; 60: 429–437.
33. Mahraoui L a kol. Přítomnost a rozdílná exprese mRNA transportéru hexózy SGLT1, GLUT1, GLUT2, GLUT3 a GLUT5 v buněčných klonech Caco-2 ve vztahu k buněčnému růstu a spotřebě glukózy. Biochem J 1994; 298: 629–633.
34. Mesonero J et al. Exprese fruktózového transportéru GLUT 5 závislá na cukru v buňkách Cac-2. Biochem J 1995; 312: 757–762.
35. Walgren RA a kol. Transport kvercetinu a jeho glukosidů přes lidské střevní epiteliální buňky Caco-2. Biochem Pharmacol 1998; 55: 1721–1727.
36. Yoshikawa T a kol. Srovnávací exprese hexózových transportérů (SGLT1, GLUT1, GLUT2 a GLUT5) v celém myším gastrointestinálním traktu. Histochem Cell Biol 2011; 135: 183–194.
37. Funes L a kol. Účinky verbascosidu, fenylpropanoidního glykosidu z citronové verbeny, na fosfolipidové modelové membrány. Chem Phys Lipids 2010; 163: 190–199.
38. Neilson AP a kol. Vliv složení čokoládové matrice na biologickou dostupnost kakaového flavan-3-olu in vitro a biologickou dostupnost u lidí. J Agric Food Chem 2009; 57: 9418–9426.
39. Gao S a kol. Vysoce variabilní obsahy fenolických látek v produktech z třezalky tečkované ovlivňují jejich transport v modelu Caco{1}} buněk lidského střeva: farmaceutické a biofarmaceutické zdůvodnění standardizace produktů. J Agric Food Chem 2010; 58: 6650–6659.
40. Schramm DD a kol. Účinky potravy na absorpci a farmakokinetiku kakaových flavanolů. Life Sci 2003; 73: 857–869.
41. Laurent C a kol. Matrice vína bez etanolu a polyfenolů stimulují diferenciaci lidských střevních Caco-2 buněk. Vliv jejich spojení s extraktem z hroznových jader bohatým na prokyanidin. J Agric Food Chem 2005; 53: 5541–5548.
42. Artursson P a kol. Korelace mezi perorální absorpcí léčiva u lidí a zjevnými koeficienty permeability léčiva v lidských vnitřních epiteliálních (Caco{1}}) buňkách. Biochem Biophys Res Commun 1991; 175: 880–885.
43. Crespy V a kol. Srovnání střevní absorpce kvercetinu, floretinu a jejich glukosidů u potkanů. J Nutr 2001a; 131: 2109–2114.
44. Crespy V a kol. Biologická dostupnost phloretinu a floridzinu u potkanů. J Nutr 2001b; 131: 3227–3230.