

Polysacharidy Cistanche zvyšují absorpci echinakosidu in vivo a ovlivňují střevní mikroflóru
Feb 19, 2022
Kontakt: emily.li@wecistanche.com
Zhifei Fu a kol
Abstraktní
Polysacharidy afenylethanoidové glykosidyzCistanche deserticolaBylo prokázáno, že mají různé zdravotní přínosy, avšak interaktivní účinek mezi těmito dvěma druhy sloučenin in vivo není podrobně znám. Cílem této studie bylo prozkoumat synergické působení polysacharidů cistanche s fenylethanoidním glykosidem a účinky polysacharidů na střevní mikroflóru. Krysy Sprague-Dawley byly krmeny různými druhy cistanche polysacharidů po dobu 20 dnů, poslední den byla všem potkanům podávánaechinakosidv dávce 100 mg/kg. Výsledky byly porovnány především na rozdílu ve farmakokinetických parametrech, složení střevní mikroflóry a obsahu mastných kyselin s krátkým řetězcem. Výsledky ukázaly, že všechny cistanche polysacharidy, včetně surových polysacharidů, jsou vysokomolekulárníhmotnostní polysacharidya polysacharidy s nízkou molekulovou hmotností, by mohly regulovat diverzitu střevní mikroflóry, zvýšit počet prospěšných bakterií a zejména zvýšit růst Prevotella spp. stejně jako zlepšit produkci mastných kyselin s krátkým řetězcem a absorpci echinakosidu. Zkoumáním synergických účinků polysacharidů s malými molekulami tato zjištění naznačují, že cistanche polysacharidy, zejména polysacharidy s nízkou molekulovou hmotností, by mohly být použity jako manipulátor střevní mikroflóry pro podporu zdraví.
klíčová slova:CistanchedeserticolapolysacharidEchinakosidStřevní mikroflóra
Kliknutím sem získáte více informací o produktech cistanche
1. Úvod
V posledních letech se ukázalo, že polysacharidy modulují složení střevní mikroflóry a že změny mohou zprostředkovávat mnohonásobné nutriční absorpce [1], produkující fyziologické funkce [2,3]. Bylo prokázáno, že polysacharidy z tradiční čínské medicíny (TCM) jsou ideálními kandidáty pro regulaci střevní mikroflóry a vykazují prebiotické účinky. V trávicím traktu se polysacharidy a některé malé molekulární sloučeniny nevyhnutelně dostávají do kontaktu a vykazují určité účinky na biologické aktivity [4]. Polysacharidy jako jeden z hlavních účinných látek v Panax ginseng, který byl široce používán po tisíce let, vykazovaly dobré vlastnosti.zlepšenívstřevnímetabolismusavstřebávánízginsenosidyin vivo [5]. Polysacharidy Codonopsis pilosula prokázaly podpůrný účinek absorpce saponinů u myší s kolitidou vyvolanou dextransulfátem sodným [6]. Bylo zjištěno, že polysacharidy Ganoderma lucidum, zejména frakce s vysokou molekulovou hmotností, majíprebiotikumfunkcína myších modelech střevní dysbiózy vyvolané dietou s vysokým obsahem tuku [7]. Longanové polysacharidy regulovaly střevní mikroflóru a střevní metabolity (zvyšovaly obsah pyruvátu a butanoátu), aby produkovaly imunomodulační aktivity [8].
Cistanche deserticola, jako tradiční čínská medicína, byla v Číně široce používána jako doplněk stravy. Farmakologické studie prokázaly, že se projevujeneuroprotektivní, imunomodulační, hormonálnívyvažování, proti-únava, proti-zánětlivéhepatoprotekce,proti-oxidační, proti-bakteriální, proti-virový, aproti-nádorúčinky [9]. Chemická analýza ukázala, že fenylethanoidní glykosidy a polysacharidy byly hlavními aktivními složkami. Echinakosid, hlavní fenylethanoidní glykosid v C. deserticola, vykazuje široké farmakologické účinky, avšak jeho léková účinnost je omezená kvůli špatné biologické dostupnosti, rychlému a rozsáhlému metabolismu in vivo. Studie potvrdily, že echinakosid může být metabolizován střevní mikroflórou in vitro [10,11]. Důkazy in vivo však nebyly zkoumány. Jak víme, střevní mikroflóra hrála důležitou roli při zprostředkování bioaktivity metabolismu rostlinných léčiv. Proto bylo hlavním cílem této práce prozkoumat vlivcistanche polysacharidyna střevní mikroflóru a účinky na metabolismus echinakosidu.
2. Materiály a metody
2.1. Materiály a chemikálie
Cistanche deserticola YC Ma byla získána od společnosti Alashan, Vnitřní Mongolsko Mandela sand industry development Co., LTD, Čína. Ověřil je profesor Lijuan Zhang (Tianjinská univerzita tradiční čínské medicíny). Vzorek voucheru byl uložen v naší laboratoři. Standardní látka, jako je echinakosid, akteosid a kyselina chlorogenová, byla získána z Národního institutu pro kontrolu farmaceutických a biologických produktů (Peking, Čína). Čistota každého standardu byla větší nebo rovna 98 procentům. Acetonitril a methanol chromatografické čistoty byly zakoupeny od Fisher Scientific (Pitts burgh, PA). Kyselina mravenčí byla zakoupena od Anaqua Chemical Supply Inc. (Wilmington, USA). Ostatní chemická činidla byla analytické čistoty a byla zakoupena od společnosti Sinopharm Chemical Reagent Co., Ltd. (Shanghai, Čína).
Samci potkanů Sprague-Dawley (200–220 g) byli dodáni společností Beijing HFK Bioscience CO., LTD (Peking, Čína, číslo licence SCXK (Jing) 2014- 0004). Všechna zvířata byla chována a umístěna za podmínek SPF ve zvířecím zařízení. Experiment byl proveden podle pokynů stanovených organizací péče o zvířata a používá výbor TJUTCM a byl v souladu s příručkou pro péči a použití laboratorních zvířat publikovanou americkým Národním institutem zdraví (publikace NIH číslo 85–23, revidovaná v roce 1996 ). Po 1 týdnu aklimatizace byly potkani náhodně rozděleni do čtyř skupin: kontrolní skupina, skupina s celkovým polysacharidem, skupina s vysokomolekulárním polysacharidem a skupina s nízkomolekulárním polysacharidem. Každá skupina zahrnovala 6 krys, které byly chovány ve stejné kleci.
2.2. Příprava polysacharidů Cistanche
3.0 kg Cistanche deserticola YC Ma bylo vyčištěno a vysušeno při 40 stupních ve vzduchové sušárně, poté bylo rozdrceno na hrubý prášek. Suchý hrubý prášek byl dvakrát extrahován 85% vodným ethanolem (v/v) při 60 stupních a pokaždé 2 hodiny. Poměry pevná látka-kapalina byly 1:12 a 1:10. Bylinné zbytky byly extrahovány vodou při 100 stupních ještě dvakrát, doba extrakce a poměry pevná látka-kapalina byly stejné s 85% etanolem. Vodný roztok se spojí a koncentruje za sníženého tlaku a poté se vysráží v 80% ethanolu, stáním při teplotě 4 °C po dobu 24 hodin. Sraženina byla izolována centrifugací při 8000 ot./min po dobu 10 minut při 4 stupních a poté lyofilizována, aby byly získány celkové polysacharidy (ZT). ZT byl poté rozpuštěn v deionizované vodě a přefiltrován na 100 kDa ultrafiltrační membráně s dutými vlákny, byly shromážděny retenční infiltráty vysokomolekulárních polysacharidů (HM). Prostoupený filtrát byl filtrován 6 kDa ultrafiltrační membránou. Byly získány retenční filtrátové středomolekulární polysacharidy (MM) a permeované filtrátové nízkomolekulární polysacharidy (LM).
2.3. Primární charakterizace cistanche polysacharidů
Obsah polysacharidu byl stanoven fenolovou metodou kyseliny sírové za použití glukózy jako standardu [12]. Celkový obsah bílkovin byl stanoven metodou BCA [13]. Analýza složení monosacharidů byla provedena pomocí HPLC (systém UltiMate 30}00) vybavený kolonou SinoPak C18 (5 μm, 150 mm × 4,6 mm) a detektorem diodového pole (VWD-3000). Chromatografická separace PMP (1-fenyl-3-methyl-5-pyrazolon) derivátů předkolony byla provedena za použití 100 mM fosfátového pufru a acetonitrilu v poměru 82:18 (obj./obj. , procenta) jako mobilní fáze při průtoku 1,0 ml/min. Bylo nastříknuto 10 ul každého vzorku a byla použita doba analýzy 30 minut s detekcí při 245 nm. Získávání a zpracování dat bylo prováděno pomocí Chromeleon Software 7.1 (Dionex, Sunnyvale, CA, USA).
Molekulová hmotnost (Mw) byla stanovena pomocí vysokoúčinné vylučovací chromatografie (HPSEC, UltiMate 30{{10}}}0 systém), vybavená TSK gelem G3000 PWXL (7,8 × 300,0 mm, Tosoh, Japonsko) a TSK gel GMPWXL (7,8 × 300,0 mm, Tosoh, Japonsko) kolona a detektor indexu lomu RefractoMax521 (RID). Vzorky byly eluovány 0,1 mol/l Na2S04 při průtoku 0,5 ml/min. Teplota kolony byla udržována na 35 stupních. Dextran jako standardy a standardní křivka byly vyneseny podle eluční doby vynesené proti logaritmu molekulové hmotnosti.
2.4. Farmakokinetická studie
Vzorky krve byly odebrány z vnitřního očního koutku v {{0}} h, 0.083 h, 0,167 h, 0,25 h, 0,5 h, 0,75 h, 1.0 h, 2.0 h, 3.{{20}} h, 4.0 h, 6.0 h, 8.0 h, 10 h, 12 h a 24 h po podání echinakosidu (100 mg/kg). Vzorky plazmy byly získány centrifugací po dobu 10 minut při 7500 pm. Ke 100 μl vzorku plazmy bylo přidáno 10 μl roztoku IS (kyselina chlorogenová) a 500 μl methanolu. Směs byla poté vortexována po dobu 3 minut a centrifugována při 14,000 otáčkách za minutu po dobu 10 minut. Supernatant se shromáždil a vysušil v dusíku při teplotě místnosti. Následně byl zbytek rozpuštěn ve 100 ul 50% vodného methanolu, znovu centrifugován při 14,000 otáčkách za minutu po dobu 10 minut. Nakonec byly 3 ul supernatantu injikovány do systému LC-MS/MS pro analýzu. Vzorky byly analyzovány za použití způsobu podle dříve uvedeného. Mobilní fáze se skládala z CH3CN (rozpouštědlo A) a H2O (obsahující 0,1 procenta HCOOH; rozpouštědlo B) za použití následujícího gradientu: 0–1 min, 10 procent A; 1–8 min, 10–90 procent A; 8–9 min, 90–10 procent A; 9–11 min: 10 procent A. Vzorek byl separován na koloně ACQUITY HSS T3 (1,8 μm, 100 mm × 2,1 mm id). Průtok byl 0,3 ml/min a teplota kolony byla nastavena na 35 stupňů. V MS analýze byl použit negativní ionizační mód s následujícími optimalizovanými parametry: kapilární napětí, 2,5 kV; desolvatační teplota, 450 stupňů. Dusík byl použit jako desolvatační a kuželový plyn při průtoku 900 l/h, respektive 150 l/h. Kvantifikace byla tedy provedena pomocí MRM přechodů m/z 785,29 → 623,26 pro echinakosid, m/z 353,06 → 191,07 pro kyselinu chlorogenovou (IS), m/z 623,24 → 161,09 pro akteosid. Napětí na kuželu pro echinakosid, IS a akteosid bylo 100 V, 32 V a 74 V; srážková energie, 32 V, 14 V a 30 V.
2.5. Studie mastných kyselin s krátkým řetězcem (SCFA).
Samcům krys Sprague-Dawley byly orálně podávány ZT, HM a LM po dobu 3 týdnů. Stanovení SCFA (kyselina octová, kyselina propionová, kyselina isomáselná, kyselina máselná, kyselina izovalerová, kyselina valerová a kyselina hexanová) plynovou chromatografií (GC) bylo provedeno tak, jak bylo popsáno dříve, s několika modifikacemi [14]. Stručně, 0,5 g fekálního vzorku bylo dispergováno ve 2,5 ml vody Milli-Q, vortexováno 10 min a 7,5 ml 1% roztoku HCl/ethanol obsahujícího vnitřní standardy (kyselina máselná 24,0 ug byly přidány 2- ethylhexanová kyselina 1,32 ug/ml jako vnitřní standardy). Směsi byly homogenizovány po dobu 5 minut a odstřeďovány při 14, 000 otáčkách za minutu po dobu 10 minut při 4 stupních. Pět mikrolitrů supernatantu bylo injikováno děleným způsobem v poměru 30:1. Nosným plynem byl N2 (99,999 procent) rychlostí 1 ml/min. Množství doplňovaného plynu (N2) bylo 25 ml/min. Průtoková rychlost H2 a vzduchu byla 30 ml/min a 300 ml/min. Vzorky stolice byly odebrány 20. den této studie a okamžitě uloženy při -80 °C.
2.6. Odběr stolice, extrakce DNA a sekvenování genu 16S rRNA
Přibližně 20}0 mg čerstvého vzorku stolice bylo odebráno do 1,5 ml sterilní Eppendorfovy zkumavky od každého potkana a skladováno při -80 stupních pro pozdější přípravu DNA. DNA byla extrahována ze stolice pomocí QIAamp DNA Stool Mini Kit (QIAGEN). Množství DNA bylo stanoveno pomocí spektrofotometru NanoDrop (Thermo Electron Corporation); integrita a velikost byly kontrolovány elektroforézou na 1,0% agarózovém gelu. Podle koncentrace byla DNA naředěna na 1 ng/μl pomocí sterilní vody.
16S rRNA byla amplifikována pomocí specifického primeru (V4: 515F-806R) s čárovým kódem. Všechny PCR reakce byly provedeny s Phusion® High Fidelity PCR Master Mix (New England Biolabs). Smíchejte stejný objem 1× nanášecího pufru (obsahujícího SYB zelený) s produkty PCR a proveďte elektroforézu na 2% agarózovém gelu pro detekci. Pro další experimenty byly vybrány světlé hlavní pruhy mezi 400 a 450 bp. Produkty PCR byly smíchány v hustotních poměrech EU. Poté byla směs PCR produktů purifikována pomocí Qiagen Gel Extraction Kit (Qiagen, Německo).
Sekvenační knihovny byly zkonstruovány pomocí TruSeq® DNA PCR Free Sample Preparation Kit (Illumina, USA) podle doporučení výrobce a byly přidány indexové kódy. Kvalita knihovny byla hodnocena na systému Qubit® 2.0 Fluorometer (Thermo Scientific) a Agilent Bioanalyzer 2100. Knihovna byla sekvenována na platformě Illumina HiSeq 2500 a byla vytvořena čtení párového konce 250 bp.
2.7. Bioinformatická analýza
Ořezání sekvence čárového kódu a primeru, sestavení sekvence a filtrace dat podle QIIME (V 1.7.0). Sekvence s podobností větší nebo rovnou 97 procentům byly přiřazeny stejným OTU. OTU jsou označeny jako SILVA štítky. Indexy alfa-diverzity hodnotící bohatost střevní mikrobiální komunity (metriky ACE a Chao1) a diverzitu komunity (metriky Shannon a Simpson) byly vypočteny pomocí Qiime (verze 1.9.1). Analýza diverzity beta byla použita ke zkoumání strukturálních variací mikrobiálních komunit pomocí vzdálenosti UniFrac. Rozdíly mezi všemi skupinami byly testovány Tukeyho testem a Wilcoxovým testem. K vysvětlení rozdílů ve složení mezi čtyřmi skupinami pomocí R balíčků byla použita analýza hlavních souřadnic (PCoA). Metoda velikosti účinku lineární diskriminační analýzy (LEfSe) je speciálně navržena pro objevování biomarkerů a vysvětlování sekvenačních dat. A lineární diskriminační analýza (LDA) byla použita k výpočtu velikosti účinku každého rozdílně střevních mikrobů a charakteristik spojených s každou skupinou krys. Korelační analýza byla implementována pomocí R balíčků gcorrplot (verze 1.1.463).
Data SCFA byla analyzována pomocí ANOVA SPSS 22.0.
3. Výsledky a diskuse
3.1. Příprava a chemická analýza cistanche polysacharidů
Cistanches Herba se v Číně používá jako potravina i jako lék. Polysacharidy z ní izolované vzbudily velkou pozornost díky svým významným aktivitám. V této studii byly čtyři části cistanche polysacharidů (ZT, HM, MM a LM) získány metodou extrakce vodou, srážením alkoholem a ultrafiltrací. Chemické složení čtyř částí polysacharidů je uvedeno v tabulce 1.

Celkový obsah cukru ve vzorcích pomocí standardní křivky glukózy. Výsledek ukázal, že výnosy HM a LM byly vyšší než MM. Polysacharidy vykazovaly různé farmakologické vlastnosti, zejména imunitní aktivitu. Studie ukázaly, že obsah a typ monosacharidů, molekulová hmotnost, typ substituční skupiny hrají důležitou roli v aktivitách polysacharidů [15]. Různé části monosacharidového složení cistanche polysacharidů byly podobné a manóza (Man), kyselina galakturonová (GalUA), glukóza (Glc), galaktóza (Gal) a arabinóza (Ara) byly hlavními monosacharidy.
Obsah se však u všech čtyř částí lišil. Glukóza a arabinóza byly hlavními složkami ZT a HM, zatímco glukóza byla hlavní cukernou jednotkou LM, kromě toho bylo v těchto frakcích detekováno také málo rhamnózy a kyseliny glukuronové (GlcUA).
Relativní molekulové hmotnosti vzorků byly zkoumány pomocí vysokoúčinné vylučovací chromatografie (HPSEC). Podle standardní křivky dextranů a retenčního času ve sloupcích byly hlavní molekulové hmotnosti píku v ZT pozorovány při 1,68 × 10⁶ Da a 1,70 × 10⁴ Da, v HM byly stanoveny jako 1,54 × 10⁶, 2,06 × 10⁵ a 4,81 × 10⁴, v MM a LM byly stanoveny jako 1,09 × 10⁴ a 2,05 × 10⁴, v tomto pořadí. Jejich výtěžky byly uvedeny v tabulce 1 a výtěžnost MM byla nízká a pro pokus na zvířatech nedostačující. Předchozí studie ukázaly na struktuře závislé účinky cistanche polysacharidů na různé biologické aktivity [16]. Stále jsou zapotřebí další experimenty, zejména purifikace. Pro studium struktury a aktivity by měla být použita strukturní analýza Fifine
3.2. Farmakokinetická studie
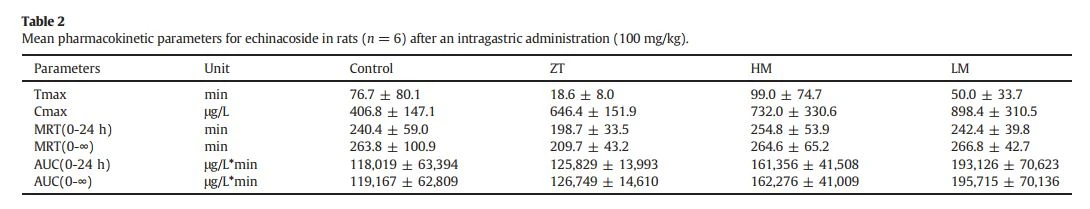
Farmakokinetika echinakosidu byla zkoumána pomocí ultra-vysokoúčinné kapalinové chromatografie s trojitým kvadrupólem hmotnostní spektrometrie (UPLC a Xevo TQ-S) po perorálním podání echinakosidu. Profily průměrné plazmatické koncentrace echinakosidu v závislosti na čase jsou uvedeny na obr. 1. Podle lékového a statistického softwaru (DAS, verze 2.0) farmakokinetika echinakosidu odpovídá jednokompartmentovému modelu a druhému parametry ve skupinách ZT, HM a LM byly shrnuty v tabulce 2, včetně doby do dosažení maximální koncentrace (Tmax), maximální koncentrace (Cmax), plochy pod křivkou koncentrace-čas (AUC) a průměrné doby zdržení (MTR). ). Farmakokinetická studie ukázala, že průměrná Cmax echinakosidu ve skupinách ZT, HM a LM byla zjištěna jako 646,4 ng/ml, 732.0 ng/ml a 898,4 ng/ml, což bylo 1,6, 1,8 a 2,2 krát ve srovnání s kontrolní skupinou (406,8 ng/ml). Předběžnou úpravou polysacharidy se AUC(0-24 h) echinakosidu zvýšilo o 6,6 procenta, 36,7 procenta a 63,6 procenta ve skupinách ZT, HM a LM ve srovnání s kontrolní skupinou, což prokázalo, že polysacharidy vykazovaly aktivita podpory vstřebávání malé molekuly. Tyto výsledky byly zcela podobné tomu, že chitooligosacharidy zlepšily biologickou dostupnost fenylethanoidových glykosidů v extraktu Fructus Forsythia [17] a polysacharidy Polygonum multiflorum zlepšily biofarmaceutické vlastnosti 2, 3, 5, 4′-tetrahydroxy-stilbenu{{38} O- -D-glukosid u normálních potkanů Sprague-Dawley [18]. Střevní mikroflóra obsahuje řadu enzymů souvisejících s metabolismem léčiv a mechanismy mikrobiomu utvářející farmakokinetiku a farmakodynamiku léčiv jsou stále neznámé [19]. Polysacharidy mohou vyživovat střevní mikroflóru posílením imunitního systému, vstřebáváním živin a omezením růstu patogenů [20,21]. Ačkoli literatura uvádí, že cistanche polysacharidy mohou zvýšit množství metabolitů echinakosidu (jako je akteosid) in vitro, nezjistili jsme, že by koexistující polysacharidy měly přínos pro přeměnu echinakosidu na akteosid in vivo [10,11].

3.3. Obsah SCFA ve výkalech potkanů
Střevní mikrobiota fermentované polysacharidy, produkující různé bioaktivní polymery a metabolity, jako jsou SCFA [3]. Jako hlavní metabolity polysacharidů byly SCFA analyzovány ve stolici. Bylo popsáno, že SCFA, včetně kyseliny octové, propionové a butyrátu, mají příznivé účinky na metabolismus glukózy, cholesterolu a lipidů. Acetát je hlavní SCFA v tlustém střevě a je důležitým substrátem pro syntézu cholesterolu, propionát je substrátem pro glukoneogenezi v játrech a butyrát je preferovaným energetickým substrátem kolonocytů a působí protizánětlivě ve střevě [22,23].
Naše výsledky ukázaly, že acetát byl hlavní SCFA tvořenou ve stolici u všech skupin, následovaný butyrátem a propionátem, zatímco koncentrace valerátů a rozvětvených SCFA (kyselina isomáselná a kyselina isovalerová) byly nižší. Bylo prokázáno, že acetát zvyšuje aktivitu enzymů v jaterní tkáni, což vede k lepší kontrole krevního cukru [24]. 2. 0 den (obr. 2) měla skupina LM významně vyšší hladinu acetátu (pb 0,05), podíl propionátu měl tendenci se snižovat a podíl butyrátu měl tendenci se zvyšovat, i když změna byla nevýznamná ve stolici ve srovnání s kontrolní skupinou.

Skupina HM však měla významně nižší podíl butyrátu než kontrolní skupina (pb 0,05). Obsah celkových SCFA mezi LM a HM měl opačný trend ve srovnání s kontrolní skupinou a pouze skupina LM měla významný rozdíl.
Hladinu SCFA ve stolici ovlivňuje mnoho faktorů, včetně složení a množství střevní mikroflóry, zdroje potravy a doby, za kterou potrava projde trávicím traktem [22]. Hromadné studie ukazují, že struktura polysacharidů, včetně složení monosacharidových zbytků, stupeň polymerace, obojí může ovlivnit fermentační vlastnosti a produkci SCFA [25]. Z našich výsledků můžeme usoudit, že cistanche polysacharidy modulují produkci SCFA a různé strukturní polysacharidy mají různé účinky.
3.4. Polysacharidy cistanche vyvolaly základní změny ve složení a diverzitě střevní mikroflóry
Bakteriální složení vzorků stolice (n=4) bylo zkoumáno pomocí vysoce výkonné sekvenační techniky Illumina. Knihovna byla sekvenována na platformě Illumina HiSeq2500 a byla vytvořena 250 bp párová čtení. Byly zpracovány pro taxonomickou identifikaci a analýzu diverzity. Rarefakční křivky (obr. 3a) ukázaly, že u každého vzorku se bohatost bakteriálního druhu vyrovnala s rostoucí hloubkou vzorkování, což naznačuje, že úsilí o sekvenování bylo dostatečné a že byla zachycena celková diverzita ve vzorku. Shannonova křivka (obr. 3b) ukázala, že počet unikátních bakteriálních druhů se zvyšoval se zvyšujícím se počtem identifikovaných sekvencí. Nasycení Shannonových křivek znamená, že sekvenační data byla dostatečná k pokrytí všech druhů bakterií.

Alfa analýza diverzity se používá k měření diverzity ve vzorku. Indexy diverzity Chao1, ACE, Shannon a Simpson byly vypočteny Tukeyho testem k popisu diverzity alfa. Analýza diverzity založená na indexech ACE a Chao 1 odhalila komunitní bohatství střevní mikroflóry na úrovni OTU. Indexy ACE a Chao 1 byly významně nižší ve vzorcích stolice skupiny LM ve srovnání s kontrolní skupinou (pb 0.05) (obr. 4a, b), což naznačuje, že druhová bohatost střevní mikroflóry byla snížena krmením LM. Analýza diverzity založená na indexech Shannon a Simpson odhalila komunitní diverzitu střevní mikroflóry. Při léčbě polysacharidy cistanche ve srovnání s kontrolní skupinou nedošlo k žádné zjevné změně v indexech diverzity Shannon a Simpson.

Polysacharidy cistanche vyvolaly velké změny v taxonech. Navíc ve čtyřech skupinách N98 procent OTU souviselo s kmeny Bacteroidetes, Firmicutes a Proteobacteria. Nejpřevládajícím kmenem byl Bacteroidetes s podílem 55.09 procent, 57,89 procent, 52,72 procent a 69.{{20}}4 procenta fekální mikroflóry v kontrole, ZT, HM a Skupiny LM, v tomto pořadí, následované Firmicutes, přispívající 41,39 procenty, 38.{26}{26}}3 procenty, 42,15 procenty a 28,15 procenty (obr. 5a, b). Ve srovnání s kontrolní skupinou bylo u skupiny ZT prokázáno, že má za následek slabé účinky na relativní četnost hlavních kmenů, kromě toho, že nízká četnost Actinobacteria byla významně zvýšena (MetaStat, pb 0,05). Ve skupině HM byly proteobakterie významně zvýšeny (pb 0,01). To naznačuje, že polysacharid HM Cistanche by mohl podporovat obohacení Proteobakterií za účelem ovlivnění metabolismu látek u potkanů. Ve skupině LM se početnost Bacteroidetes, jejichž hlavními přispěvateli byli Prevotellaceae a Prevotellaceae_UCG-001, významně zvýšila (pb 0,05) a početnost Firmicutes, včetně Peptococcaceae, se významně snížila.01p . Členové Prevotella a Bacteroides byli dříve popsáni jako degradátoři vlákniny [26], produkující konečné produkty metabolismu, jako je sukcinát a acetát [27]. Tato zjištění potvrdila předchozí studie ukazující, že některé druhy Prevotella spp. může degradovat komplexní rostlinné polysacharidy. Předchozí zprávy také ukázaly, že dvě dominantní bakteriální divize, zvýšený poměr kmene Firmicutes/Bacteroidetes, jsou spojeny s obezitou [28]. Nižší zastoupení prvního a vyšší zastoupení druhého ve skupině LM naznačovalo, že LM by mohla pomoci shodit kila.

Ze 72 detekovaných čeledí byly izolovány a analyzovány taxony top10 (obr. 5c, d). Lachnospiraceae a Ruminococcaceae jsou dvě z nejhojnějších čeledí vyskytujících se v prostředí střev savců a jsou spojovány s udržováním zdraví střev [29]. V této studii rodiny Bacteroidales_S24-7_skupina (39,11 ± 6,04 procenta, 36,88 ± 4,44 procenta, 28,37 ± 4,01 procenta, 35,81 ± 7,91 procenta), Prevotellaceae (10,6 procenta, 10,6 procenta, 10,6 procenta) Procento, 19,65 ± 8,97 procenta, 21,05 ± 8,39 procenta), Lachnospiraceae (18,21 ± 5,20 procenta, 15,09 ± 3,29 procenta, 12,13 ± 7,14 procenta, 13,12 ± 6,82 procenta) a Ruminoccaceae (9,64 ± 0,88 procenta, 10,44 ± 2,45 procent, 11,44 ± 2,45 procenta, 10,44 ± 2,45 procenta, 10,44 ± 2,45 procenta, 11,44 ± 2,45 procenta, 11,64 ± 0,88 procenta, 10,44 ± 0,88 procenta, 11,64 ± 0,88 procenta, 11,64 ± 0,88 procent. ± 4,70 procenta, 8,19 ± 1,72 procenta) dominovaly v každé skupině. Bylo publikováno, že rodina S24-7 obsahuje množství enzymů degradujících sacharidy [30]. Prevotellaceae vykazovaly vzestup a Lachnospiraceae vykazovaly klesající tendenci ve skupině polysacharidů ve srovnání s kontrolní skupinou [31]. Předpokládalo se, že u Bacteroidales_S24-7_skupiny a Lachnospiraceae nejsou žádné odpovídající enzymy aktivní na polysacharidy cistanche nebo moduly bakterií vázající sacharidy na polysacharidech. Rody Prevotella byly popsány ve spojení s lokusy využití polysacharidů a enzymy aktivními u sacharidů [32]. Za účelem nalezení vztahu mezi bakteriemi a SCFA byla použita Spearmanova korelační analýza. Některé rody jako Bacteroides, Prevotella a Lactobacillus ve střevní mikrobiotě hrají důležitou roli v hydrolýze polysacharidů na SCFA [33]. Naše výsledky také ukázaly, že Bacteroidaceae korelovala pozitivně a dominovala mikrobiota produkovala více butyrátu [34], zatímco Prevotellaceae korelovala pozitivně a dominovala mikrobiota produkovala více acetátu. Lactobacillaceae a Ruminococcaceae dominovaly v mikrobiotě produkující více propionátu (obr. 6).

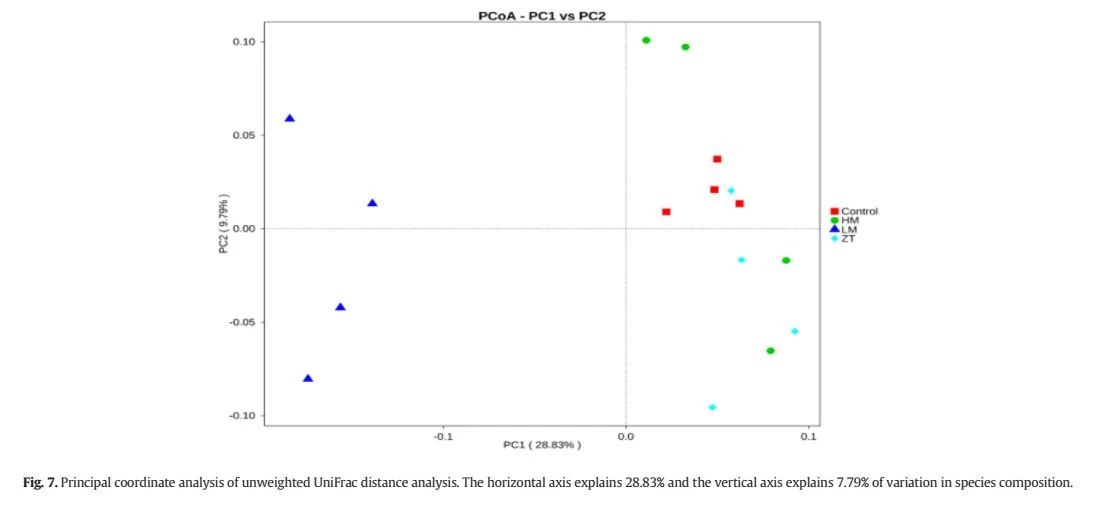
Analýza diverzity beta byla použita ke zkoumání strukturálních variací střevní mikroflóry napříč vzorky pomocí metriky vzdálenosti UniFrac. Rozdíly ve vzdálenostech Unifrac byly analyzovány Tukeyho a Wilcoxovým testem (obr. 7). Pomocí nevážené analýzy uniFrac jsme zjistili, že myši s krmivem LM se shlukují mimo jiné skupiny. Zjevný vzor shlukování byl identifikován pro kontrolní, ZT, HM a LM skupiny.
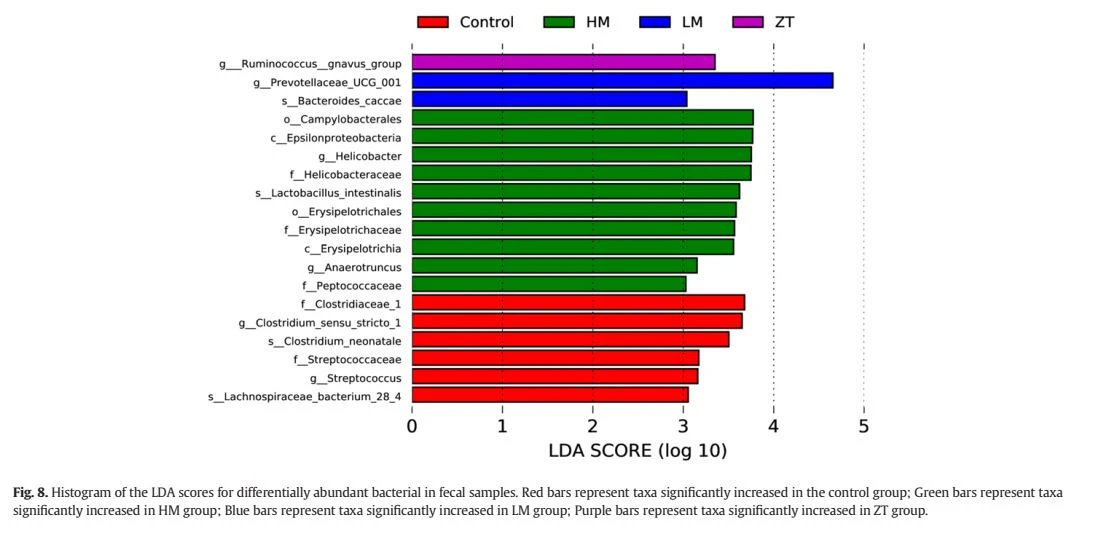
Množství těchto mikrobiálních látek bylo odlišně modulováno ošetřením polysacharidy. Pro identifikaci specifických bakteriálních taxonů v každé skupině bylo porovnáno složení mikroflóry z kontrolní skupiny, skupiny ZT, HM a LM metodou lineární diskriminační analýzy velikosti účinku (LEfSe). Lineární diskriminační analýza (LDA) se používá k výpočtu velikosti účinku každého rozdílně hojného prvku. Prahová hodnota skóre LDA je vyšší než v seznamu 4, což ukazuje na vyšší relativní zastoupení komunity v odpovídající skupině než v jiných skupinách. Pomocí této metody jsme zjistili, že 19 OTU se významně lišilo ve všech skupinách, konkrétně 6 OTU v kontrolní skupině bylo vyšší, pouze 1 OTU ve skupině ZT byl vyšší, 10 OTU ve skupině HM bylo vyšší a 2 OTUS ve skupině LM byly vyšší než u ostatních skupin (obr. 8). Množství g_Prevotellaceae_ UCG_001 v LM se významně zvýšilo (8,47 ± 1,9 procenta v LM, 0,40 ± {{21 }}.09 procent v kontrolní skupině, pb 0,01). Výsledek byl v souladu se zprávou, že polysacharidy Porphyra haitanensis a Ulva prolifera mohou zjevně podporovat proliferaci Prevotellaceae UGC-001 (pb 0,05) a Rikenellaceae RC9 (pb 0,01) [35].
4. závěr
Je jasné, že existuje vztah mezi chemickými složkami TCM, střevní mikroflórou a určitými metabolity pocházejícími ze střevních mikrobiálních látek. Naše současné poznatky poskytly metodu pro studium synergií metabolismu echinakosidu s různými druhy polysacharidů na bázi střevní mikrobioty. Střevní mikroflóra může metabolizovat TCM a TCM může ovlivnit růst střevní mikroflóry. Na jedné straně, po orálním podání polysacharidů do střeva, různé střevní mikroflóry kódují metabolické enzymy, které hrají důležitou roli při rozkladu polysacharidů a při produkci bioaktivních metabolitů. Na druhou stranu, příspěvky polysacharidů mají určitý dopad na rovnováhu střevního mikroprostředí v procesu. Prostřednictvím srovnání s polysacharidy nebo bez nich jsme zjistili, že polysacharidy, i když byly přímo nestráveny hostitelem, potenciálně působily jako prebiotika, což vedlo k příznivým změnám ve střevní mikrobiotě podporou růstu probiotik. Polysacharidy Cistanche regulovaly diverzitu střevní mikroflóry, zvyšovaly prospěšné bakterie a zvláště nízkomolekulární polysacharidy podporovaly růst Prevotella spp. Kromě toho zlepšená střevní mikroflóra pak zvýšila absorpci echinakosidu v Cistanche deserticola. Důvod však není zcela jasný, může být výsledkem kombinovaných defektů střevní mikroflóry, SCFA a imunity a pro model onemocnění je nezbytný další výzkum. Je těžké prokázat účinky prebiotik na zdravých zvířecích modelech, jejichž komunita mikroflóry je stabilní a odolná. Polysacharidy Cistanche deserticola mohou být vyvinuty jako probiotické produkty k regulaci střevní mikroflóry a mohou být v budoucnu použity pro synergický metabolismus malých molekul. Tyto údaje nám pomohou navrhnout intervence, které zabrání ohroženým skupinám lidí zlepšit jejich zdraví.
Prohlášení o konkurenčním zájmu
Autoři prohlašují, že ohledně zveřejnění tohoto příspěvku neexistuje žádný střet zájmů.
Poděkování
Autoři s vděčností oceňují National Natural Science Foundation of China (Grant č. 81830112 a 81904058)
Reference
[1] I. Khangwal, P. Shukla, Potenciální prebiotika a jejich přenosové mechanismy: recentní přístupy, J. Food Drug Anal. 27 (3) (2019) 649–656.
[2] XF Xu, PP Xu, CW Ma, J. Tang, XW Zhang, střevní mikroflóra, zdraví hostitele a polysacharidy, Biotechnol. Adv. 31 (2) (2013) 318–337.
[3] NT Porter, EC Martens, Kritické role polysacharidů ve střevní mikrobiální ekologii a fyziologii, Annu. Microbiol. 71 (2017) 349–369.
[4] QW Guo, QQ Ma, ZH Xue, XD Gao, HX Chen, Studie o vazebných charakteristikách tří polysacharidů s různou molekulovou hmotností a flavonoidů z kukuřičného hedvábí (Maydis stigma), Carbohyd. Polym. 198 (2018) 581–588.
[5] SS Zhou, J. Xu, H. Zhu, J. Wu, JD Xu, R. Yan, XY Li, HH Liu, SM Duan, Z. Wang, HB Chen, H. Shen, SL Li, střevní mikrobiota -zapojené mechanismy do zvýšení systémové expozice ginsenosidů koexistujícími polysacharidy v odvaru ženšenu, Sci. Rep. 6 (2016), 22474.
[6] YP Jing, AP Li, ZR Liu, PR Yang, JS Wei, XJ Chen, T. Zhao, YR Bai, LJ Zha, CJ Zhang, Absorpce saponinů Codonopsis pilosula koexistujícími polysacharidy zmírňuje střevní mikrobiální dysbiózu pomocí dextransulfátu sodného -indukovaná kolitida u modelových myší, Biomed. Res. Int. 2018 (2018), 1781036 (18 stran).
[7] CJ Chang, CS Lin, CC Lu, J. Martel, YF Ko, DM Ojcius, SF Tseng, TR Wu, YYM
Chen, JD Young, HC Lai, Ganoderma Lucidum snižuje obezitu u myší modulací složení střevní mikroflóry, Nat. Commun. 6 (2015) 7489.
[8] JC Zhang, GM Yang, YZ Wen, SX Liu, CF Li, RL Yang, W. Li, Střevní mikrobiota se podílejí na imunomodulačních aktivitách longan polysacharidu, Mol. Nutr. Food Res. 61 (11) (2017), 1700466.
[9] T. Wang, XY Zhang, WY Xie, Cistanche deserticola YC Ma, "Desert Ginseng": recenze, Am. J. Chin. Med. 40 (6) (2012) 1123–1141.
[10] Y. Li, GS Zhou, SH Xing, PF Tu, XB Li, Identifikace metabolitů echinakosidu produkovaných lidskými střevními bakteriemi pomocí ultravýkonné kapaliny
chromatografie – kvadrupólová hmotnostní spektrometrie s časem letu, J. Agr. Food Chem. 63 (30) (2015) 6764–6771.
[11] Y. Li, Y. Peng, MY Wang, PF Tu, XB Li, Lidský gastrointestinální metabolismus vodního extraktu Cistanches Herba in vitro: objasnění metabolického profilu na základě komplexní identifikace metabolitů v žaludeční šťávě, střevní šťávě, lidském střevě bakterie a střevní mikrozom, J. Agric. Food Chem. 65 (34)
(2017) 7447–7456.
[12] M. Dubois, K. Gilles, JK Hamilton, PA Rebers, F. Smith, Kolorimetrická metoda pro stanovení cukrů a příbuzných látek, Anal. Chem. 168 (4265) (1956) 167.
[13] NH Cho, SY Seong, KH Chun, YH Kim, IC Kwon, BY Ahn, SY Jeong, Nová slizniční imunizace konjugáty polysacharid-protein zachycenými v alginátových mikrosférách, J. Control. Vydání 53 (1–3) (1998) 215–224.
[14] XY Zhao, ZZ Jiang, F. Yang, Y. Wang, XM Gao, YF Wang, X. Chai, GX Pan, Y. Zhu, Citlivá a zjednodušená detekce vlivu antibiotik na dynamické a všestranné změny fekálního zkratu -řetězcové mastné kyseliny, PLoS One 11 (12) (2016), e167032.
[15] SJ Li, QP Xiong, XP Lai, X. Li, MJ Wan, JN Zhang, YJ Yan, M. Cao, L. Lu, JM Guan, DY Zhang, Y. Lin, Molekulární modifikace polysacharidů a výsledné bioaktivity , Compr. Rev. Jídlo. Sci. F. 15 (2) (2016) 237–250.
[16] ZF Fu, X. Fan, XY Wang, XM Gao, Cistanches Herba: přehled jeho chemických, farmakologických a farmakokinetických vlastností, J. Ethnopharmacol. 219 (2018) 233–247.
[17] W. Zhou, XB Tan, JJ Shan, T. Liu, BC Cai, LQ Di, Vliv chitooligosacharidů na
střevní absorpce fenylethanoidních glykosidů v extraktu Fructus Forsythia, Phytomedicine 21 (12) (2014) 1549–1558.
[18] LL Sun, M. Wang, HJ Zhang, GJ You, YN Liu, XL Ren, YR Deng, Vliv polysacharidů z Ophiopogon japonicus na 2,3,5,4′-tetrahydroxy -stilbene-2- Z. Fu a kol. / International Journal of Biological Macromolecules 149 (2020) 732–740 739 O- -d-glukosid o biofarmaceutických vlastnostech in vitro a farmakokinetice in vivo, Int. J. Biol. Macromol. 119 (2018) 677–682.
[19] KN Lam, M. Alexander, PJ Turnbaugh, Precizní medicína jde mikroskopicky: inženýrství mikrobiomu pro zlepšení výsledků léků, Cell Host Microbe 26 (1) (2019) 22–34.
[20] I. Khangwal, P. Shukla, Prospecting prebiotika, inovativní metody hodnocení a jejich zdravotní aplikace: přehled, 3 Biotech. 9 (5) (2019) 187.
[21] GR Gibson, R. Hutkins, ME Sanders, SL Prescott, RA Reimer, SJ Salminen, K. Scott, C. Stanton, KS Swanson, PD Cani, K. Verbeke, G. Reid, Mezinárodní vědecká asociace pro probiotika a prebiotika (ISAPP) konsensuální prohlášení o definici a rozsahu prebiotik, Nat. Rev. Gastro. Hepat. 14 (8) (2017) 491–502.
[22] JMW Wong, R. de Souza, CWC Kendall, A. Emam, DJA Jenkins, zdraví tlustého střeva: fermentace a mastné kyseliny s krátkým řetězcem, J. Clin. Gastroenterol. 40 (3) (2006) 235–243.
[23] SI Cook, JH Sellin, Přehledový článek: mastné kyseliny s krátkým řetězcem ve zdraví a nemoci, Aliment. Pharm. Ther. 12 (6) (1998) 499-507.
[24] H. Yamashita, K. Fujisawa, E. Ito, S. Idei, N. Kawaguchi, M. Kimoto, M. Hinamori, H. Tsuji, Zlepšení obezity a glukózové tolerance acetátem u diabetika 2. typu Otsuka Long- Potkani Evans Tokushima Fatty (OLETF), Biosci. Biotechnol. Biochem. 71 (5) (2007) 1236–1243.
[25] AL Ho, O. Kosik, A. Lovegrove, D. Charalampopoulos, RA Rastall, In vitro fermentabilita xylooligosacharidů a xylo-polysacharidových frakcí s různou molekulovou hmotností lidskými fekálními bakteriemi, Carbohyd. Polym. 179 (2018) 50–58.
[26] TT Chen, WM Long, CH Zhang, S. Liu, LP Zhao, BR Hamaker, Kapacita využití vlákniny se liší ve střevní mikrobiotě s dominancí Prevotella versus Bacteroides, Sci. Rep. 7 (1) (2017) 2594.
[27] M. Sakamoto, M. Ohkuma, Bacteroides sartorii je dřívější heterotypické synonymum pro Bacteroides chinchilla a mají přednost, Int. J. Syst. Evol. Micr. 62 (6) (2012) 1241–1244.
[28] PJ Turnbaugh, RE Ley, MA Mahowald, V. Magrini, ER Mardis, JI Gordon, Střevní mikrobiom spojený s obezitou se zvýšenou kapacitou pro získávání energie, Nature 444 (7122) (2006) 1027–1131.
[29] LF Gomez-Arango, HL Barrett, HD McIntyre, LK Callaway, M. Morrison, NM Dekker, Spojení mezi střevním mikrobiomem a metabolickými hormony v časném těhotenství u žen s nadváhou a obezitou, Diabetes 65 (8) (2016) 2214 –2223.
[30] KL Ormerod, DL Wood, N. Lachner, SL Gellatly, JN Daly, JD Parsons, CG Dal Molin, RW Palfreyman, LK Nielsen, MA Cooper, M. Morrison, PM Hansbro, P. Hugenholtz, Genomická charakterizace nekultivovaná čeleď Bacteroidales S24-7 obývající útroby homeotermických zvířat, Microbiom. 4 (1) (2016) 36.
[31] JD Zhang, LJ Song, YJ Wang, C. Liu, L. Zhang, SW Zhu, SJ Liu, LP Duan, Příznivý účinek Lachnospiraceae produkujících butyrát na stresem indukovanou viscerální hypersenzitivitu u potkanů, J. Gastro. Hepatol. 34 (8) (2019) 1368–1376.
[32] T. Accetto, G. Avguštin, Rozmanité a rozsáhlé degradační aparáty rostlinných polysacharidů bachoru a zadního střeva Prevotella species: faktor jejich všudypřítomnosti? Syst. Appl. Microbiol. 42 (2) (2019) 107–116.
[33] KE Bach Knudsen, MS Hedemann, HN Lærke, Role sacharidů ve zdraví střev prasat, Anim. Krmit. Sci. Tech. 173 (1–2) (2012) 41–53.
[34] SA Parker, A. Geirnaert, L. Berchtold, A. Greppi, L. Krych, RE Steinert, T. de Wouters, C. Lacroix, Pochopení prebiotického potenciálu různých dietních vláken pomocí in vitro modelu kontinuální fermentace dospělých (PolyFermS), Sci. Rep. 8 (1) (2018) 4318.
[35] ZS Zhang, XM Wang, SW Han, CD Liu, F. Liu, Účinek dvou polysacharidů z mořských řas na střevní mikrobiotu u myší hodnocený pomocí Illumina PE250 sekvenování, Int. J. Biol. Macromol. 112 (2018) 796–802.


