Funkce časové vazby dorzálního CA1 je kritická pro deklarativní vytváření paměti
Mar 14, 2022
Kontakt: Audrey Huaudrey.hu@wecistanche.com
Časová vazba, proces, který umožňuje asociaci mezi nesouvislými stimuly v paměti, a vztahová organizace, proces, který umožňuje flexibilitu deklarativních vzpomínek, jsou jak závislé na hippocampu, tak stárnutí. Nicméně, jak tyto dva procesy souvisejí při podpoře tvorby deklarativní paměti a jak jsou kompromitovány při ztrátě paměti související s věkem, zůstávají hypotetické. Zde identifikujeme příčinnou souvislost mezi těmito dvěma rysy dekorativní paměti. Časová vazba je nezbytnou podmínkou pro relační organizaci nesouvislých událostí. Ukázali jsme, že tvorba relační paměti je omezena schopností časové vazby, která závisí na dorzální (d)CA1 aktivitě v časových intervalech a se stárnutím se snižuje. Naopak, vztahová reprezentace je úspěšná i u starších jedinců, kdy je požadavek na časovou vazbu minimalizován, což ukazuje, že vztahová/deklarativní paměť sama o sobě není stárnutím narušena. Přemostění časových intervalů aktivitou dCA1 je tedy kritickým základem relační reprezentace a zhoršení tohoto mechanismu je odpovědné za zhoršení paměti související s věkem.
Výhoda produktů cistanche & cistanche: Zlepšuje paměť a schopnost učení
Naše schopnost vytvářet deklarativní vzpomínky závisí na hipokampu a tato kapacita se s věkem snižuje (1). Abychom identifikovali kritické determinanty této ztráty paměti související s věkem, prozkoumali jsme vztahy mezi dvěma základními funkcemi hipokampu, o nichž je známo, že jsou citlivé na věk.
Za prvé, hipokampus hraje zásadní roli při formování „relační organizace“, která spojuje nezávisle získané vzpomínky prostřednictvím společných prvků a následně podporuje zásadní flexibilitu deklarativní paměti, doloženou schopností vyvozovat závěry z paměti (2) nebo porovnávat samostatně získané vzpomínky. -formace, která povede k rozhodnutí o výběru v nové situaci (3.4). Tato kapacita je ohrožena stárnutím (5-9). Druhý. jak bylo navrženo před třemi desetiletími (9), hipokampus podporuje „časovou vazbu“, pomocí které lze diskrétní stimuly asociovat v paměti navzdory jejich časovému oddělení. Kritická role hipokampu v časové vazbě byla prokázána v „stopových“ kondičních úlohách, kde krátká časová mezera odděluje prezentaci podmíněného stimulu (CS) a nepodmíněného stimulu (US) (10-13). Tato funkce dočasné vazby je narušena stárnutím (14). Vztahová organizace a časová vazba jsou tedy dobře známé funkce hippocampu a jsou citlivé na stárnutí, ale potenciální vazby mezi těmito funkcemi v dekorativní paměti a jejím poklesem souvisejícím s věkem zůstávají hypotetické. Zde testujeme hypotézu, že přemostění časových mezer udržovaných hipokampem je nezbytnou podmínkou pro vztahovou organizaci vzpomínek (15,16).
Odhalit spojení mezi funkcí hipokampu v časové vazbě a organizaci vztahů a jejich kritickou rolí ve stárnutí. kombinovali jsme behaviorální, buněčné zobrazování a prostorově cílené intervenční přístupy podle dvoufázové strategie. Nejprve jsme použili postup kondicionování stopy k identifikaci limitu schopnosti dočasné vazby u mladých a starých myší. a prokázali s optogenetickými tods, že časová vazba závisí na dorzální (d)CAl aktivitě přes časové mezery. Poté jsme prokázali, že dCA1-závislá časová vazba je nezbytná pro rozvoj relační organizace vzpomínek a ztráta této aktivity hraje kritickou roli v poklesu relační paměti souvisejícím se stárnutím. Abychom prozkoumali vývoj relační organizace, použili jsme dvoufázovou úlohu v radiálním bludišti u myší a její virtuální analog u lidí. Kumulativní důkazy disociují výkon, když je hipokampus ohrožen mezi dvěma fázemi našeho úkolu. Mladé myši s hipokampálními lézemi nebo inaktivací (3.4). jako staré myši (5-7) běžně získávají asociace odměn jednotlivých paží prezentované postupně v počáteční fázi našeho úkolu, ale při následné výzvě k výběru mezi párem stejných paží selžou při výběru ramene s odměnou. testovací fáze. Podobně v druhé verzi našeho úkolu radiální bludiště a jeho virtuální analog pro lidi, staré myši (6). jako staří lidé (17). se může naučit jednotlivé páry paží (s jednou paží odměněnou a jednou paží neodměněnou v každém páru), ale selže ve výběru odměněné paže, když je v testovací fázi prezentován v rekombinovaném páru stejných paží. K interpretaci disociace navrhujeme, že pro flexibilní vyjádření paměti, jak bylo hodnoceno v testovací fázi, je zapotřebí relační organizace asociací mezi jednotlivými zkušenostmi paží vytvořenými během počáteční fáze učení. Naproti tomu učení adaptivních reakcí na jednotlivé paže nebo páry by se spoléhalo na jednoduché asociace stimul-odměna nebo stimul-odpověď získaná opakováním v počáteční fázi. Manipulací s časovou separací mezi jednotlivými zkušenostmi paže v počáteční fázi jsme zde potvrdili naši relační interpretaci a zjistili, že vytvoření relační reprezentace nezbytné pro flexibilní paměťové vyjádření je omezeno limity dCA1-závislé časové vazby.
cistanche
Výsledek
Aktivita buněk dCA1 přes časové mezery Nezbytná podmínka pro časovou vazbu a dostatečná podmínka pro zvrácení ztráty časové vazebné kapacity související se stárnutím.
Všechny experimenty byly provedeny v souladu s evropskou směrnicí 2010-63-EU a se souhlasem Výboru pro péči a použití zvířat Bordeaux University CCEA50 (číslo dohody A33-063-098: autorizace N stupeň 5012035A-N stupeň 1377). Mladé a staré myši byly trénovány v proceduře podmiňování strachu (obr. LA a SI metody). U mladých myší je zachování asociace CS-US omezeno na intervaly kratší než 60- s a vyžaduje aktivaci buněk neurony během akvizice (obr. 1 B a C). Získání kondicionování tónu bylo srovnatelné mezi všemi podmínkami sledování (stejně jako zachování kontextového kondicionování obr. S14), ale bylo zachováno pouze s intervaly sledování kratšími než 60 s. Zachování 24-h asociace tón-šok tedy mělo podobnou velikost mezi skupinami trénovanými pomocí 0-.{14}} nebo 20s intervaly sledování, ale bylo sníženo u myší trénovaných pomocí {{16 }}s interval trasování a null u myší trénovaných pomocí 60-s trasování (obr. 1B, test tónu). Odpovídajícím způsobem, kondicionování se stopovým intervalem menším než 60 s indukovalo specifickou aktivaci dCA1 neuronů. V dCA1 (ale ne v jiných studovaných oblastech) byla postkondicionační hladina Fos vyšší u myší trénovaných se stopou 20-s ve srovnání s myší trénovanou buď s 0-s nebo 60-s stopa (obr. 1B, Fos pro dCAl a obr. S1B, další struktury). Aktivace dCA1 je tedy spojena s kombinací požadavku a úspěchu v časové vazbě. Naopak optogenetická inhibice neuronů dCA1 během intervalu stop blokuje jinak úspěšné zachování asociace CS-US. U volně se pohybujících myší exprimujících inhibiční ArchT v dCA1 buňkách a chronicky implantovaných optickými vlákny v tomto hipokampálním podoblasti byla provedena přechodná inhibice dCA1 neuronální aktivity během kondicionování pomocí 20-s intervalu stop. Myši Archi se zapnutým světlem v každém intervalu stopy, které normálně získaly úpravu tónu stopy 20-(obr SiC.Lefi), byly významně narušeny v 24-hodinovém testu retence asociace tón-šok. jak s kontrolami GFP, tak s myšmi ArchT, které byly podrobeny kondicionování se zapnutým světlem během ekvivalentních období mimo interval sledování (obr. 1C, test tónu). Naproti tomu tónová úprava získaná za podmínek sledování 0-s nebyla ovlivněna rozsvícením světla v 20- periodě tónu bezprostředně předcházející výboji (obr. S1C). Také zachování kontextového kondicionování bylo pozoruhodně neovlivněno za všech podmínek inaktivace (obr. 1C, kontextový test). Konečně další experimenty ukázaly, že inhibice podoblasti dCA2/CA3 nevyvolala žádné poškození (obr. S1D), čímž se potvrdilo, že dohoda byla kritickou oblastí zapojenou do narušení časové vazby, i když marginální příspěvek extra CA1 buněk nemůže být vyloučeno. Neuronová aktivita dCA1 během intervalu stop je tedy nezbytnou podmínkou pro překlenutí časové mezery a umožnění spojení CS a US událostí v paměti. Naproti tomu duální neuronální aktivita se nezdá být kriticky potřebná pro spojení environmentálních podnětů do (relační) paměťové reprezentace kontextu. Vzhledem k tomu, že environmentální podněty jsou časově sousedící, současná disociace mezi stopovými a kontextovými vzpomínkami naznačuje selektivní roli buněčných buněk v časové vazbě v paměti.
Aktivace buněk během intervalu sledování zlepšuje věkem podmíněnou poruchu udržení asociace CS-US (obr. 1D a E). Srovnání mladých a starých normálních myší trénovaných s různými intervaly stop odhalilo snížení časové vazebné kapacity související s věkem. Mladé i staré myši úspěšně získaly podmiňovací úkol a vykazovaly významné zachování kontextového podmiňování (obr. 1D, kontextový test a obr. S1E). Naproti tomu (obr. 1D, test tónu), zatímco staré myši trénované s intervaly sledování 0- nebo 5-s vykazovaly významné 24-h zachování asociace tón-šok, myši trénované s 20-s interval trasování nevykazoval žádné zachování asociace CS-US. Tedy ani schopnost získat asociaci v průběhu času, ani schopnost vytvářet trvalé asociativní vzpomínky (jako kontextová paměť) obecně není u starých myší změněna. Stárnutí má za následek selektivní deficit v dlouhodobém zachování asociace mezi událostmi oddělenými 20 s, což odpovídá snížení kapacity pro časovou vazbu ve srovnání s mladými myšmi. Dále jsme zkoumali, zda toto selektivní poškození bylo způsobeno snížením neuronální aktivity dCAl přemosťujícím interval stop. Testovali jsme tedy, zda optogenetická aktivace neuronů dCAl během intervalu stop může zvrátit poškození související s věkem. U starých myší exprimujících aktivační channelrhodopsin 2 (ChR2) v neuronech dCA1 jsme porovnávali účinky aktivace „ve stopě“ a „mimo stopu“ a žádná aktivace dCA1 (5 Hz, 40s, třikrát) neproběhla během kondicionování pomocí stopa 40s, nejdelší interval stopy spojený s úspěšnou retenci u mladých myší (obr. 1B). Skupina trénovaná s aktivací dCA1 in-trace pouze vykazovala významnou retenci asociace tón-šok (obr. 1E). Udržování neuronální aktivity dCA1, ale ne dCA2/CA3 (obr. S1F) během intervalu stop mezi tónem a šokem je tedy dostatečné k obnovení zachování spojení mezi těmito událostmi u starých zvířat. Celkově tato zjištění odhalují, že neuronální aktivita dCA1 přemosťující stopový interval mezi CS a USA je nezbytnou podmínkou pro následné uložení asociace CS-US. U mladých myší překlenuje aktivita dCA1 časové mezery v délce až 40 s, což umožňuje, aby se samostatné CS a US události spojily v paměti. Tato dočasná vazebná kapacita dCAl buněk je u starých myší narušena, což vede k neschopnosti vytvářet asociativní vzpomínky na události oddělené více než několika sekundami.
Časová vazba podporovaná dCA1 je kritická pro rozvoj organizace relační paměti a nedostatek trvalé aktivity dCA1 během období časové vazby je příčinou ztráty relační paměti u myší související s věkem. Ke studiu role časové vazby při vytváření relační organizace umožňující flexibilní vyjádření paměti jsme použili úlohu v radiálním bludišti, ve které staré myši a myši s hipokampálním poškozením nebo hypofunkcí uspějí v učení se jednotlivým pažím ve fázi akvizice, ale selhávají. následný test flexibility (4-7). Předpokládá se, že tento selektivní deficit ve vyjadřování flexibilní paměti pochází z poškození relační organizace ramen bludiště a asociací odměny v paměti.
výhoda cistanche: Zlepšuje paměť a schopnost učení
Časová vazebná kapacita je limitujícím faktorem při vytváření vztahových/flexibilních pamětí.
Zde jsme manipulovali s časovým oddělením mezi jednotlivými učebními událostmi během akviziční fáze změnou intertriálního intervalu (ITI) mezi různými skupinami mladých a starých myší (obr. 24). Zvýšení ITI neinterferovalo s počátečním učením, protože všechny skupiny se naučily jednotlivé asociace paže-odměna podobným tempem (obr. S2A), ale výkon v testu flexibility se měnil s ITI a věkem (obr. 2B). Mladé myši tedy fungovaly stejně dobře ve sondě flexibility, když k po sobě jdoucím událostem došlo až 20 s od sebe během akvizice. S delšími ITI během učení se výkon následné sondy postupně snižoval a klesal na náhodnou úroveň, když ITI byla v 60. letech. Starší myši si vedly dobře v testu flexibility, když k učení došlo s ITI od 0- do 5-, ale výkon dramaticky poklesl, když učení probíhalo při delších ITI (již za 20 s). Tato zjištění ukazují, že jednotlivé zkušenosti paží získané během učení musí být vzájemně propojeny, aby se vytvořila flexibilní paměť. a taková organizace relační paměti je omezena časovou vazebnou schopností každého Ag. Zjištění tedy ukazují, že (i)flexibilní paměťová exprese hodnocená v našem úkolu v radiálním bludišti se spoléhá na relační paměťovou organizaci individuálních zkušeností paží, stejně jako jsme předpokládali a ()časová vazba je kritickým determinantem organizace relační paměti, která je základem flexibilního paměťového výrazu. Flexibilita jako taková tedy není u starých myší narušena, protože výkonnost testu byla normální, když původní učení nastalo při krátké ITI. Toto zjištění demonstruje, že relační/deklarativní paměť je při stárnutí normální, ale že je to právě redukce časové vazebné schopnosti nutné pro spojování nesouvislých událostí v paměti, která je zodpovědná za zjevnou degradaci relační/deklarativní paměti, ke které při stárnutí dochází.
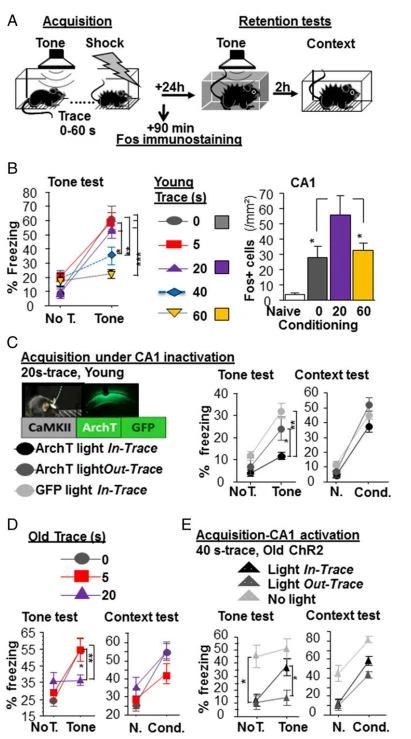
Obr. 1. Při kondicionování stopovým tónem a strachem je tvorba dlouhodobé paměti stopy CS-US asociace omezena na intervaly kratší než 60-s mezi CS a US, udržované aktivitou buněk CA1 napříč stopový interval a narušený stárnutím. (A) Protokol: Mladé (3- až 4-mo-staré) a staré (21- až 23-mo-staré) myši byly podrobeny akvizici kondicionování: tři párování tónu (CS) a mírného elektrického šoku do nohy (US) s časovým intervalem mezi těmito dvěma (stopa) buď 0, 5, 20, 40, nebo 60 s v závislosti na skupině. Mladé myši ze skupin 0-, 20- a 60- byly připraveny pro imunobarvení Fos. Zbývající myši byly podrobeny testům udržení „tónu“ a „kontextu“ den po kondicionování: procento času stráveného zmrazením během 2 minut vystavení tónu (v neutrálním kontextu) a kontextu kondicionování, v tomto pořadí, ve srovnání s procento zmrazení během 2 minut před tónem v neutrálním kontextu (srov. SI metody). (B) Chování a Fos zobrazování u mladých myší. (B, vlevo) Tónový test: 24-h zachování asociace tón–šok závisí na stavu stopy během kondicionování {dvoucestná ANOVA: významná stopa x tón [opakované (opakované) míry: žádný tón vs. tón] interakce (F4,38=15.457; P < 0.0001);="" tónový="" efekt="" byl="" významný="" pro="" všechny="" podmínky="" trasování="" kromě="" trasování="" 60-s="" [rep.="" míry:="" p="">< 0.{{190}}01="" pro="" 0-,="" 5-="" a="" 20-s="" trace,="" p="">< 0,01="" pro="" {{36="" }}s="" trace="" a="" p="0.201," nevýznamné="" (ns)="" pro="" 60-s="" trace]},="" což="" ukazuje,="" že="" úspěšná="" časová="" vazba="" v="" dlouhodobé="" paměti="" je="" omezena="" na="" méně="" než="" {{41}="" vzdálené="" podněty.="" naproti="" tomu="" ani="" získání="" kondicionování,="" ani="" zachování="" kontextového="" kondicionování="" nezáviselo="" na="" stavu="" stopy="" (srov.="" obr.="" s1a).="" n="8," 8,="" 8,="" 7="" a="" 12="" pro="" skupinu="" trasování="" 0-,="" 5-,="" 20-,="" 40-="" a="" 60-="" ,="" resp.="" (b,="" vpravo)="" ca1="" fos="" plus="" buňky="" měřené="" po="" fázi="" kondicionování="" jsou="" také="" závislé="" na="" stavu="" stopy="" [jednosměrná="" anova:="" významný="" účinek="" skupiny="" (f3,46="10.113;" p="">< 0,0001);="" post="" hoc:="" p="0.0156," p="">< 0,0001,="" respektive="" p="0,0031" pro="" 0-,="" 20-="" a="" 60-s="" vs.="" naivní;="" p="0.0102" a="" p="0.0299," v="" tomto="" pořadí,="" pro="" 0="" a="" 60="" s="" vs.="" 20="" s;="" a="" p="0.6219," ns="" pro="" 0="" vs.="" 60="" s],="" což="" ukazuje,="" že="" podmiňování="" vedoucí="" k="" maximální="" časové="" vazbě="" (tj.="" se="" stopou="" 20-s)="" je="" spojeno="" se="" specifickou="" aktivací="" ca1="" (srov.="" obr.="" s1b).="" n="16," 11,="" 11="" a="" 12="" pro="" naivní="" skupinu,="" 0-,="" 20-="" a="" 60-s,="" v="" tomto="" pořadí.="" (c)="" retenční="" účinky="" optogenetické="" inaktivace="" ca1="" během="" získávání="" 20-="" stopových="" podmínek="" u="" mladých="" myší.="" 24-h="" zachování="" kondicionování="" stopy="" tónu="" je="" změněno="" inaktivací="" během="" sledování="" ve="" srovnání="" s="" oběma="" kontrolními="" podmínkami="" [významná="" interakce="" skupina="" x="" tón="" (f2,52="6.812;" p="0.0024)" ;="" významná="" interakce="" pro="" ve="" trasování="" vs.="" mimo="" trasování="" (f1,{100}}.622;="" p="0.0043)" a="" vs.="" gfp="" (f1,40="12.951;" p="" {{107}="" }.0009),="" ale="" ne="" pro="" out="" of="" trace="" vs.="" gfp="" (p="0.4538," ns)].="" naproti="" tomu="" zachování="" kontextu="" hodnocené="" zmrazením="" rozdílu="" mezi="" neutrálním="" a="" podmiňujícím="" kontextem="" je="" u="" skupin="" podobné="" [skupina="" x="" kontext="" (rep.="" míry:="" neutrální="" vs.="" podmiňování):="" f2,52="2.278;" p="0.1126," ns]="" a="" in-trace="" inhibice="" ca2/ca3="" místo="" ca1="" nemá="" žádný="" vliv="" na="" retenci="" tónu="" (obr.="" s1d="" a="" s4,="" histologie).="" aktivita="" ca1="" v="" průběhu="" intervalu="" stopy="" během="" kondicionování="" je="" tedy="" nezbytnou="" podmínkou="" pro="" úspěšnou="" časovou="" vazbu="" cs="" a="" us="" v="" paměti.="" n="18," n="13" a="" n="24" pro="" trasování,="" mimo="" trasování,="" respektive="" gfp.="" (d)="" zachování="" kondicionování="" u="" starých="" myší.="" zachování="" úpravy="" tónu="" závisí="" na="" stopě,="" což="" naznačuje,="" že="" paměť="" asociace="" cs-us="" je="" zachována="" pouze="" v="" případě,="" že="" časové="" oddělení="" cs="" a="" us="" bylo="" kratší="" než="" 20="" s="" [významná="" interakce="" stopa="" x="" tón="" (f2,{129}="" }.341;="" p="0.0102);" tónový="" efekt="" je="" významný="" pro="" podmínky="" sledování="" 0-="" a="" 5-="" (rep.="" míry:="" p="0.0034" a="" p="0.0024," v="" tomto="" pořadí),="" ale="" ne="" pro="" {{="" 139}}s="" trasování="" (p="0.923," ns)].="" naproti="" tomu="" uchování="" kontextu="" je="" mezi="" skupinami="" do="" značné="" míry="" podobné="" (interakce="" trasování="" x="" kontext:="" f2,31="2.246;" p="0.1228," ns),="" stejně="" jako="" získání="" podmínění="" (srov.="" obr.="" s1e).="" schopnost="" dočasné="" vazby="" je="" tedy="" u="" starých="" myší="" omezena="" na="" méně="" než="" 20-s="" mezer="" a="" ve="" srovnání="" s="" mladými="" zvířaty="" je="" menší.="" n="12," 8="" a="" 14="" pro="" skupinu="" trasování="" 0-,="" 5-="" a="" 20-.="" (e)="" retenční="" účinky="" optogenetické="" aktivace="" ca1="" během="" získávání="" 40-="" stopových="" podmínek="" u="" starých="" myší.="" aniž="" by="" to="" ovlivnilo="" uchování="" kontextového="" kondicionování,="" aktivace="" in-trace="" (ale="" ne="" out-of-trace)="" umožňuje="" zachování="" kondicionování="" tónu,="" které="" se="" normálně="" u="" starých="" myší="" nezachovává="" [významná="" interakce="" skupina="" x="" tón="" (f2,15="5" .17;="" p="0.0196);" efekt="" tónu="" je="" významný="" pro="" skupinu="" ve="" sledování="" (p="0.0002)," ale="" ne="" v="" ostatních="" dvou="" skupinách="" (p="0.114," ns="" a="" p="0.335," ns="" ,="" respektive="" pro="" mimo="" stopu="" a="" žádné="" světlo)].="" aktivita="" ca1="" (ale="" ne="" ca2/ca3;="" srov.="" obr.="" s1f)="" napříč="" časovými="" mezerami="" je="" dostatečná="" k="" obnovení="" defektu="" časové="" vazby="" v="" paměti="" souvisejícího="" s="" věkem.="" všimněte="" si,="" že="" deficit="" související="" s="" věkem="" je="" spojen="" s="" celkově="" zvýšenými="" úrovněmi="" zmrazení,="" což="" naznačuje="" generalizaci="" strachu,="" která="" byla="" normalizována="" aktivací="" ve="" stopě="" i="" mimo="" ni.="" n="8," 5="" a="" 5="" pro="" skupiny="" in-trace,="" out-of-trace="" a="" no-light.="" *p="">< 0,05;="" **p="">< 0,01;="" ***p="">< 0,001.="" data="" jsou="" uvedena="" jako="" průměr="" ±="">
Výhoda produktů cistanche & cistanche: Zlepšuje paměť a schopnost učení
Časová pravidla vazby na aktivitu dCA1 během učení Analýzy aktivace Fos indukované učením asociací jednotlivých ramen odhalily zvýšení aktivace dCA1 závislé na ITI, podobné tomu, které bylo pozorováno v souvislosti se stopovým podmiňováním strachu. Bylo tedy zjištěno, že aktivace CA1 související s učením závisí na kombinaci požadavku a úspěchu v časové vazbě (obr. 2C). U mladých myší vedla silná poptávka po dočasné vazbě při úspěšném provedení sondy (20-s ITI) k vysokým hladinám aktivace Fos v dCA1. Aktivace Fos u dCA1 však byla menší nebo žádná, buď když nebyl požadavek na dočasnou vazbu a výkon sondy byl normální (0-s ITI), nebo když interval mezi zkouškami překročil dočasnou vazebnou kapacitu a výkon sondy selhal ({ {10} s ITI). Na rozdíl od mladých zvířat se neuronální aktivita dCA1 u starých myší nezískala napříč 20-s ITI, což odpovídá jejich špatné výkonnosti následného testu sondy po tréninku v této ITI. Místo toho byla aktivace Fos v dorzomediálním striatu větší u starších myší, nezávisle na délce trvání ITI (obr. S2B). Kromě toho je neuronální aktivita v dCA1 nezbytná pro časovou vazbu, která podporuje následnou flexibilní paměťovou expresi. Za prvé, místní infuze anestetika lidokainu byly prováděny u mladých myší před každým denním sezením počáteční fáze, ale ne před relací testu flexibility. Zjistili jsme, že inaktivace dCA1 (viz snížené hladiny Fos; obr. S2C) během celé akviziční fáze narušila výraz flexibilní paměti, když byla zvířata trénována v 20-s, ale ne 0- nebo 60-s ITI (obr. 2D), což má za následek snížení časové vazebné kapacity podobné té, která byla pozorována u starých myší. Za druhé, optogenetická inhibice CA1 během kritické 20-s ITI ve fázi akvizice také vedla k následnému poškození sondy flexibility (obr. 2E). Tento výsledek demonstruje závislost na zpracování informací dCA1 k překlenutí časové mezery. Nakonec bylo zjištěno, že cholinergní lék zachraňuje výkonnost sondy u starých myší v dávce, která současně obnovuje aktivaci dCA1 při kritické 20-s ITI (obr. S2D).
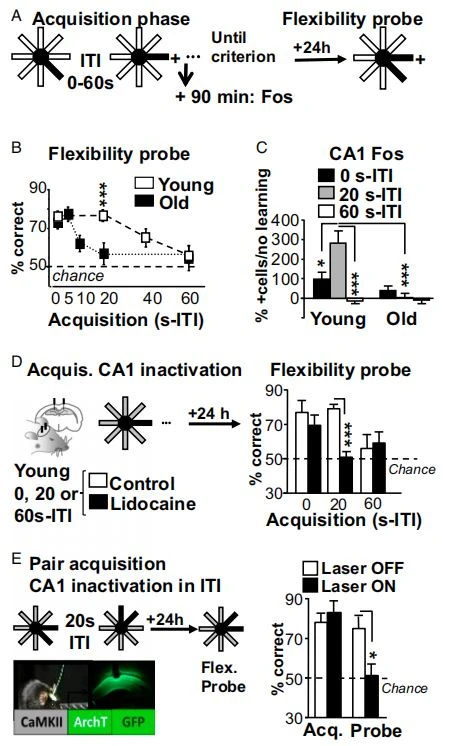
Obr. 2. Časová vazba udržovaná CA1 je kritickým determinantem tvorby deklarativní paměti a její degradace související s věkem: model radiálního bludiště u myší. (A) Protokol: Ve fázi akvizice se nezávislé skupiny mladých (3- až 4-mo-starých) a starých (21- až 23-mo-starých) myší naučily konstantní hodnota jídla ( plus )/žádné jídlo (-) odměňující každou paži prostřednictvím denních relací 24 po sobě jdoucích individuálních prezentací paží, oddělených ITI různé délky mezi skupinami. Pro behaviorální analýzy bylo každé zvíře trénováno, dokud nedosáhlo kritéria učení a 24 hodin poté bylo podrobeno sondě flexibility. V tomto testu zůstaly podmíněnosti odměn mezi rameny nezměněny, ale ramena byla nyní prezentována ve dvojicích, aby bylo možné posoudit flexibilní paměťové vyjádření jako model deklarativní paměti. Pro analýzy Fo byly připraveny skupiny myší po třetím tréninkovém sezení fáze akvizice (metody SI). (B) Sonda flexibility: Výkon závisí na podmínkách ITI, za kterých byly paměti kódovány, a to způsobem specifickým pro daný věk [věk x ITI (0-, 20- a 60-s ITI) : F2,46=4.975; P=0.0111; věkový efekt: P=0.0001, P=0,3967, nevýznamné (ns) a P=0,9 032, ns pro 20-, 0- a 60-s ITI]. Flexibilní paměťové vyjádření tedy spoléhá na schopnost propojit jednotlivé návštěvy paže v různých časových intervalech, přičemž schopnost je omezena na méně než {{30}}s oddělení intervencí u mladých myší [ITI (20-, {{ 32}} a efekt 60-s ITI): F2,17=5.045; P=0.{123}}19. Post hoc: 20 s vs. 40 a 60 s, P < 0,05]="" a="" pouze="" 5-s="" intervaly="" u="" starých="" myší="" [iti="" (0,="" 5,="" 10="" a="" 20="" s)="" efekt:="" f3="" ,26="5.011;" p="0.0071." post="" hoc:="" 0="" s="" vs.="" 20="" s,="" 5="" s="" vs.="" 10="" a="" 20="" s:="" p="">< 0,05].="" n="7" až="" 10="" na="" skupinu.="" ***p="">< 0,001="" vs.="" (c)="" ca1="" fos="" plus="" buňky="" u="" mladých="" a="" starých="" myší:="" trénink="" v="" akviziční="" fázi="" úkolu="" radiálního="" bludiště="" produkuje="" iti-dependentní="" vzorec="" aktivace="" ca1="" fos,="" který="" se="" podobá="" vzoru="" vyvolanému="" stopovým="" podmiňováním="" u="" mladých="" myší,="" ale="" toto="" aktivace="" není="" pozorována="" u="" starých="" myší="" [věk="" x="" iti="" (0-,="" 20-="" a="" 60-s="" iti):="" f2,59="5.582;" p="0.006;" věkový="" efekt:="" p="0,0002," p="0,2381," ns="" a="" p="0,885," ns="" pro="" 20-,="" 0-="" a="" {{85="" }}s="" iti].="" n="7" až="" 14="" na="" skupinu.="" (d)="" přechodná="" inaktivace="" ca1="" prostřednictvím="" lokální="" infuze="" lidokainu="" během="" akviziční="" fáze="" šetří="" získání="" individuální="" valence="" paže,="" bez="" ohledu="" na="" stav="" iti="" (srov.="" obr.="" s2c),="" ale="" způsobuje="" následné="" zhoršení="" výkonu="" v="" sondě="" flexibility="" v="" chodidle="" {{="" 90}s="" iti="" stav,="" při="" kterém="" normálně="" dochází="" k="" časové="" vazbě="" po="" sobě="" jdoucích="" výukových="" událostí="" [významná="" interakce="" lidokain="" x="" iti="" (f2,36="4.36;" p="0.0201);" lidokainový="" efekt:="" p="">< 0,0001,="" p="0,4546" a="" p="0,6934" ve="" stavu="" iti="" 20-,="" 0-="" a="" 60-s="" ],="" čímž="" napodobuje="" efekt="" stárnutí.="" n="6" až="" 8="" na="" skupinu.="" (e)="" optogenetická="" inaktivace="" ca1="" během="" {{108}s="" iti="" mezi="" událostmi="" ve="" fázi="" akvizice="" také="" způsobuje="" následné="" zhoršení="" výkonu="" sondy="" flexibility.="" zde="" jsme="" použili="" druhou="" verzi="" našeho="" návrhu="" radiálního="" bludiště="" (si="" methods),="" také="" používaného="" u="" lidí="" (obr.="" 3).="" počáteční="" akvizice="" samostatných="" párů="" byla="" ušetřena="" inaktivací="" ca1="" v="" 20-s="" iti,="" ale="" výkon="" byl="" výrazně="" snížen="" v="" „rekombinovaném“="" testu="" flexibility="" ve="" skupině="" „zapnuto="" laserem“="" ve="" srovnání="" s="" kontrolami="" [významná="" interakce="" skupina="" x="" akviziční="" sonda="" (f1,14="5.502;" p="0.034)]." ca1="" je="" tedy="" potřebný="" k="" překlenutí="" časové="" mezery="" a="" tato="" funkce="" dočasné="" vazby="" je="" klíčová="" pro="" organizaci="" vztahů="" udržující="" tvorbu="" flexibilní/deklarativní="" paměti.="" n="7" až="" 8="" na="" skupinu.="" *p="">< 0,05;="" **p="">< 0,01;="" ***p="">< 0,001.="" data="" jsou="" uvedena="" jako="" průměr="" ±="">
Souhrnně tato zjištění ukazují, že kritické zapojení dCA1 je nezbytnou podmínkou pro překlenutí časové mezery za účelem vytvoření organizace relační paměti a naznačují, že pokles deklarativní paměti související se stárnutím je důsledkem ohrožení funkce dCA1 v časové vazbě.
S věkem spojený pokles deklarativní paměti závisí na časové vazbě i u lidí. Aby se otestovala platnost výše uvedených závěrů o úloze časové vazby při vytváření flexibilní/deklarativní paměti pro lidskou senescenci, byli mladí a staří účastníci vybraní jako „kognitivně normální“ pro svůj věk (metody SI) podrobeni virtuálnímu analogu radiálního -úloha bludiště dříve používaná u myší (obr. 3A). Experimenty byly schváleny následujícími etickými komisemi: CPP Aquitaine (Comité de Protection des Personnes), CCTIRS (Comité Consultatif sur le Traitement de l'Information en Matière de Recherche dans le Domaine de la Santé) a CNIL (Commission Nationale de l'Informatique et des Libertés). Před jakýmkoli postupem souvisejícím se studií byl od všech účastníků získán písemný informovaný souhlas. Účastníci byli rozděleni do tří podmínek intertriálního intervalu (0-, 20- nebo 40-s ITI, odpovídající věku a výkonu v jiných kognitivních testech; obr. S3A a tabulka S1). Zatímco všechny věkové skupiny se normálně naučily počáteční páry (obr. 3B, vlevo), pouze ti, kteří trénovali s krátkým ITI (0 nebo 20 s), mohli provést test flexibility stejně jako mladší dospělí (obr. 3B, Vpravo, replikace obr. S3B a tabulka S2). Tak, jako u starých myší, snížení časové vazby způsobuje s věkem související poškození v organizaci vztahů, což umožňuje flexibilní vyjádření paměti.
Výhoda produktů cistanche & cistanche: Zlepšuje paměť a schopnost učení
Diskuse
Současné poznatky u myší a lidí zakládají příčinnou souvislost mezi dvěma dobře známými a na věk citlivými funkcemi hipokampu: časovou vazbou a vztahovou organizací vzpomínek. Ukazujeme, že (i)časová vazba je nezbytnou podmínkou pro propojení zážitků oddělených krátkými časovými intervaly do organizované reprezentace, která podporuje flexibilní paměťové vyjádření, charakteristické pro deklarativní paměť, a ()časová vazba kritická pro výkon závisí na aktivitě dCA1 napříč časovými mezerami. mezi zážitky. Naše studie tak potvrzuje důležité hypotézy stanovené v průběhu historie výzkumu hipokampální funkce v souvislosti s časem, tvorbou paměti a kognitivním stárnutím (9,12,15,18-23).
Na psychologické úrovni naše paralelní přístupy ve stopovém podmiňování a učení v radiálním bludišti ukazují, že kapacita časové vazby je limitujícím faktorem při vytváření relační organizace spojené s deklarativní pamětí. U mladých a starých myší byla schopnost spojovat nespojité zkušenosti jednotlivých paží do vztahové paměti omezena na propojení zážitků ve stejných intervalech jako ta, která podporuje asociaci CS-US ve stopovém podmiňování. V úloze radiálního bludiště se tedy vzpomínky na jednotlivé zážitky vytvořily opakovanými expozicemi každému jednotlivému rameni, ale relační organizace se vytvořila pouze tehdy, když časové oddělení umožnilo časovou vazbu, což je kapacita měřená nezávisle v našich testech na kondicionování stop. .
Zjištění identifikují s věkem související snížení časové vazebné kapacity jako primární příčinu zhoršení paměti. Kromě toho tyto výsledky podporují závěr, že schopnost tvořit relační organizaci jako taková není narušena normálním stárnutím, ale spíše je narušena pouze tehdy, když je narušena časová vazba mezi zkušenostmi. Relační organizace pro prostorovou paměť byla u starých myší a lidí nedotčena, pokud byl požadavek na časovou vazbu minimalizován časovou blízkostí zkušeností s učením. Tato zjištění zpochybňují obecně zastávaný názor, že stárnutí způsobuje poruchy deklarativního (1,24) a prostorového učení a paměti (25,26), a naznačují možnost, že tyto deklarativní úkoly citlivé na stárnutí zahrnují požadavek na vázání vzpomínek v průběhu času.
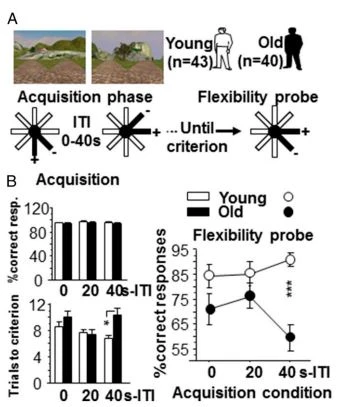
Obr. 3. S věkem spojený pokles flexibilní/deklarativní paměti závisí na časové vazbě u lidí: úloha virtuálního radiálního bludiště. (A) Protokol: Ve fázi akvizice, mladí (18- až 25-r; n=43) a staří (59- až 75-r staří ; n=40) účastníků se naučilo konstantní odměňování (plus, virtuální mince)/žádné odměňování (−) každého ramene prostřednictvím postupných prezentací invariantních párů (1 rameno plus, 1 rameno-), oddělených ITI 0, 20 nebo 4{{40}} s v závislosti na skupině, dokud nedosáhnete kritéria učení. V sondě flexibility zůstaly podmíněnosti odměny mezi rameny nezměněny, ale ramena byla přeskupena do nových párů, aby se vyhodnotila flexibilní paměťová exprese. Účastníci byli zařazeni mezi podmínky ITI podle jejich věku a výkonu v dalších kognitivních testech (metody SI, obr. S3A a tabulka S1). (B) Výsledky: Při akvizici potřebovali starší účastníci více školení, aby dosáhli učebního kritéria, ale nakonec se úkol naučili stejně jako mladí účastníci, bez ohledu na podmínky ITI (vlevo nahoře: věk konečného výkonu, ITI a věk x ITI: všechny P > 0.14, nevýznamné (ns); Vlevo dole: pokusy o vliv kritéria na věk: F1,{{20}}.02, P=0 .0164; ITI a věk x ITI: P=0.0676, ns a P=0.0729, ns). Naproti tomu u sondy flexibility došlo k poškození souvisejícímu s věkem v závislosti na podmínkách ITI, za kterých byl úkol získán [Vpravo: věk flexibility x ITI (F2,77=3.473, P=0 0,036); významný efekt ITI ve věkových skupinách (F2,37=3,828, P=0,0308; post hoc 40 s vs. 0 a 20 s, P < 0,05),="" ale="" ne="" u="" mladých="" (p="" {{44="" }}.74,="" ns);="" významný="" vliv="" na="" věk="" pro="" 40-="" (p="">< 0,0001),="" ale="" ne="" 0-="" nebo="" 20-s="" iti="" (vše="" p=""> 0,057, ns)]. Ztráta flexibility související s věkem je tedy způsobena snížením schopnosti dočasné vazby. n=10 až 18 na skupinu. ***P < 0,001.="" data="" jsou="" uvedena="" jako="" průměr="" ±="">
Současná zjištění nejen ukazují, že časová vazba je kritickým determinantem tvorby deklarativní paměti a jejího poklesu souvisejícího s věkem, ale také poskytují potenciální základ pro sladění dvou protichůdných teorií hipokampální funkce, prostorového mapování a deklarativní paměti. byly studovány na zvířatech a na lidech, což ztěžuje jejich srovnání. Společným rysem prostorového mapování a deklarativní paměti je však to, že obě umožňují flexibilní vyjádření vzpomínek v modifikovaných testovacích situacích. Současná pozorování tedy naznačují, že časová vazba hraje kritickou roli jak v prostorovém mapování, tak v deklarativní paměti tím, že podporuje schopnost vytvářet organizace relační paměti.
Jaké by mohly být základní mechanismy časové vazby v dCA1? Zvláštností časově vzdálených stimulů je, že je nelze asociovat v paměti prostřednictvím Hebbových mechanismů synaptické plasticity, o kterých je známo, že udržují tvorbu dlouhotrvajících asociací mezi současně se vyskytujícími stimuly (27). Hebbova plasticita je spouštěna koaktivací neuronových sestav kódujících každý stimul během učení. Aby se překonalo omezení Hebbovské plasticity pro spojování událostí oddělených v čase, přítomnost časových buněk v podpole CAL (20) poskytuje potenciální mechanismus, kterým mohou být různé události oddělené v čase spojeny v paměti (20.22.23. 28). . A to. Bylo zjištěno, že časové buňky střílejí v po sobě jdoucích okamžicích během prázdného časového intervalu mezi klíčovými událostmi, takže populace buněk společně zaplnila časovou mezeru a překlenula časové intervaly mezi událostmi. Takové sekvence časových buněk v CA1 během časových intervalů by indukovaly Hebbovu plasticitu mezi postupně aktivovanými buňkami a v konečném důsledku by tak mohly podporovat tvorbu asociace mezi časově oddělenými událostmi. Tato hypotéza implikuje, že aktivita CAl buněk v časových intervalech mezi událostmi musí být nezbytnou podmínkou pro kódování dlouhotrvající asociativní paměti těchto událostí, jak ukazují současné studie využívající optogenetické manipulace. Naše zjištění jsou tedy kompatibilní s hypotézou časové buňky, i když přímo neidentifikují „časové buňky“ jako základní mechanismus. Je skutečně překvapivé, že udržování náhodně vybrané podskupiny buněk umělou aktivací bylo dostatečné k obnovení deficitu paměti souvisejícího s věkem. Je však možné, že umělá stimulace několika buněk v dCAl by mohla vést k současné aktivaci velkých sestav prostřednictvím rekurentní kolaterální aktivace, a tím indukovat Hebbovu plasticitu v synaptických kontaktech uvnitř sestav a s buňkami aktivovanými právě probíhající událostí. před a po intervalu. Optogenetická stimulace několika buněk dCAl by tedy mohla umožnit vytvoření asociace napříč intervalem u starých myší, kterým chybí (spontánní) aktivace časových buněk, což by přirozeně umožnilo proces dočasné vazby u mladých dospělých zvířat. Ať je to jakkoli, naše zjištění jsou v souladu s pozorováními o ztrátě vzrušivosti buněk CAl související s věkem (18,29, 30) jako potenciálním zdroji snížení časové vazebné kapacity.
Závěrem lze říci, že naše studie identifikuje přemostění časových intervalů aktivitou dCAl jako kritický determinant relační organizace, která si zachovává charakteristickou flexibilitu vyjádření deklarativní paměti, a ukazuje, že zhoršení časového vazebného mechanismu je primární příčinou deklarativní paměti související s věkem. poškození.

Výhoda produktů cistanche & cistanche: Zlepšuje paměť a schopnost učení
Odkaz
1 Leal SL, Yassa MA (2015) Neurokognitivní stárnutí a hippocampus napříč druhy. Trends Neurosci 38:800–812.
2. Bunsey M, Eichenbaum H (1996) Zachování funkce paměti hipokampu u krys a lidí. Příroda 379:255–257.
3. Etchamendy N, Desmedt A, Cortes-Torrea C, Marighetto A, Jaffard R (2003) Hipokampální léze a diskriminační výkon myší v radiálním bludišti: Ušetření nebo poškození v závislosti na reprezentativních požadavcích úkolu. Hippocampus 13:197–211.
4. Mingaud F, a kol. (2007) Hipokampus hraje kritickou roli při kódování nesouvislých událostí pro následnou deklarativní paměťovou expresi u myší. Hippocampus 17:264–270.
5. Etchamendy N, et al. (2001) Zmírnění selektivního deficitu relační paměti související s věkem u myší farmakologicky indukovanou normalizací mozkové retinoidní signalizace. J Neurosci 21:6423–6429.
6. Marighetto A, et al. (1999) Knowing which and know what: Potenciální myší model pro věkem podmíněný pokles lidské deklarativní paměti. Eur J Neurosci 11: 3312–3322.
7. Mingaud F, a kol. (2008) Retinoidní hyposignalizace přispívá ke stárnutí souvisejícímu poklesu funkce hipokampu v organizaci krátkodobé/pracovní paměti a kódování dlouhodobé deklarativní paměti u myší. J Neurosci 28:279–291.
8. Rapp PR, Kansky MT, Eichenbaum H (1996) Učení a paměť pro hierarchické vztahy u opice: Účinky stárnutí. Behav Neurosci 110:887–897.
9. Rawlins JN, Tsaltas E (1983) Hipokampus, čas a pracovní paměť. Behav Brain Res 10:233–262.
10. LaBar KS, Disterhoft JF (1998) Kondice, povědomí a hippocampus. Hippocampus 8:620–626.
11. Clark RE, Squire LR (1998) Klasické kondiční a mozkové systémy: Role uvědomění. Science 280:77–81.
12. Huerta PT, Sun LD, Wilson MA, Tonegawa S (2000) Tvorba časové paměti vyžaduje NMDA receptory v pyramidálních neuronech CA1. Neuron 25:473–480.
13. Solomon PR, Vander Schaaf ER, Thompson RF, Weisz DJ (1986) Hippocampus a stopové podmiňování králičí klasicky podmíněné odezvy niktitační membrány. Behav Neurosci 100:729–744.
14. Disterhoft JF, Oh MM (2007) Změny ve vnitřní neuronální dráždivosti během normálního stárnutí. Stárnoucí buňka 6:327–336.
15. Valdštejn GV, Eichenbaum H, Hasselmo ME (1998) Hipokampus jako asociátor nesouvislých událostí. Trends Neurosci 21:317–323.
16. Staresina BP, Davachi L (2009) Mind the gap: Vazba zkušeností napříč prostorem a časem v lidském hipokampu. Neuron 63:267–276.
17. Etchamendy N, Konishi K, Pike GB, Marighetto A, Bohbot VD (2012) Důkaz pro virtuální lidskou analogii úlohy vztahové paměti hlodavců: Studie stárnutí a fMRI u mladých dospělých. Hippocampus 22:869–880.
18. Disterhoft JF, Wu WW, Ohno M (2004) Biofyzikální změny hipokampálních pyramidálních neuronů při učení, stárnutí a Alzheimerově chorobě. Aging Res Rev 3: 383–406.
19. Hales JB, Brewer JB (2010) Aktivita v oblasti hipokampu a neokortikální pracovní paměti předpovídá úspěšnou asociativní paměť pro časově nespojité události. Neuropsychologia 48:3351–3359.
20. MacDonald CJ, Lepage KQ, Eden UT, Eichenbaum H (2011) Hippokampální „časové buňky“ překlenují mezeru v paměti pro nesouvislé události. Neuron 71:737–749.
21. Kraus BJ, Robinson RJ, II, White JA, Eichenbaum H, Hasselmo ME (2013) Hippocampal "time cells": Time versus path integration. Neuron 78:1090–1101.
22. Eichenbaum H (2013) Paměť na čas. Trendy Cogn Sci 17:81–88.
23. Kitamura T, Macdonald CJ, Tonegawa S (2015) Entorhinálně-hipokampální neuronové okruhy přemosťují časově nesouvislé události. Naučte se Mem 22:438–443.
24. Grady CL, a kol. (1995) Snížení lidské rozpoznávací paměti související s věkem kvůli zhoršenému kódování. Science 269:218–221.
25. Burke SN, Barnes CA (2006) Neurální plasticita ve stárnoucím mozku. Nat Rev Neurosci 7: 30–40.
26. Gallagher M, Rapp PR (1997) Použití zvířecích modelů ke studiu účinků stárnutí na kognici. Annu Rev Psychol 48:339–370.
27. Nabavi S, a kol. (2014) Vytváření paměti pomocí LTD a LTP. Příroda 511:348–352.
28. Kitamura T, a kol. (2014) Ostrovní buňky řídí časovou asociační paměť. Science 343:896–901.
29. Kaczorowski CC, Disterhoft JF (2009) Paměťové deficity jsou spojeny se zhoršenou schopností modulovat neuronální excitabilitu u myší středního věku. Naučte se Mem 16: 362–366.
30. Murphy GG, Shah V, Hell JW, Silva AJ (2006) Výzkum věkem podmíněného kognitivního poklesu pomocí myší jako modelového systému: Neurofyziologické koreláty. Am J Geriatr Psychiatry 14:1012–1021?
31. Potier M, et al. (2016) Časová paměť a její posílení estradiolem vyžaduje povrchovou dynamiku hipokampálních CA1 N-methyl-D-aspartátových receptorů. Biol Psychiatry 79:735–745.