Část 3: Co jsou neurální kódy paměti během spánku?
Mar 10, 2022
další informace:ali.ma@wecistanche.com
Mozkové rytmy ve spánku
Pomalá oscilace (0,5–1 Hz)
Během SWS neokortikální aktivita zobrazuje synchronizované pomalé vlny mezi 0,5 a 1 Hz, které jsou spojeny se střídáním mezi rozšířenou hyperpolarizací a sníženým neuronálním pálením během stavu DOWN, a stavy UP, které jsou spojeny s rozšířenou depolarizací a zvýšeným neuronálním střelba. Kortikální pomalé oscilace také zasahují a zasahují do hipokampálních a thalamických okruhů.
Delta vlna (1–4 Hz)
Mozková vlna s vysokou amplitudou s frekvencí oscilace mezi 1 a 4 Hz. To je prominentní během SWS.
Theta oscilace (4–9 Hz)
Během REM spánku hipokampus hlodavců vykazuje theta oscilace podobné těm, které jsou pozorovány během bdělého průzkumu.
Oscilace vřetena (9–15 Hz)
Během SWS thalamus a neokortex vykazují krátké výbuchy EEG oscilací mezi 9 a 15 Hz, typicky trvající 0,5–2 sekundy. Spánková vřeténka se často vyskytují v neokortikálním UP stavu a jsou dočasně zarovnána s hipokampálními zvlněními.
Gama oscilace (35–120 Hz)
Během SWS záznamy EEG lidí a hlodavců ukazují gama oscilace v nízkých (35–50 Hz) a vysokých (60–120 Hz) frekvenčních pásmech.
Hippokampální ostré vlnění (SWR, 150–300 Hz)
Komplex SWR se skládá z velkých amplitudově ostrých vln v hipokampálním LFP a související rychlé LFP oscilační aktivity filtrované mezi 150 a 300 Hz, typicky trvající 50–100 milisekund. Záblesky SWR mohou trvat až 400 milisekund.

Box 2
Metody pro analýzu aktivity špiček související se spánkem
Klikněte na Cistanche v Urdu pro zlepšení paměti
Korelační analýza
Korelační analýza počítá sílu Pearsonovy korelace mezi dvěma neurony na základě jejich aktivačních aktivit ve WAKE a SLEEP; síla nulového zpoždění, koaktivace párového spouštění buněk určuje podobnost mezi vzory neuronových spouštění ve WAKE a SLEEP [9]. Metoda "vysvětleného rozptylu" posuzuje, do jaké míry lze dodatečný rozptyl v korelaci po SPÁNKU vysvětlit hodnotami ve WAKE při zohlednění struktury před SPÁNKEM [11].
Přizpůsobení šablony
Porovnání šablon porovnává dvě matice počtu špiček (uspořádané podle času), které jsou dočasně sdruženy a vyhlazené [12,31,42], a hodnotí, zda je reaktivace v párové aktivitě koherentní napříč neuronovými soubory. Výsledek porovnávání šablon je citlivý na velikost časové přihrádky a síla jeho korelace se mezi různými komprimovanými časovými stupni liší.

Sekvenční párování
Sekvenční párování je kombinatorická metoda pro zkoumání sekvenčních vzorců spouštění aktivity špiček populace. Vypočítává pravděpodobnost shody převodem neuronových příkazů k výstřelu na slovo, porovnává pravděpodobnost shody mezi dvěma slovy (jedno ve WAKE a druhé ve SLEEP) a určuje statistickou významnost shody [26,32]. Metoda sekvenčního párování je citlivá na načasování špiček (a následně na detekci a třídění špiček) a počet aktivovaných buněk ve SLEEP.
Analýza hlavních komponent a analýza nezávislých komponent
Analýza hlavních komponent (PCA) rozšiřuje korelační metodu a hodnotí podobnost mezi dvěma korelačními maticemi mezi WAKE a SLEEP [43,58]. Vypočítává sílu reaktivace mezi dvěma šablonami a poskytuje okamžitou míru podobnosti mezi WAKE a SLEEP. Velká hodnota síly reaktivace ukazuje na dobrou podobnost (obr. 4a). Síla reaktivace však pozitivně koreluje s rychlostí neuronových výbojů a přímo neodhalujePaměťobsah souborových střeleckých vzorů. Metoda PCA předpokládá, že korelační statistika je stacionární v rámci WAKE i SLEEP, což je nejsilnější omezení v přítomnosti nestacionárních neuronálních spiking dat. Nezávislá analýza komponent (ICA) rozšiřuje metodu PCA a nachází lineární projekční prostor, který odděluje statisticky nezávislé zdroje. Metoda ICA je koncepčně podobná metodě PCA s tím rozdílem, že je zde další krok ICA následovaný PCA [59]. Jak PCA, tak ICA patří k metodě lineárního podprostoru, proto nemohou zachytit žádnou nelineární transformaci a jejich síly reaktivace pozitivně korelují s kvadratickou silou temporální rychlosti střelby per se.
Topologická analýza
Algebraická topologie je matematický nástroj, který byl vypůjčen ke studiu hipokampálního neuronového kódování pro prostorovou topologii [60–62]. Je zaměřen na výpočet abstraktních topologických vlastností z odvozeného topologického objektu a jejich použití k odvození skupinového vztahu v rámci neuronů.
Dekódování populace
Dekódování populace je výpočetní přístup, který využívá statistiku nebo teorii informace k extrakci kvantitativních informací z vrcholové aktivity nervového souboru [63]. Přístup dekódování populace vytváří určité statistické předpoklady o aktivitě špičky populace (např. nezávislý Poissonův předpoklad) a používá pravděpodobnost nebo Bayesovu inferenci k dekódování obsahu kódů populace. Dohlíží se na jednu třídu dekódovacího přístupu, která vyžaduje informace o receptivním poli o jednotlivých neuronech [64,65]; jiná třída dekódovacího přístupu je bez dozoru, což nevyžaduje žádné receptivní pole nebo měření chování [66–68] (obr. 4b). Systematické srovnání těchto dvou typů metod dekódování populace v hipokampu spojeném se spánkemPaměťstudie jsou uvedeny v [69].
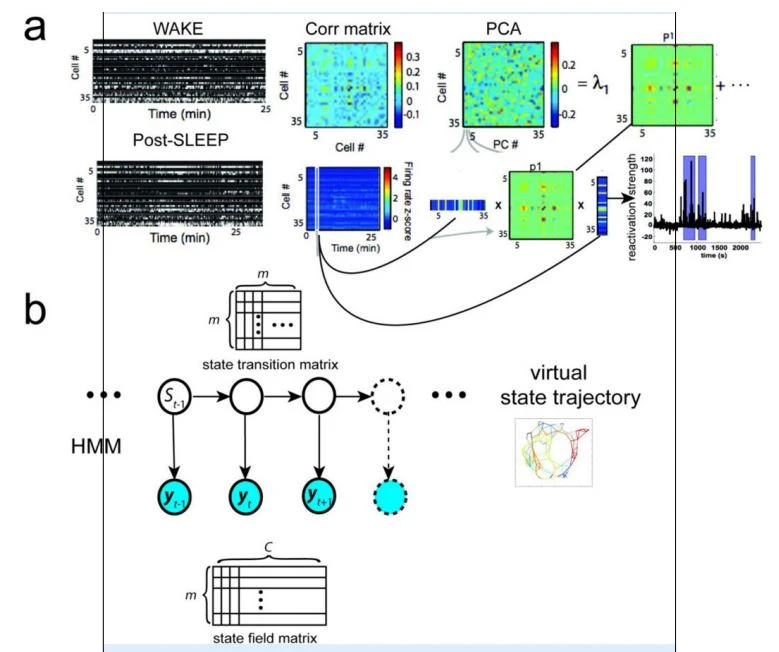
Rámeček 2 OBRÁZEK I. Nezaujaté hodnocení kódů neuronové populace související se spánkem
(a) Analýza hlavních komponent (PCA) pro výpočet podobnosti dvou šablon korelačních matic z populačních špiček (WAKE a SLEEP) a posouzení síly reaktivace během spánku (reprodukováno se svolením, [43]). V WAKE jsou {λ,1,p1} spojeny s dominantní hlavní složkou (PC) extrahovanou z PCA. V režimu SLEEP se počítá časově proměnná síla reaktivace. (b) Dekódování populace bez dozoru pomocí konečného skrytého Markovova modelu (HMM). Konkrétně je prostorové prostředí reprezentováno konečným diskrétním stavovým prostorem. Trajektorie napříč prostorovými umístěními ("stavy") jsou spojeny s konzistentními vzorci špiček hippocampu, které jsou charakterizovány maticí stavových přechodů. Z matice stavových přechodů je odvozen graf topologie, který definuje konektivitu ve stavovém prostoru [69]. V těchto dvou metodách se nepředpokládá neuronální RF a velikost bin v Post-SLEEP je nezávislá na velikosti bin použité v WAKE. Vzhledem k tomu, že pořadí WAKE a SLEEP lze přepínat, je možné tyto metody nejprve aplikovat na data SLEEP a poté zkoumat jejich význam v chování WAKE; proto oba spadají do nového paradigmatu („Paměťprvní, znamená později").
Trendy Box
Thalamus (subkortikální struktura) hraje důležitou roli v senzorickém hradlování,
regulace vzrušení a generování thalamokortikálních spánkových vřetének. K úplnému rozpitvání
spojené se spánkemPaměť, je důležité porozumět třístranné komunikaci
mezi hipokampálně-neokortikálními, thalamokortikálními, kortiko-talamickými okruhy ve spánku.
Kombinace elektrofyziologie, zobrazování, virtuální reality a optogenetiky v
experimentální výzkumy mohou významně rozšířit naše chápání neurálních
podkladové kódyPaměťa spát.
Optogenetika se ukázala jako účinná při testování kauzální role nervových okruhů
Paměťkonsolidace a je cenná pro tvorbufalešné vzpomínky. Nalezení efektivní
prostředky pro konsolidacifalešné vzpomínkymůže mít významný dopad na budoucnost
chování.
Překlenutí mezer ve výzkumu mezi hlodavci a subhumánními/lidskými primáty v
spánkové studie jsou klíčem k rozboru obvodových mechanismů při konsolidaci různých
formyvzpomínkya poskytnout další pohledy na léčbu neurologických
a psychiatrická onemocnění.
Nevyřízené otázky
CO: reprezentace – obsah související se spánkemPaměťv hipokampálně-neokortikální síti. Má vrcholová aktivita spojená se spánkem nějaké významné zastoupení a jak posoudit jejich význam? Má obsah spánku spojenéPaměťv jedné oblasti mozku pomáhají dešifrovat obsah související se spánkemPaměťv jiném regionu?
KDY: časová koordinace – načasováníPaměťreaktivace (např. koincidenční nebo nekoincidenční události zvlnění a vřetena) a jejich odlišné funkční role. Jak se hipokampálně-neokortikální koordinace vyvíjí v různých fázích spánku?
KDE: Epizodické paměti se skládají z časoprostorových sekvencí v behaviorálních zkušenostech, včetně kódování prostorové trajektorie a kódování neprostorových sekvencí. Jak můžeme ve spánku rozlišit obsah prostorových a neprostorových vzpomínek? Můžeme ve spánku číst kontextové nebo emocionální vzpomínky? Do jaké míry můžeme identifikovat obsah hipokampálně-neokortikálních populačních kódů během REM spánku? Jaký je principiální způsob, jak systematicky zkoumat kreativitu a vhledy ve spánku? Hrají NREM a REM spánek různé role v konsolidaci deklarativního?Paměťversus postupPaměť? Jaké jsou obvodové mechanismy, které umožňují vnějším faktorům (např. odměna, smyslová narážka) ovlivnit obsah spánekPaměť? Jsou shora dolů nebo zdola nahoru? Jak můžeme efektivně manipulovat se spánkemPaměťzlepšit výkon kognitivních funkcí po spánku? Jsou falešné vzpomínky konsolidovány stejným způsobem jako skutečné vzpomínky během spánku? Jaké jsou účinné způsoby, jak je posílit nebo potlačit? Může vyšetřování související se spánkemPaměťodhalit nové objevy mezi normálním a stárnoucím/nemocným mozkem, nebo dokonce mezi obyčejným a geniálním mozkem?

OBRÁZEK 1. Studie paměti a spánku hipokampu hlodavců
(a) Standardní studijní paradigma pro hippocampal hlodavcůPaměťsestává z předběhového spánku, běhu/chování a spánku po běhu. (b) Klasifikace spánkových stadií z EMG, kortikální LFP (delta power), hipokampální ripple power a kortikální theta/delta power ratio [21]. (c) Zvýšená aktivita hipokampální populace hlodavců během BĚHU na lineární dráze. (d) Hipokampální LFP a SWR hlodavců během SWS po běhu a související časoprostorový vzor hrotů, který ukazuje podobné časové pořadí ("přehrání") (reprodukováno se svolením [18]).


OBRÁZEK 2. Pitva hipokampálně-neokortikálních vzpomínek během spánku
(a,b) Sekvence neuronových výbojů u krysy V1 (a) a hipokampu (b) během epizod RUN a POST-RUN SWS. Lap: populační neuronální vzor střelby během jednoho běžícího kola na trajektorii zleva doprava. Každý řádek představuje buňku a každá značka představuje špičku. Avg: posloupnost vystřelování šablony získaná zprůměrováním ze všech kol na trajektorii. Každá křivka představuje průměrnou rychlost vypalování buňky. Buňky byly přiřazeny k číslům 0, 1 atd. a poté byly uspořádány (01234567) zdola nahoru podle pořadí jejich píků (svislých čar). Snímek: stejné vzorce spouštění populace v epizodě SWS POST-RUN. Trojúhelníky a kruhy označují počátek a stav DOWN. Seq: sekvence střelby v rámu. Vlaky špiček byly konvolvovány pomocí Gaussova okna a buňky byly seřazeny (0132567) podle vrcholů (vertikálních čar) výsledných křivek [36]. (c) Sluchový zvuk (L, červeně, indikující odbočení doleva) ovlivnil reaktivaci hipokampu během SWS [37]. V rastrovém grafu jsou špičky z buněk míst s políčky míst na pravé straně stopy modré a levá pole míst červeně. Pole míst jsou seřazeny shora dolů podle jejich umístění na trati (pravá-levá strana). Před nástupem spánku krysa odpočívala ve spánkové komoře. Událost opětovné aktivace v zeleném přerušovaném poli je zobrazena vpravo. (d) Zvukově ovlivněné soubory sluchových kortikálních neuronů (zelená) předpovídají reaktivaci hipokampálních neuronů (oranžová) během SWR. Růžové pruhy označují zvuky; azurové pruhy označují detekovaná SWR. Horní černá stopa je LFP filtrovaná zvlněním v hipokampálním CA1 [38]. (e) Kvantifikace zisku predikce při použití vzorů špiček sluchového kortikálního souboru (AC) založených na zvuku k predikci hipokampální palby CA1. Data se výrazně liší od zamíchaných statistik (n=96) [38]. Všechny obrázky jsou reprodukovány se svolením.

OBRÁZEK 3. Dekódování obsahu vizuálního zobrazení během lidského REM spánku
(a) Data fMRI byla získána od spících účastníků současně s polysomnografií. Účastníci byli probuzeni během fáze spánku 1 nebo 2 (červená přerušovaná čára) a verbálně hlásili svůj vizuální zážitek během spánku. Data fMRI bezprostředně před probuzením (9 s) byla použita jako vstup pro hlavní analýzy dekódování (pro analýzy časového průběhu byla použita posuvná časová okna). Byla extrahována slova popisující vizuální objekty nebo scény (červená písmena). Vizuální obsahy byly predikovány pomocí dekodérů strojového učení trénovaných na reakci fMRI na přirozené obrazy. (b) Během trénovací fáze byla slova popisující vizuální objekty nebo scény nejprve mapována na synsety stromu WordNet [slovník podstatných jmen, sloves, příslovcí, přídavných jmen a jejich lexikálních vztahů]. Synsety byly seskupeny do "základních synsetů" umístěných výše ve stromu. Vizuální zprávy (účastník 2) jsou reprezentovány vektory vizuálního obsahu, ve kterých je přítomnost nebo nepřítomnost základních synsetů ve zprávě při každém probuzení indikována bílou, respektive černou barvou. Příklady obrázků používaných pro trénování dekodéru jsou uvedeny pro některé základní synsety. Během testovací fáze je na událost probuzení aplikován párový nebo víceznačkový dekodér pro predikci označení vizuálního objektu (reprodukováno se svolením [56]).