Cílení na laktátdehydrogenázu A s katechinem resensitizuje buňky rakoviny žaludku SNU620/5FU na 5-fluoruracil část 2
Mar 23, 2022
Prosím kontaktujteoscar.xiao@wecistanche.comPro více informací
2.5. Současná léčba CA a 5Fu indukuje mitochondriální apoptózu závislou na ROS
Protože inhibice LDHA přímo zvyšuje mitochondriální ROS a ztrátu jeho membránového potenciálu, následně indukuje apoptózu[16,29], byly zkoumány faktory související s mitochondriální ROS zprostředkovanou apoptózou. Jednorázové ošetření CA nebo 5FU mírně zvýšilo mitochondriální hladinu ROS v buňkách SNU620/5FU při měření průtokovou cytometrií pomocí MitoSOX. Společná léčba CA a 5FU však významně zvýšila mitochondriální produkci ROS. Tato zvýšená produkce ROS byla zvrácena Mito-TEMPO, antioxidantem cíleným na mitochondrie (obrázek 5A-C). Inhibice růstu po ošetření CA a 5FU byla také obnovena po ošetření Mito-TEMPO v buňkách SNU620/5FU (obrázek 5D). Dále byla apoptóza hodnocena pomocí barvení Annexinem V-FITC/PI v buňkách SNU620/5FU. Společné ošetření CA a 5FU zvýšilo počet apoptotických buněk mezi buňkami SNU620/5FU (obrázek 6A, B). Nukleární morfologická fragmentace se objevuje během apoptózy a lze ji pozorovat barvením 4',6-diamidino-2-fenylindolem (DAPI) [30,31]. Bylo zjištěno, že fragmentace DNA se významně zvýšila ve skupině současně léčené ve srovnání s kontrolní skupinou (obrázek 6C). Nakonec byly zkoumány biomarkery apoptózy včetně Bcl-2, Bax, Caspase{30}}, Caspase{31}} a PARP. Proapoptotická kaskáda se zvýšila po společné léčbě s CA a 5FU v buňkách SNU620/5FU (obrázek 6D). Tato zjištění naznačují, že společná léčba CA a 5FU indukuje apoptózu v buňkách SNU620/5FU.

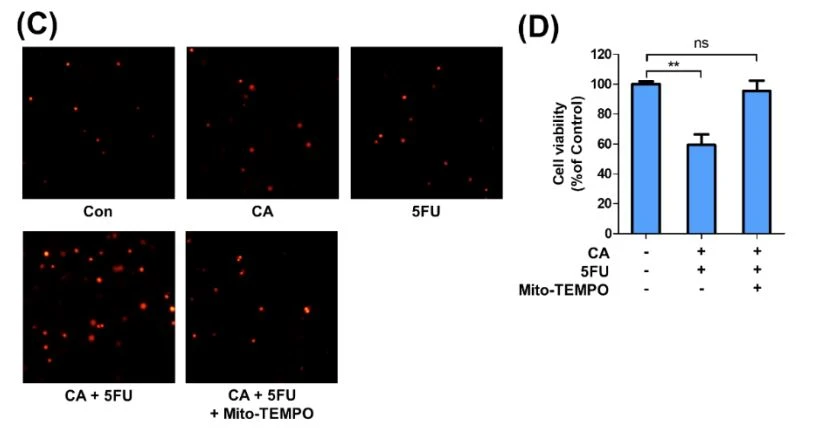
Obrázek 5. Současná léčba katechinem (CA) a 5-fluorouracilem (5FU) zvyšuje produkci mitochondriálních ROS: (A)SNU620/5FU buňky byly ošetřeny uvedenými koncentracemi CA,5FU(10 μM) a Mito -TEMPO (20 μM) po dobu 48 hodin. Mitochondriální ROS buněk bylo měřeno pomocí FACS analýzy pomocí MitoSOXTM Red; (B) sloupcový graf ukazuje míru buněk, které byly pozitivní na barvení MitoSOX; (C) snímky fluorescenční mikroskopie (X100) buněk SNU620/5FU obarvených MitoSOX byly prezentovány; (D) životaschopnost buněk byla měřena pomocí MTT testu. Výsledky jsou uvedeny jako průměr ± SEM.*p<><0.001, and=""><0.001, compared="" to="" the="" respective="" control.="" the="" experiments="" were="" independently="" performed="" in="">
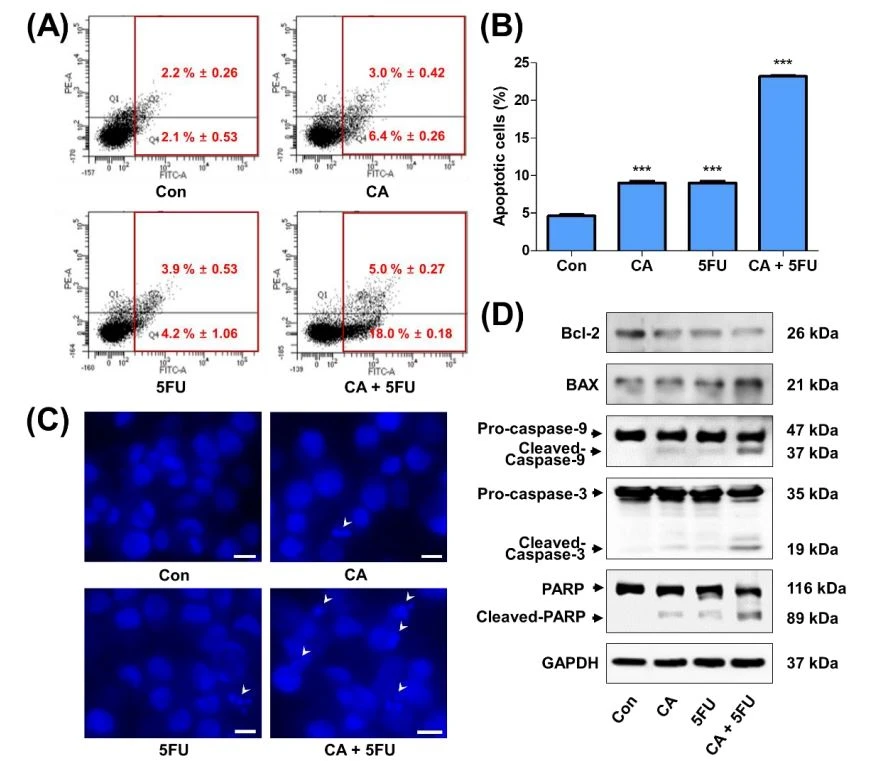
Obrázek 6. Zvýšení apoptózy při současné léčbě katechinem (CA) a 5-fluorouracilem (5FU); Buňky SNU620/5FU byly ošetřeny CA (10 uM) a/nebo 5FU(10 μM) po dobu 48 h∶(A) počet apoptotických buněk byl analyzován pomocí FACSanalýzy s použitím barvení PI-Annexin V;(B) ukazuje sloupcový graf procento buněk v časné a pozdní apoptotické fázi. Výsledky jsou uvedeny jako průměr ± SEM.**p<0.001, compared="" to="" the="" control;(c)="" the="" nuclei="" of="" the="" cells="" were="" stained="" with="" dapl,="" and="" fluorescence="" microscopic="" images="" were="" taken="" (x200).="" the="" white="" arrowhead="" indicates="" apoptotic="" cells.="" scale="" bar,="" 10="" um;="" (d)the="" expression="" levels="" of="" proteins="" related="" to="" the="" apoptotic="" pathway="" were="" measured="" by="" western="" blot="" analysis.="" the="" experiments="" were="" independently="" performed="" in="">
3. Diskuse
V této studii jsme k charakterizaci a hodnocení chemorezistence vůči 5FU použili buňky SNU620/5FU, které byly založeny dlouhodobou expozicí 5FU se sériovým zvyšováním koncentrace léčiva [32]. Bylo popsáno, že rodičovské buňky SNU620 obsahují mutant p53 s homozygotní delecí v exonu 5[33]. Na základě DNA mikročipu je v buňkách SNU620/5FU zvýšeno několik genů zapojených do chemorezistence, včetně thymidylátsyntetázy, proteinu 2 vázajícího DNA specifického pro poškození, klusterinu a midkinu [32]. Několik předchozích studií použilo buněčnou linii SNU620/5FU jako model pro hodnocení in vitro účinnosti léků proti rezistenci vůči 5FU prostřednictvím antimitózy, aktivace AMPK a signalizace kanabinoidního receptoru [34-36]. Nicméně metabolické charakteristiky a úrovně exprese genů souvisejících s metabolismem v buňkách SNU620/5FU a jejich role v chemorezistenci nebyly do značné míry prozkoumány.
Zde jsme prokázali, že buňky SNU620/5FU mají pokročilé glykolytické fenotypy, včetně zvýšené produkce laktátu a exprese enzymů souvisejících s přeměnou pyruvátu na laktát, jako je LDHA. Fosforylace PDHA1, představující sníženou aktivitu PDH zvýšenou PDK2 a PDK3, se také zvýšila u buněk rezistentních na SNU620/5FU ve srovnání s fosforylacemi v rodičovských buňkách SNU620. U rezistentních buněk však nebyl OCR významně snížen. Možným vysvětlením tohoto rozporu je plasticita živin rakovinných buněk pro cyklus TCA, to znamená, že aminokyseliny nebo acetyl-CoA odvozený od mastných kyselin, nejen acetyl-CoA odvozený od glukózy, by mohly dodávat substráty cyklu TCA [37 V korelaci s tím, 5FU-rezistentní buňky rakoviny žaludku podporují stopku prostřednictvím mitochondriální oxidace mastných kyselin [38]. Navíc rezistence vůči 5FU souvisí se zvýšenou mitochondriální hmotou a aktivitou, včetně exprese enzymů elektronového transportního řetězce (ETC) a spotřeby kyslíku [39,40]. Zaměřili jsme se tedy na modulaci LDHA za účelem resenzibilizace 5FU-rezistence. Na základě našich výsledků inhibice aktivity LDHA pomocí oxamátu nebo CA úspěšně potlačila růst rezistentních buněk SNU620/5FU a resenzibilizovala je na léčbu 5FU. Tato zjištění prokázala dobrou korelaci s výsledky předchozích studií, které uváděly, že genetická nebo farmakologická inhibice LDHA úspěšně snížila rezistenci na chemoterapii, včetně 5FU [19,41,42]. Předpokládali jsme tedy, že inhibice LDHA by mohla být dostatečná k potlačení rezistence vůči 5FU u buněk SNU620/5FU.

Cistanche může zlepšit imunitu
Několik syntetických molekul, jako je oxamát, FX11, PSTMB a GNE-140, bylo zavedeno jako inhibitory LDHA s malou molekulou [11,43]. Mezi nimi byl FX11 popsán jako senzibilizátor k chemoterapii u rezistentních nádorových buněk [44]. Nicméně, ačkoli mnoho inhibitorů LDHA je pod drobnohledem pro schválení jako nová protirakovinná léčiva, žádný z nich dosud nebyl schválen. K vytvoření nových inhibitorů LDHA je tedy zapotřebí více kandidátů podobných lékům [45]. Přírodní sloučeniny byly považovány za potenciální zdroje pro protirakovinná léčiva, zejména při překonávání chemorezistence jako kombinované terapie [46,47]. Proto je zacílení na metabolismus rakoviny, zejména metabolismus glukózy, přírodními produkty rostlinného původu nastupujícím výzkumným trendem pro vývoj nových protinádorových léčiv [48].
Dále několik zpráv naznačuje, že přírodní produkty, jako je gossypol, galloflavin, crocetin, stroj A a EGCG, jsou silnými inhibitory LDHA [43,49,50]. Ačkoli z nich má gossypol nejúčinnější inhibiční účinek na LDHA (IC50=9,8 uM), inhibuje také aktivitu LDHB, která přeměňuje laktát na pyruvát [51]. Naše výsledky ukázaly, že EGCG, zavedený inhibitor LDHA a senzibilizátor k chemoterapii 5FU [22-25], má inhibiční účinky na aktivitu LDHA i LDHB. Mezi inhibitory LDHA odvozené z přírodních produktů, které vykazují inhibiční aktivity specifické pro LDHA, jako je stroj A(IC50 =84 μM), crocetin (IC50 =54,9 μM) a CA (IC{{13} },69 μM)【49,50】, CA vykázala nejlepší supresivní účinek na aktivitu LDHA s ohledem na hodnotu ICsn. Ačkoli chemické struktury CA a EGCG jsou velmi podobné s výjimkou dodatečné části kyseliny gallové, jejich inhibiční selektivity byly Kromě toho, přestože je CA nejjednodušší sloučeninou ve srovnání se svými deriváty, vykazovala nejlepší inhibiční účinek jak na produkci laktátu, tak na aktivitu LDHA. Proto by měla být provedena rozsáhlá studie vztahu mezi strukturou a aktivitou, aby se CA prokázala jako potenciální nová páteř pro vývoj specifických a silných inhibitorů LDHA.
Je známo, že EGCG je kompetitivním inhibitorem NADPH. EGCG navíc inhibuje translokaci a reprodukci NADPH oxidázy [52-54]. Podle výsledků molekulárního modelování jsou však CA a EGCG strukturálně umístěny na různých místech (obrázek 3A, B). Navíc neprokázaly korelaci ve specificitě inhibice aktivity LDHA a LDHB, které využívají NADH a NAD plus jako kofaktor. Z těchto dat jsme předpokládali, že CA nemá žádnou přímou korelaci s EGCG v mechanismu soutěžení s NAD(P)H. Mimochodem, inhibice LDHA několika inhibitory, jako jsou FX11, GSK 2837808A, NCI-737 a NCI-006, snížila produkci NADt a zvýšila akumulaci NADH, čímž se snížil poměr NAD plus /NADH[16,17,55]. Apoptóza indukovaná cestou poškození DNA závislou na p53/NAD je také vyvolána inhibicí LDHA pomocí siRNA nebo chemického inhibitoru, NH-2 [56]. Signální dráha GCN2-ATF4 byla také popsána jako další mechanismus zodpovědný za apoptotickou buněčnou smrt indukovanou inhibitorem LDHA, GSK 2837808A [17]. Protože poměr NAD/NADH hraje klíčovou roli v redoxní homeostáze a buněčné proliferaci [5758], může CA jako inhibitor LDHA ovlivnit rakovinné buňky rezistentní vůči 5FU prostřednictvím modulace poměru NAD plus/NADH.

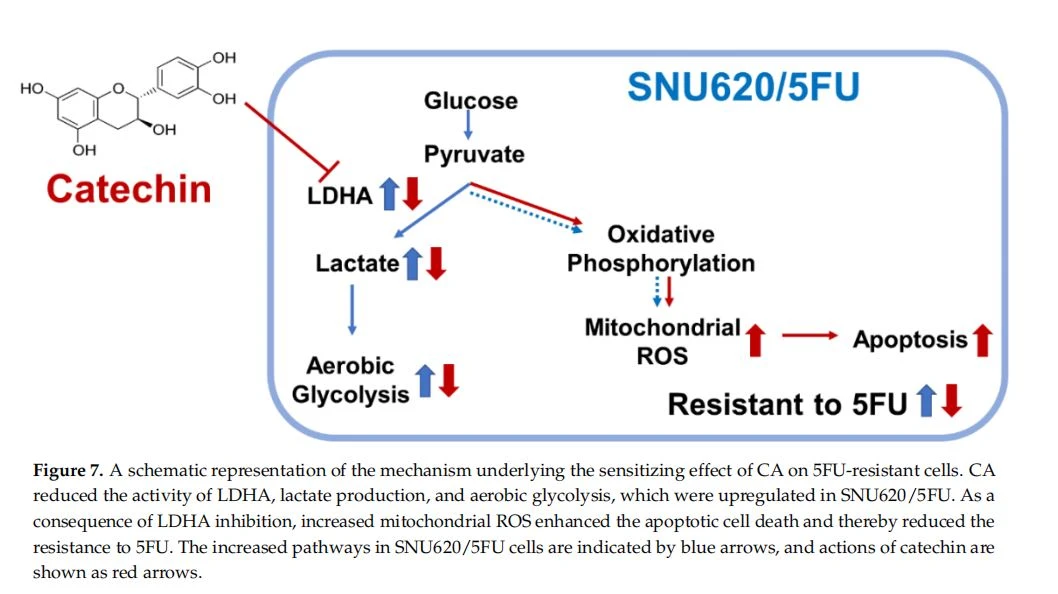
CA indukovala buněčnou smrt jak u rodičovských buněk SNU620, tak u buněk SNU620/5FU odolných vůči 5FU. Buněčná smrt indukovaná CA však byla závislá na LDHA prostřednictvím deplece shRNA v buňkách SNU620/5FU. Kromě toho společné ošetření CA a 5FU ukázalo další protirakovinné účinky na buňky rezistentní na 5FU. Jak již bylo dříve uvedeno [16,59], inhibice LDHA zvyšuje ROS a následně potlačuje růst rakovinných buněk. Když byla LDHA inhibována, energetický metabolismus se přeměnil z glykolýzy na cyklus TCA a mitochondriální oxidativní fosforylaci [60]. Rakovinové buňky tedy produkují více ROS, což má za následek poškození mitochondriální membrány a mitochondriálně indukovanou apoptózu [61,62]. V dobré shodě s předchozími studiemi indukuje CA apoptotickou buněčnou smrt prostřednictvím mitochondriální ROS-dependentní dráhy. Zvýšená schopnost obrany proti ROS a snížené apoptotické signály jsou běžnými vlastnostmi chemorezistentních rakovinných buněk, zejména u 5FU-rezistentních buněk 3,63]. Kromě toho změny v metabolismu rakoviny, zejména v metabolismu glukózy, také vedou k rezistenci vůči chemoterapii prostřednictvím změny buněčných aktivit, jako je aberantní oprava DNA, zvýšená autofagie, snížená apoptóza, obrana proti ROS a zvýšená sekrece exozomů [9,64,651 . Cílení na glykolytické enzymy, včetně LDHA, pomocí CA by tedy mohlo být alternativní strategií pro překonání chemorezistence, zejména u rakoviny žaludku rezistentního na 5FU. Obecně platí, že rychle se dělící maligní nádory jsou ve srovnání s normální tkání vysoce citlivé na inhibitory syntézy DNA včetně 5FU. Některé rakovinné buňky si však mohou vyvinout rezistenci vůči léčbě prostřednictvím několika mechanismů, jak bylo popsáno dříve [34-36]. Současná léčba bioaktivními sloučeninami a konvenční chemoterapií má ve srovnání s jednou sloučeninou vyšší účinek na zpomalení rozvoje rezistence |66. Biologické účinky specifických fytochemikálií s prokázanými cytotoxickými účinky podávaných s konvenční chemoterapií k cílení na širší škálu signálních drah v rakovinných buňkách, včetně metabolismu rakoviny a mitochondriálních funkcí, by proto měly být v léčbě rakoviny lepší než jednotlivé sloučeniny, protože mohou zpomalit rozvoj rezistence [67]. V této studii kombinace CA a 5FU vykázala vyšší inhibici buněčné životaschopnosti ve srovnání s inhibicí jediné léčby. Navíc jsme prokázali, že inhibice aktivity LDHA a následná mitochondriální apoptóza zprostředkovaná ROS může být mechanismem, který je základem senzibilizačního účinku CA na buňky rezistentní vůči 5FU (obrázek 7).
Kromě účinnosti a specifičnosti inhibice LDHA je CA bezpečnější než dříve zavedené inhibitory LDH odvozené z přírodních produktů. Navíc je CA dobře známou chemickou složkou zeleného čaje a jeho bezpečnost a farmakodynamické vlastnosti byly potvrzeny v předchozích studiích [68-70]. Přesné posouzení toxicity společného podávání CA a 5FU však dosud nebylo provedeno. Kromě toho nebyla v této studii zkoumána in vivo účinnost CA u 5FU-rezistentních rakovinných buněk. Předchozí studie však uvádějí in vivo protirakovinnou účinnost CA a jejích derivátů při překonávání chemorezistence, včetně rezistence vůči 5FU u lidského karcinomu žaludku a tlustého střeva [71-77]. V této studii jsme se zaměřili na inhibici LDHA jako hlavní molekulární mechanismus CA k překonání rezistence vůči 5FU. Aby se tedy vyvinula CA jako nové adjuvans pro chemorezistentní rakovinné buňky, měla by být in vivo účinnost a bezpečnost společné léčby CA a 5FU vyhodnocena prostřednictvím rozsáhlých studií na zvířatech, včetně xenograftových modelů a dobrého laboratorního hodnocení toxicity.
4. Materiály a metody
4.1.Materiály
Protilátky proti poly(ADP-ribóza)polymeráze, kaspáze-3 a kaspáze-9 byly zakoupeny od společnosti Cell Signaling Technology (Cell Signaling Technology, Danvers, MA, USA). Protilátky proti LDHA, glyceraldehyd 3-fosfát dehydrogenáze (GAPDH) a PDHA1 byly zakoupeny od Santa Cruz Biotechnology (Santa Cruz Biotechnology, Santa Cruz, CA, USA) a protilátky proti fosforu-PDHA1 a PDK3 byly zakoupeny od Abcam ( Abcam, Cambridge, MA, USA). Dále protilátky proti PDK2 a PDK4 byly zakoupeny od Signalway Antibody (Signalway Antibody, Dallas, TX, USA), protilátky proti PDK1 byly získány od Enzo Life Sciences (Enzo Life Sciences, Farmingdale, NY, USA) a protilátky proti B-buňkám lymfom-2(Bcl-2) a protein X asociovaný s Bcl{14}} byly zakoupeny od společnosti Novus Biologicals (Novus Biologicals, Littleton, CO, USA). MitoSOX byl zakoupen od Invitrogen (Invitrogen, Carlsbad, CA, USA). Chemikálie a činidla, včetně 3-(4,5-dimethylthiazol-2-yl)-2,5-difenyltetrazolium bromidu (MTT),4',{{22} }diamidino-2-fenylindol, oxamát, nikotinamid adenindinukleotid, CA a deriváty CA (EC GC, EGC a EGCG) byly zakoupeny od společnosti Merck (Merck, Darmstadt, Německo). -nikotinamidadenindinukleotid (oxidovaná forma) byl zakoupen od Tokyo Chemical Industry (Tokyo Chemical Industry, Tokyo, Japan).
4.2. Buněčná kultura
Lidská rakovina žaludku SNU620, SNU620/5FU a AGS, rakovina pankreatu Panic-1 a MIA PaCa-2 a buňky rakoviny tlustého střeva LS174T a RKO byly získány z Korean Cell Line Bank (KCLB, Soul, Korea . )(Gibco, New York, NY, USA) a 1% penicilin/streptomycin (Invitrogen) a buňky Panc-1, MIA PaCa-2 a RKO byly kultivovány v Dulbeccově modifikovaném Eagleově médiu (Welgene ) obsahující 10 procent teplem inaktivovaného FBS a 1 procento penicilin/streptomycin. Všechny buňky byly kultivovány ve zvlhčeném CO2, inkubátoru při 37 stupních a 5 procentech CO2.
4.3. Test buněčné životaschopnosti
Hladiny cytotoxicity CA a 5FU v buňkách SNU620 a SNU620/5FU byly měřeny pomocí testu MTT. Buňky byly kultivovány v 24-jamkových destičkách (2x 10⁴ buněk/jamka) s uvedenými koncentracemi CA a 5FU pro uvedený den. Potom byl do každé jamky přidán roztok MTT (2,0 mg/ml) a následovala 3-4 h inkubace při 37 stupních a 5 procentech CO v inkubátoru pro buněčnou kulturu. Kultivační médium bylo následně odstraněno a absorbance formazanových krystalů byla získána z živých buněk. K rozpuštění krystalů formazanu byl přidán DMSO a bylo měřeno při 540 nm pomocí Spectramax M2 Microplate Reader (Molecular Devices, Sunnyvale, CA, USA).
4.4. Míra extracelulární acidifikace (ECAR) a míra spotřeby kyslíku (OCR)
ECAR a OCR indikující buněčné rychlosti glykolýzy a oxidativní fosforylace byly monitorovány pomocí analyzátoru Seahorse XF (Agilent Technologies, Santa Clara, CA, USA), jak bylo popsáno dříve [78,79]. Stručně řečeno, 60,000 buněk SNU620 nebo SNU620/5FU na jamku bylo nasazeno na šestijamkové destičky Seahorse XF v médiu RPMI doplněném 1 procentem penicilinu/streptomycinu. Po 30 minutách inkubace bylo médium z každé jamky nahrazeno 80 ul předehřátého média bez séra s 5 mM oxamátem, standardním inhibitorem LDH [11]. Buňky byly poté inkubovány při 37 °C po dobu 24 hodin. Po inkubaci bylo médium z každé jamky nahrazeno 180 ul předehřátého média XFbase (obsahujícího 10 mM glukózu, 2 mM glutamin a 1 mM pyruvát sodný; pH 7,4) pro měření ECAR a OCR. Výsledky byly analyzovány pomocí softwaru Wave 2.6.0.31 (Agilent Technologies).
4.5. Kvantitativní reverzní transkripčně-polymerázová řetězová reakce (qRT-PCR)
Celková RNA byla extrahována pomocí soupravy RiboEx Total RNA Extraction Kit (GeneAll Biotechnology, Soul, Korea) a cDNA byla syntetizována pomocí soupravy pro reverzní transkriptázu (Promega, Madison, WI, USA). Při reverzní transkripci byl použit 1 ug celkové RNA , a celkové množství syntetizované cDNA je 20 μl Každá souprava byla použita podle pokynů výrobce Kvantitativní PCR byla provedena pomocí StepOneTM Real-Time PCR System (Thermo Fisher Scientific, Waltham, MA, USA), s Real HelixgPCR Kit (NanoHelix, Daejeon, Korea), pro 40 cyklů sestávajících z 15 s při 95 stupních Cand 1 min při 60 stupních.Relativní hladiny mRNA byly normalizovány na hladiny 18S ribozomální RNA, která sloužila jako endogenní kontrola. Sekvence primerů používané pro qRT-PCR jsou uvedeny v tabulce 1.

4.6. Analýza Wester" Blot
Buňky byly promyty 1x PBS a celkové proteiny byly extrahovány z buněk pomocí RIPA pufru a 1% NP-40 lyzačního pufru obsahujícího koktejlové tablety inhibitoru proteázy (Roche, Basel, Švýcarsko). Koncentrace jednotlivých proteinů byly měřeny pomocí proteinového testu Bio-Rad. Stejná množství proteinu byla frakcionována z každého vzorku prostřednictvím 8-15 procent SDS-PAGE a poté byly proteiny přeneseny na nitrocelulózové membrány (GE Healthcare, Mnichov, Německo) pomocí elektroforézy. Membrány byly blokovány při teplotě místnosti (20-25 stupeň) po dobu 1 hodiny s použitím 5% odtučněného sušeného mléka a inkubovány s primárními protilátkami při 4 stupních přes noc. Následně byly tyto membrány třikrát promyty 1x Tris-pufrovaným fyziologickým roztokem po dobu 10 minut. Specifické pásy proteinů byly měřeny pomocí chemiluminiscenčního zobrazovacího systému (ImageQuant LAS 4000; GE Healthcare). Exprese proteinů byla upravena pomocí GAPDH. 4.7. Test produkce laktátu
Produkce laktátu byla měřena v kultivačním médiu buněk SNU620, SNU620/5FU, AGS, Panc-1, MIA PaCa-2, LS174T a RKO. Tyto buňky byly inkubovány po dobu 1 d při 37 stupních a kultivační médium bylo následně nahrazeno médiem bez fenolové červeně, následovala inkubace po dobu 1 h při 37 stupních. Médium každé buňky bylo poté hodnoceno pomocí komerční laktátové fluorometrické testovací soupravy (BioVision, Milpitas, CA, USA).
4.8. Testy aktivity LDHA a LDHB
Pro detekci aktivity LDHA byly uvedené koncentrace CA inkubovány po dobu 2 0 min v pufru obsahujícím 2 mM pyruvát, 20 μM NADH a 20 mM HEPES-K plus (pH 7,2). Pro aktivitu LDHB byl použit pufr obsahující 1 M Tris-HCl (pH 8,0), 25 mM NAD plus a 2 M L-laktát sodný. Stručně řečeno, 10 nanogramů každého z purifikovaných rekombinantních LDHA a LDHB proteinů bylo použito pro in vitro testy aktivity LDHA a LDHB. Jeden mikrogram celkového proteinu z buněčných lyzátů byl použit pro intracelulární testy aktivity LDHA a LDHB jako zdroj enzymu. Fluorescence NADH při excitační vlnové délce 340 nm a emisní vlnové délce 460 nm byla detekována pomocí spektrofluorometru (Spectramax M2; Molecular Devices), jak bylo popsáno dříve [80]. Aktivita LDHA byla měřena sníženým množstvím NADH, zatímco aktivita LDHIB byla hodnocena měřením množství NADH převedeného z NAD plus.
4.9. Interakce protein-malá molekula
Interakce mezi proteinem a malými molekulami byla předpovězena pomocí programu Pyrex. V Pyrexu byly použity molekuly LDHA (PDB ID:1110) a 2D struktury CA a EGCG získané z databáze sloučenin NCBI PubChem. ID CA bylo 9064 a ID EGCG bylo 65064. Relativní distribuce povrchového náboje byla ukázána s kyselou oblastí červeně, bazickou oblastí modře a neutrální oblastí bíle. Vodíkové vazby v komplexech LDHA s CA nebo EGCG byly znázorněny jako černé tečkované čáry. Sekvence byly získány od UniProt (https://www.uniprot.org, přístupné 9. listopadu 2020) s přístupovými čísly P00338 (LDHA).
4.10. Transfekce krátké vlásenky RNA (shRNA)
Byly použity pLKO.1 mock-vektor a shRNA targeting LDHA vektor, jak bylo popsáno dříve [50]. Buňky byly nasazeny na šestijamkové destičky (2 x 10 stupňů buněk/jamka) a inkubovány přes noc. Buňky SNU620/5FU byly transfekovány pomocí polyethyleniminu (PED) (Polyplus-transfection, llkirch, Francie), gen a poměr PEI je 1:3. Poté byly transfekované buňky ošetřeny 1 ug/ml puromycinu po dobu 1 týdne. Kontrolní buněčná linie byla vytvořena po infekci míchaným plazmidem.
4.11. Nadměrná exprese LDHA
Plazmid pDEST{0}}LDHA byl zkonstruován subklonováním LDHA cDNA (zakoupené od Korea Human Gene Bank, Daejeon, Korea) do vektorů pDEST27(Invitrogen). Byly provedeny dvě sady subklonování pro LDHA. Pro rekonstrukci LDHA byly buňky SNU620/5FU-shLDHA transfekovány pDEST27-LDHA a prázdným plazmidem pDEST27. Stručně, buňky byly kultivovány až do 70 procent konfluence. Poté byly buňky ošetřeny směsí obsahující 3 ug DNA a Lipofectamine 2000 (Invitrogen) po dobu 48 hodin. Po inkubaci byly buňky selektovány pomocí 200 ug/ml G418 po dobu 1 týdne. Poté, abychom potvrdili účinnost transfekce, jsme provedli test Western blot.
4.12 Analýza apoptózy
Apoptotické buňky byly detekovány pomocí Annexin V-FITC Apoptosis Detection Kit (BD Biosciences, San Jose, CA, USA), podle pokynů výrobce. Ve stručnosti, buňky byly naočkovány na šestijamkové destičky (2 x 10 stupňů buněk/jamka) a ošetřeny uvedenými koncentracemi CA a 5FU po dobu 2 dnů. Po 2 dnech ošetření byla buňka promyta 1 x PBS. Buňky byly suspendovány v 500 μl vazebného pufru a ošetřeny 5 ul annexinu V-FITC a 5 μL propidium jodidu (Sigma-Aldrich, St. Louis, MO, USA) s následnou inkubací po dobu 15 minut při teplotě místnosti v tma. Intenzity fluorescence byly zkoumány pomocí BD FACS CANTO ⅡI (BD Biosciences).
4.13. Test detekce mitochondriálních reaktivních druhů kyslíku (ROS).
Produkce mitochondriálních ROS byla detekována pomocí MitoSOX Red Mitochondrial Superoxide Indicator (Thermo Fisher Scientific). Buňky byly nasazeny na šestijamkové destičky (2x 10° buňky/jamka) a Mito-TEMPO (20 uM; Sigma-Aldrich) byla předléčena po dobu 1 hodiny před léčbou. Buňky byly resuspendovány v 1 ml 1x fyziologického roztoku pufrovaného fosfátem (PBS), načež bylo přidáno 5 μM MitoSOX. Buňky byly poté inkubovány 10 minut při 37 stupních. Intenzita fluorescence byla analyzována pomocí BD FACS CANTO II (BD Biosciences). Fluorescenční obraz byl detekován fluorescenčním mikroskopem (zvětšení 100×) (mikroskop Axioimager M1, Carl Zeiss, Oberkochen, Německo).
4.14 Barvení jádra DAPI
SNU620/5FU byl nasazen do 24-jamkové destičky (5 x 10⁴ buněk/jamku) a ošetřen indikovanými koncentracemi CA a 5FU po dobu 48 hodin. Po promytí 1x PBS byly buňky resuspendovány v 1-ml 1x PBS. Buňky se poté barvily 4 ug/ml DAPI po dobu 30 minut při teplotě místnosti a zkoumaly se pod fluorescenčním mikroskopem (zvětšení, 200x) (Carl Zeiss).
4.15. Statistická analýza
Výsledky buněčné životaschopnosti, produkce laktátu, ECAR, OCR, qRT-PCR, LDHA, LDHB aktivit, apoptózy a mitochondriálních ROS byly uvedeny ve vztahu ke kontrolním hodnotám a vyjádřeny jako průměr ± standardní chyba průměru tří nezávislých experimentů. Rozdíly nad průměrnou hodnotou každé skupiny byly analyzovány Studentovým t-testem, zatímco rozdíly mezi skupinami byly analyzovány jednosměrnou analýzou rozptylu s Tukeyho post hoc testem pomocí GraphPad Prism (Version5.0, GraphPad Software, San Diego, CA, USA).
5. Závěry
Celkově vzato, buňky rezistentní rakoviny žaludku SNU620/5FU mají glykolytické fenotypy, včetně zvýšené produkce laktátu a vyšší exprese LDHA než ty v rodičovských buňkách SNU620. Omezení glykolýzy pomocí CA, jako specifického inhibitoru LDHA, senzibilizuje buňky SNU620/5FU na 5FU. Kromě toho současná léčba CA a 5FU zvýšila mitochondriální ROS a apoptotickou buněčnou smrt u buněk rezistentních na 5FU. Naše zjištění naznačují, že CA může být slibným kandidátem pro vývoj adjuvantního léku, který snižuje rezistenci na chemoterapii založenou na 5FU omezením aktivity LDHA.
Doplňkové materiály: Následující materiály jsou dostupné online na https://www.mdpi.com/article/10 .3390/ijms22105406/s1, Obrázek S1: Vliv 5FU na životaschopnost buněk SNU620/5FU, Obrázek S2: Růst SNU620 a buňky SNU620/5FU měřené počítáním buněk, Obrázek S3: Hladiny produkce laktátu buněk SNU620 a SNU620/5FU, Obrázek S4: Exprese izotypů PDK v buňkách SNU620 a SNU620/5FU, Obrázek S5: Vliv oxamátu na životaschopnost buněk SNU620 a Buňky SNU620/5FU, Obrázek S6: Účinky EGCG na aktivity LDHA a LDHB, Obrázek S7: Účinky katechinu (CA) na hladiny exprese proteinů p-PDHA1, PDHA1 a PDKs, Obrázek S8: Analýza izotermické titrační kalorimetrie (ITC) LDHA a CA, Obrázek S9: Exprese LDHA v buňkách SNU620/5FU transfekovaných shLDHA, Obrázek S10: Měření glykolytických fenotypů a buněčné životaschopnosti v různých rakovinných buňkách, Obrázek S11: Hrubá data testu Western blot.
Tento článek je převzat z Int. J. Mol. Sci. 2021, 22, 5406. https://doi.org/10.3390/ijms22105406 https://www.mdpi.com/journal/ijms