

Kmenové buňky v léčbě fibrózy ledvin
Mar 30, 2022
Kontakt:joanna.jia@wecistanche.com/ WhatsApp: 008618081934791

Cistanche může ulevitRenální fibróza
Abstraktní
Renální fibróza běžně vede ke glomeruloskleróze a renální intersticiální fibróze a hlavní patologický základ zahrnuje tubulární atrofii a abnormální nárůst a nadměrné ukládání extracelulární matrix (ECM). Renální fibróza může přejít v chronické onemocnění ledvin. Kmenové buňky mají za vhodných podmínek víceliniový diferenciační potenciál a lze je snadno získat. V současné době existují některé studie, které ukazují, že kmenové buňky mohou zmírnit akumulaci ECM a renální fibrózu. Zdroje kmenových buněk a typy modelů renální fibrózy nebo renální fibrózy použité v těchto studiích se však lišily. V tomto přehledu shrnujeme patogenezi (včetně signálních drah) renální fibrózy a vliv terapie kmenovými buňkami na renální fibrózu, jak je popsáno v preklinických a klinických studiích. Zjistili jsme, že kmenové buňky z různých zdrojů mají určité účinky na zlepšení funkce ledvin a zmírnění renální fibrózy. K potvrzení tohoto závěru by však v budoucnu měly být provedeny další klinické studie.
Klíčová slova: Kmenové buňky, Renální fibróza, Signální dráha, Makrofágy
Úvod
Chronické onemocnění ledvin (CKD) je hlavní epidemiologický, klinický a biomedicínský problém, který má vysokou prevalenci a vysokou mortalitu. CKD může progredovat do konečného stadia renálního onemocnění a vést k vážné ekonomické a sociální zátěži [1]. Hlavními příčinami CKD jsou diabetická nefropatie, hypertenzní nefropatie, primární chronická glomerulonefritida, chronická intersticiální glomerulonefritida a chronické tubulární onemocnění, přičemž tato onemocnění mohou vyvolat renální strukturální změny a dysfunkci. Chronický zánět může stimulovat renální fibrózu a je také důležitým predisponujícím a progresivním faktorem pro CKD [2, 3] a mezi různými buňkami,
* Correspondence: zhoutb@aliyun.com
Yiping Liu a Yan-Yan Su by měli být považováni za společné první autory. 1Department of Nefrology, the Second Affiliated Hospital of Shantou University Medical College, No. 69 Dongsha Road, Shantou 515041, China Úplný seznam informací o autorovi je k dispozici na konci článku makrofágy se podílejí na modulaci renální fibrózy u pacientů s CKD [4– 6].
Renální fibróza běžně vede ke glomeruloskleróze a renální intersticiální fibróze a jejím hlavním patologickým základem je tubulární atrofie a abnormální nárůst a nadměrné ukládání extracelulární matrix (ECM) [7]. Hlavními patologickými jevy renální fibrózy jsou infiltrace zánětlivých buněk, aktivace a expanze fibroblastů, ukládání ECM komponent, tubulární atrofie a mikrovaskulární ztenčení [8]. Sloučeniny, které mohou zlepšit nasazení renálních progenitorů k regeneraci, mohou zmírnit renální fibrózu a existují přesvědčivé důkazy naznačující, že určité sloučeniny mohou modulovat renální tkáň s vnitřním regeneračním potenciálem. Samotné zmírnění fibrózy není dostatečné k opravě funkce ledvin při absenci obnovy ztracené nefronové tkáně po poškození. V důsledku toho může stimulace endogenní regenerace tkáně představovat atraktivní strategii léčby renálních poruch [8, 9]. Aktuální důkazy
Tento článek je licencován podle Creative Commons Attribution 4.{1}} Mezinárodní licence, která umožňuje použití, sdílení, adaptaci, distribuci a reprodukci na jakémkoli médiu nebo formátu, pokud uvedete příslušné jméno původního autora (autorů) ) a zdroj, uveďte odkaz na licenci Creative Commons a uveďte, zda byly provedeny změny. Obrázky nebo jiný materiál třetích stran v tomto článku jsou zahrnuty v licenci Creative Commons k článku, pokud není uvedeno jinak v kreditní hranici k materiálu. Pokud materiál není zahrnut v licenci Creative Commons článku a vaše zamýšlené použití není povoleno zákonnými předpisy nebo překračuje povolené použití, budete muset získat povolení přímo od držitele autorských práv. Chcete-li zobrazit kopii této licence, navštivte http://creativecommons.org/licenses/by/4.0/. Výjimka Creative Commons Public Domain Dedication (http://creativecommons.org/publicdomain/zero/1.0/) se vztahuje na data zpřístupněná v tomto článku, pokud není v kreditní hranici k datům uvedeno jinak.
ukazuje, že aktivita komplementu přesahuje vrozenou obranu hostitele a systém komplementu reguluje procesy, jako je diferenciace kmenových buněk, oprava tkáně a progrese k fibróze.
Kmenové buňky mají za vhodných podmínek víceliniovou diferenciační schopnost a regenerační potenciál a lze je snadno získat. V současné době existují některé studie ukazující, že kmenové buňky mohou zmírnit akumulaci ECM a renální fibrózu. Kmenové buňky lze rozdělit na dva typy podle vývojového stadia: embryonální kmenové buňky a dospělé kmenové buňky. V závislosti na jejich diferenciačním potenciálu lze kmenové buňky také rozdělit na totipotentní kmenové buňky, pluripotentní kmenové buňky a monogenní kmenové buňky, které se vyznačují vícesměrnou diferenciací a nekonečným dělením a proliferací. V současné době je většina kmenových buněk používaných k léčbě renální fibrózy mezenchymální kmenové buňky (MSC), které zahrnují mezenchymální kmenové buňky kostní dřeně (BM-MSC), mezenchymální kmenové buňky z pupečníkové krve (UC-MSC), mezenchymální kmenové buňky z plodové vody (AF-MSC), adipózní mezenchymální kmenové buňky (AMSC), Whartonovy MSC získané z želé (WJ-MSC) a dentální mezenchymální kmenové buňky (DMSC).
Jedním z charakteristických znaků renální fibrózy je nadměrná
Ukládání ECM a akumulace ECM může vést k selhání ledvin. Nerovnováha mezi nadprodukcí a redukcí ECM tedy může vést ke glomeruloskleróze a tubulointersticiální fibróze. Na patogenezi glomerulosklerózy se podílí poranění podocytů a endoteliálních buněk a proliferace mezangiálních buněk [10]. Na renální fibróze se podílí několik signálních drah, včetně nukleárního faktoru-κB (NF-κB) [11], transformujícího růstového faktoru- 1 (TGF- 1)/Smad [12], Notch, Wnt, Hedgehog [13], fosfatidylinositol -3 kináza (PI3K/AKT), transkripční/signální převodníky a aktivátory transkripce (JAK-STAT), RHO/Rho coil kináza (ROCK) a tumor nekrotizující faktor (TNF- ). Mezi těmito cestami je však signální dráha TGF- 1/Smad považována za centrální dráhu, která zprostředkovává progresi renální fibrózy a chronického onemocnění ledvin, a signální dráha TGF- 1/Smad je značně spojena s jiné signální dráhy během fibrózy [14]. Poškození renálních epiteliálních buněk může být způsobeno ischemií a toxiny, indukuje proteinurii u mnoha onemocnění, jako je glomerulonefritida, diabetická nefropatie nebo hypertenzní nefropatie, a může vést k proliferaci fibroblastů a infiltraci makrofágů [15, 16]. TGF- 1 se uvolňuje z poškozených a infiltrovaných buněk a působí na ledvinové fibroblasty [17] a následně způsobuje epiteliální až mezenchymální transformaci (EMT) a abnormální ukládání ECM. Kromě toho mohou k selhání ledvin přispívat molekuly podporující fibrózu, včetně kolagenu, fibronektinu a inhibitoru aktivátoru plazminogenu-1 (PAI-1). Kmenové buňky mohou zpomalit progresi renální fibrózy. MSC mohou ovlivnit aktivaci prozánětlivých cytokinů a inhibovat signální dráhy fibrózy, zejména TGF- 1/Smad, NF-κB, mitogenem aktivovaná proteinkináza (MAPK)/ERK a PI3K/AKT [18–22] . Kromě toho mohou AMSC snížit IL-1, TNF- a IL-6 během léčby renální intersticiální fibrózy a inhibovat aktivaci signální dráhy TGF- 1/Smad2/3/7 [ 23]. MSC mohou inhibovat fibrózu snížením EMT a mohou zlepšit renální fibrózu snížením akumulace ECM (obr. 1).
Zdroje kmenových buněk a typy modelů renální fibrózy nebo renální fibrózy použité v této studii jsou však různé. V tomto přehledu shrnujeme patogenezi (včetně signálních drah) renální fibrózy a vliv terapie kmenovými buňkami na renální fibrózu v preklinických a klinických studiích.
Signální dráha u renální fibrózy
Signální dráha TGF-/Smad
Tkáňová fibróza je běžnou charakteristikou chronických onemocnění, která vedou k selhání orgánů. Hlavním buněčným typem, který přispívá ke zvýšení depozice kolagenu v neaktivní tkáňové fibróze, je myofibroblastová podskupina aktivovaných fibroblastů, které jsou charakterizovány expresí -smooth muscle actin (-SMA) [24, 25]. Myofibroblasty jsou heterogenní populace, která může pocházet z více než jedné prekurzorové populace [26] a může vzniknout prostřednictvím procesů zahrnujících EMT [27, 28], endoteliálně-mezenchymální transformaci (EndoMT) [29–31] a lokální proliferaci rezidentních fibroblastů. nebo pericyty. Studie Wang et al. [32] ukázali, že hlavním zdrojem myofibroblastů je přechod mezi makrofágy a myofibroblasty (MMT). Tento proces probíhá ve fibrotické ledvině a je regulován signální dráhou TGF-/Smad3 [33].
Existují čtyři hlavní mechanismy, kterými TGF- 1 podporuje fibrózu.
(1) TGF- 1 zvyšuje tvorbu složek ECM (kolagen typu I a fibronektin) prostřednictvím Smad3-závislého nebo Smad{3}}nezávislého mechanismu [34–36].
(2) TGF- 1 potlačuje degradaci ECM potlačením matrixových metaloproteináz (MMP) [37–39]. Tkáňové inhibitory metaloproteináz (TIMP) jsou přirozenými inhibitory MMP [40].
(3) Předpokládá se, že TGF- 1 hraje důležitou roli při transformaci epiteliálních buněk, endoteliálních buněk a pericytů na myofibroblasty [25, 41].
(4) TGF- 1 může okamžitě působit na různé typy rezidentních renálních buněk a podporovat proliferaci glomerulárních mezangiálních buněk, zvyšovat matrix

TGF- 1 působí prostřednictvím receptorů TGF- a transkripčních faktorů Smad2/ 3 [42, 44, 45]. Smad3 se může přímo vázat na promotorovou oblast kolagenového genu a spouštět produkci kolagenu, indukovat TIMP-1 ke snížení aktivity MMP-1 ve fibroblastech, inhibovat degradaci ECM a podporovat fibrózu způsobenou různými příčin [46–48], zatímco některé studie ukázaly, že role smad2 u renální fibrózy je opačná než role smad3 [49–51]. Během fibrogeneze je downregulace Smad7 inhibována mechanismem degradace závislým na ubikvitin E3 ligáze a posun v rovnováze mezi Smad3 a Smad7 vede k akumulaci a aktivaci myofibroblastů, nadprodukci ECM a snížené degradaci ECM. Současné studie navíc ukázaly, že Smad3 zprostředkovává renální fibrózu tím, že snižuje miR-29 a miR-200 a zvyšuje miR-21 a miR-192. MiR-21 a miR192 urychlují ECM
ukládání, což zase podporuje renální fibrózu [52, 53]. Nadměrná exprese miR-29 snižuje stupeň renální fibrózy in vivo a inhibuje fibrotické geny in vitro v kontextu diabetické nefropatie spojené s ukládáním ECM [53–55]. MiR-200 může inhibovat EMT indukovanou TGF{7}} v peritoneálních mezoteliálních buňkách regulací ZEB1/2 [56] (obr. 2 a 6).
Signální dráhy nezávislé na TGF-/Smad u renální fibrózy
Signální dráha Notch u renální fibrózy
V posledních letech bylo potvrzeno, že se Notch přímo podílí na renální fibróze na myším modelu genového knockoutu [57–59]. In vitro je signalizace Notch přímo zapojena do procesu EMT [60, 61] interakcí se signalizací TGF-/Smad2/3 nebo přímou regulací klíčových molekul EMT, jako jsou Snail a Slug [62, 63]. Signální dráha Notch může navíc aktivovat expresi TGF- v glomerulárních mesangiálních buňkách stimulovaných vysokou hladinou glukózy, což naznačuje, že Notch se může podílet na rozvoji fibrózy regulací klíčových faktorů fibrózy. Blokování signální dráhy Notch snížilo stupeň renální fibrózy v modelu renální fibrózy indukované unilaterální ureterální obstrukcí (UUO) a tohoto účinku bylo dosaženo inhibicí aktivace signální dráhy TGF-/Smad [64]. Kromě toho studie také ukázala, že blokování signální dráhy Notch v renálních endoteliálních buňkách v kontextu renální EMT inhibovalo výskyt renálního selhání arteriovenózní píštěle [65], což naznačuje, že Notch může také hrát důležitou roli v renální EMT. Signální dráha Notch dále reguluje makrofágy při renální fibróze.
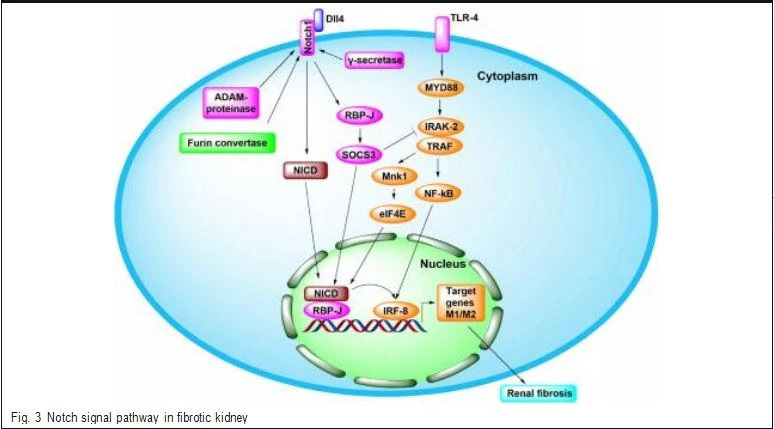
zapojení V extracelulární doméně receptoru Notch se nachází 29-36 repetice EGF a 3 repetice Lin-Notch, které se mohou vázat s ligandy a aktivovat signální dráhu. V transmembránové oblasti jsou tři místa štěpení (S1, S2, S3 a S4), která mohou být štěpena furinkonvertázou, ADAM-proteázou a -sekretázou za vzniku

čtintracelulární doména Notch (NICD) [66]. TLR4 se účastní aktivace signalizace Notch regulací osy IRAK2-Mnk1-eIF4E a aktivace NF-κB a nadměrná exprese downstream molekul může zase inhibovat regulaci aktivace makrofágů zprostředkovanou Notch [67 ]. Wang a kol. [32] prokázali, že makrofágy M1 pocházející z kostní dřeně inhibovaly růst nádoru za podmínek nesoucích nádor, zatímco makrofágy M2 měly opačný účinek a makrofágy M1 byly citlivé na regulaci signalizace Notch. Notch signalizace se účastní aktivace makrofágů M1/M2 regulací SOCS3 [68, 69]. Signální dráha Notch-RBP-J může také podporovat aktivaci zánětlivých makrofágů M1 regulací IRF8 a regulační mechanismus je zprostředkován signální dráhou TLR4-IRAK2- Mnk1-eIF4E [67] (obr. 3 a 6).
Signální dráha Hedgehog u renální fibrózy
Při rozvoji fibrózy lze geny ježka (Hh) u savců rozdělit do tří kategorií: Sonic hedgehog (Shh), Desert Hedgehog (Dhh) a Indian Hedgehog (Ihh), které kódují proteiny Shh, Ihh a Dhh, respektive [70]. Je nejrozšířenějším typem a hraje roli hlavně v signální dráze; Ihh se podílí především na proliferaci a diferenciaci kostních buněk a Dhh na vývoji reprodukčních buněk. Protein Shh je
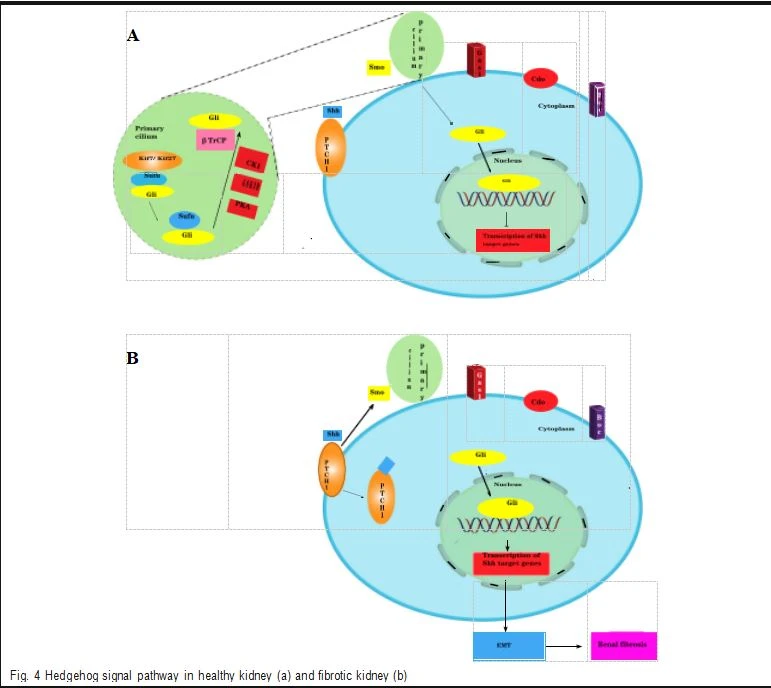
složený z receptorového transmembránového proteinového záplatovaného homologu (PTCH), jeho downstream proteinů Smoothened (Smo) a Zinc finger proteinu (Gli). Během embryonálního vývoje protein Shh signalizuje signální dráhu Hedgehog [71, 72]. Proteiny signální dráhy Hedgehog jsou exprimovány v časném stádiu renálního poškození a účastní se opravy tkáně po renálním poškození. Renální intersticiální buňky indukované genem Shh jsou úzce spojeny s renální fibrózou. Signální dráha Shh ovlivňuje transformaci nejen fibroblastů na myofibroblasty, ale také pericytů na myofibroblasty. Fabian a kol. [73] ukázali, že Shh ligandy spouštějí buněčnou proliferaci a indukují pericyty k regulaci myofibroblastů a buněčné prekurzory se transformují na myofibroblasty.
Kvůli nedostatku molekul Hh je homeostáza proteinu Gli narušena působením KiF7/KiF27 a inhibitorů fúze (Sufu), následovaná fosforylací komplexu Gli, Smo a Sufu proteinkinázou A (PKA), glykogensyntázou kinázou 3B ( GSK3B) a kaseinkináza 1 (CK1). Protein TrCP obsahující transdukční proteinovou repetici štěpí Gli a C-konec Gli je zkrácen. C-koncový zkrácený Gli represor vstupuje do jádra a váže se na DNA, aby inhiboval transkripci cílových genů Shh. Molekula Hh je přítomna ve fibrotické ledvině, kde se molekula Shh váže na receptor Patched1 (PTCH1) a Ptc ztrácí svou inhibici
Tak. Fosforylované Sufu ztrácí svou obstrukci pro Gli a Gli vstupuje do jádra a váže se na DNA, aby se aktivoval
Hh cílové geny. Aktivované Hh cílové geny mohou podporovat EMT. Signální dráha Hedgehog tedy může podporovat renální fibrózu [74] (obr. 4 a 6).
Signální dráha Wnt u renální fibrózy
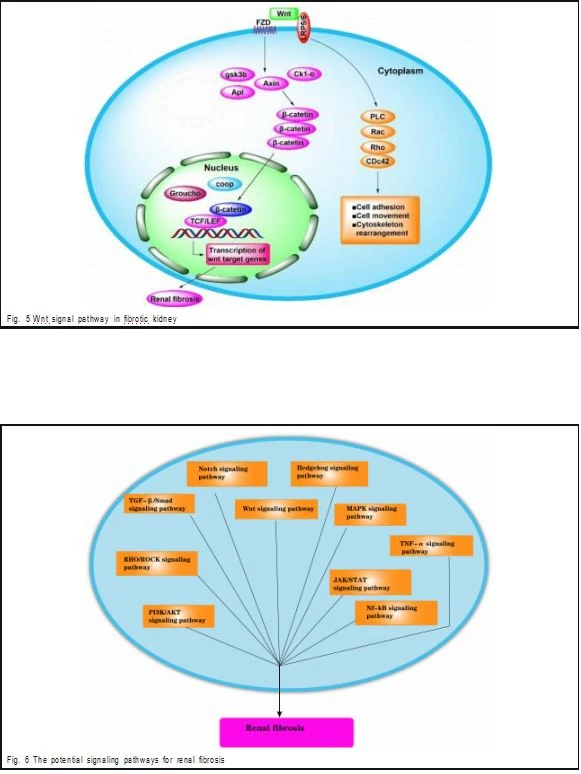
Signální dráha Wnt hraje důležitou roli v tumorigenezi a tato dráha je důležitá i v embryonálním vývoji [75, 76] a diferenciaci kmenových buněk [73, 77]. V UUO modelu renální fibrózy byla upregulována většina proteinů Wnt (kromě Wnt5b, Wnt8b a Wnt9b) a 10 receptorů Fzd (kromě Fzd4 a Fzd5) [78]. Mechanicky se Wnt a - catenin podílejí na vzniku fibrózy. Kvůli nedostatku Wnt ligandů ve fibrotických ledvinách je -catenin v cytoplazmě fosforylován „destruktivním komplexem“ obsahujícím GSK-3b, skeletový protein Axin a kaseinkinázu 1a (CK1a) a poté je štěpen ubikvitinem zprostředkovaný proteazom. Cytoplazmatická translokace fosforylovaného -cateninu vede k akumulaci necytoplazmatických signálů, což umožňuje - cateninu vstoupit do jádra, navázat se na TCF/LEF a aktivovat cílové geny Wnt [13, 73] (obr. 5 a 6).
Signální dráha RHO/ROCK u renální fibrózy
Rho coil kináza (rock) je důležitým následným efektorem GTPase-RHOA a zahrnuje Rock1 (také známý jako p160 rock a rock ) a Rock2 (také známý jako Rho kináza a rock ). ROCK geny jsou umístěny na chromozomu 18 (18q11.1) a chromozomu 2 (2p24). Horniny mají zásadní vliv na tvorbu aktin-myosinové kontraktility a regulaci dynamiky aktinového cytoskeletu. Tyto faktory hrají důležitou roli při regulaci různých buněčných funkcí, jako je růst, migrace, apoptóza, metabolická regulace syntézy cytoskeletálního aktinu a buněčná kontrakce prostřednictvím fosforylace řady downstream cílů [79]. Aktivace RHOA stimuluje Rho související s curl protein kinázou (rock), downstream efektorem, k fosforylaci LIMK, MLC a MLCP, čímž ovlivňuje mnoho buněčných procesů [80]. LIMK je fosforylován a indukován k fosforylaci kofilinu (protein vázající aktin). Kofilin hraje důležitou roli v dynamické regulaci aktinu, což vede k vyčerpání zásob G-aktinu, podporuje polymeraci aktinu (F-aktin) a vede k tvorbě stresových vláken, genové expresi a transformaci buněk (fibroblast na myofibroblast). , EMT) [81]. EMT je zásadním krokem ve vývoji renální fibrózy a může se podílet na regulaci renální fibrózy, ale konkrétní mechanismus je třeba dále studovat (obr. 6).
Signální dráha JAK/STAT u renální fibrózy
Dráha JAK/STAT se účastní pleiotropního růstu a přenosu cytokinového kaskádového signálu. V současnosti model přenosu signálu JAK/STAT ukazuje, že JAK je aktivována vazbou cytokinů nebo růstových hormonů na receptory, což fosforyluje intracelulární doménu receptoru a umožňuje nábor a fosforylaci STAT [82]. The
Aktivace STAT3 je spojena s tkáňovou fibrózou a zlepšuje produkci TGF- 1. Výsledky studií na zvířecích modelech [83, 84] ukázaly, že STAT3 zprostředkovává renální fibrózu inhibicí leukocytární infiltrace a exprese prozánětlivých cytokinů a aktivací renální intersticiální fibrózy. Na regulaci renální fibrózy se může podílet signální dráha JAK/STAT, ale konkrétní mechanismus je třeba dále studovat (obr. 6).
Signální dráha PI3K/AKT u renální fibrózy
Dráha PI3K/AKT hraje významnou roli v buněčném růstu, přežití a metabolismu. PI3K je jednou z klíčových drah ve fosforylaci Ptdlns (3,4,5) P3 a AKT. Delece fosfatázy a homologu tenzinu (PTEN) z genu chromozomu 10 je enzym fosfatidylinositol 3'-fosfatidylinositol, který může převést Ptdlns (3,4,5) P3 na fosfatidylinositol (4,5)-difosfát. Dlouhou dobu byl PTEN považován za látku s antifosfatázovou aktivitou proti fosfatidylinositolu PIP3 a fosfatidylinositolu PI3Ks [85]. Některé studie ukázaly, že PI3K/AKT má důležitý regulační účinek na orgánovou fibrózu, včetně plicní fibrózy [86], fibrózy myokardu, renální fibrózy [87] a fibrózy jater [88]. Nedávno studie [89] naznačila, že fluridon inhibuje nikotinamid adenindinukleotid fosfát oxidázu prostřednictvím signální dráhy PI3K/AKT během patogeneze renální intersticiální fibrózy, což naznačuje, že signální dráha PI3K/AKT je zapojena do procesu EMT renální intersticiální fibrózy. Funkcí PI3K/AKT je katalyzovat intracelulární tvorbu fosfatidylinositoltrifosfátu a fosforylaci AKT, což je jedna z klíčových downstream drah PI3K. Signalizace PI3K/AKT je
účastní se EMT fibrózy v mezibuněčné matrici. Zejména signální dráha PI3K/AKT/mTOR a mnoho upstream a downstream faktorů hrají důležitou regulační roli v renální fibróze [90]. Navíc PI3K může být modulován TGF- 1 a hrát biologické role [91]. PI3K/AKT se může podílet na regulaci renální fibrózy, ale konkrétní mechanismus je třeba dále studovat (obr. 6).
TNF- při renální fibróze
EMT hraje důležitou roli v patogenezi renální fibrózy a TNF- může spolupracovat s TGF- při regulaci EMT [92]. Bylo prokázáno, že TNF- může významně zvýšit TGF- -zprostředkovanou propagaci EMT. Ve studii epiteliální buněčné linie lidského adenokarcinomu A549, TNF-podporovaný TGF- - indukoval EMT, indukoval fenotyp intersticiálních buněk, upreguloval expresi markerů intersticiálních buněk -SMA a kolagen typu I, snižoval expresi epiteliálního markeru E-cadherin a zvýšená buněčná invazivita a sekrece matrix metaloproteinázy. Možný mechanismus zahrnoval zesílení účinků signálních drah Smad, MAPK a NF-κB na EMT [93].
TNF- se může podílet na regulaci renální fibrózy, ale konkrétní mechanismus je třeba dále studovat (obr. 6).
Signální dráha MAPK u renální fibrózy
Hlavními podskupinami MAPK signálních drah jsou ERK, P38 kináza a JNK. Signální dráhy MAPK a TGF společně podporují progresi EMT [94]. Tyto transkripční faktory mohou inhibovat E-cadherin a indukovat expresi TGF- receptorů. Signální dráhy MAPK a TGF společně podporují progresi EMT [95]. Studie navíc prokázaly, že složení hlemýždě a CREB-binding protein (CBP) může stimulovat zánětlivou odpověď na renální fibrózu [96] (obr. 6).
NF-κB u renální fibrózy
NF-KB je jedním z hlavních jaderných transkripčních faktorů, které regulují zánět a imunitní odpověď. V cytoplazmě je NF-KB neaktivní kvůli své vazbě na inhibiční proteiny (IKK, IKK a IKK). Když je tělo stimulováno, IKK je fosforylován protein fosforylázou a fosforylovaný IKK je degradován protein kinázou a disociuje se z NF-KB dimeru. NF-kB se aktivuje, vystaví p50 a p65 a přemístí se do jádra, aby se navázal na odpovídající sekvenci cílového genu kB, aby se indukovala a zesílila exprese proteinů souvisejících s EMT. Huber a další potvrdili, že inhibice signalizace NF-κB v epiteliálních buňkách transfekovaných Ras by mohla zabránit výskytu EMT a aktivace této dráhy by mohla podporovat morfologickou transformaci buněk na mezenchymální buňky v nepřítomnosti TGF-. Navíc inhibice aktivity NF-κB v mezenchymálních buňkách může vést k obrácení procesu EMT, což naznačuje, že NF-κB je nezbytný pro indukci a udržení EMT [97]. NF-κB se může podílet na regulaci renální fibrózy, ale konkrétní mechanismus je třeba dále studovat (obr. 6).
Makrofágy a renální fibróza
Současné důkazy ukazují, že aktivace makrofágů může indukovat různé signální dráhy a podporovat fibrózu. V modelu UUO byla infiltrace makrofágy zřejmá 4 hodiny po poranění, vrcholila za 24 hodin a o 3 dny později byla udržována na přibližně 10násobku normálních hladin [98]. Makrofágy se dělí na klasicky aktivované makrofágy M1 a aktivované makrofágy M2 na základě aktivačních mechanismů nebo buněčných funkcí [99]. Makrofágy M1 jsou stimulovány lipopolysacharidem (LPS), interferonem- (IFN-) a TNF-. Makrofágy M1 se účastní počátečního stádia zánětu. Makrofágy M2 jsou aktivovány IL-4/10/13, TGF- a sfingosin 1-fosfátem (SP1). Makrofágy M2 produkují růstové faktory, protizánětlivé faktory a proangiogenní cytokiny a makrofágy M2 se podílejí na procesu hojení ran (stadium reparace). Bylo potvrzeno, že uvolňování MCP-1 a dalších chemokinů je způsobeno vysokou úrovní infiltrace makrofágy po poškození ledvin [100]. Infiltrující makrofágy mohou dále přímo způsobit apoptózu a poškození tkání produkcí reaktivních forem kyslíku (ROS) a expresí různých katepsinů. Infiltrující makrofágy mohou také snížit apoptózu prostřednictvím exprese zánětlivých faktorů, jako je TNF-, IL-1/6/12 a CS2/3/4. Kromě toho mohou makrofágy produkovat mnoho chemokinů a prozánětlivých faktorů a dále rekrutovat další vrozené a získané imunitní buňky do poraněné tkáně, aby podpořily poškození tkáně. Charakteristickým znakem aktivace makrofágů je heterogenita. V posledních letech se ukázalo, že makrofágy nejen produkují prozánětlivé faktory, které zhoršují poškození tkáně a podporují progresi fibrózy, ale také urychlují progresi fibrózy přímou produkcí profibrotických faktorů [101–103]. Kromě toho mohou makrofágy po fagocytóze apoptotických buněk produkovat IL-10 a TGF- a tyto faktory mohou indukovat proliferaci myofibroblastů a podporovat výskyt renální fibrózy [104, 105]. Současné studie však ukázaly, že makrofágy M2 jsou hlavními infiltrujícími makrofágy v ledvině 10. den UUO a tyto makrofágy M2 podporují progresi pozdní fibrózy uvolňováním velkého množství TGF- [106, 107].
V souhrnu lze makrofágy při renální fibróze rozdělit do tří typů: prozánětlivé makrofágy, fibrogenní makrofágy a fibrinolytické makrofágy. Tato zjištění poskytují nejen nová vodítka pro pochopení mechanismu výskytu a rozvoje renální fibrózy, ale také naznačují, že makrofágy mohou být novým cílem pro léčbu renální fibrózy (obr. 7).
Preklinické studie terapie kmenovými buňkami pro renální fibrózu
Terapeutické účinky BM-MSC na renální fibrózu
V roce 1966 byly BM-MSC poprvé identifikovány Friedensteinem a kol. [108]. Da Silva a kol. [109] zjistili, že BM-MSC a jejich kondicionované médium (CM) by mohly snížit produkci kolagenu 1, TNF-, -SMA, proliferujícího buněčného nukleárního antigenu (PCNA) a kaspázy 3, což by bránilo EMT v modelu UUO potkanů. Kromě toho renální arteriální injekce BM-MSC také snížila EMT v modelu UUO potkanů. Asa-Numa a kol. [110] injikovali MSC přes renální arterii na UUO potkaním modelu a ukázali, že MSC mohou snižovat hladiny -SMA, FSP plus buňky, TNF- a celkového kolagenu, EMT a renální fibrózu; a zvýšit E-cadherin. EVGF, TGF- 1, IL-10, FGF a hepatocytový růstový faktor (HGF) se však nezměnily. Výsledky experimentů na zvířatech Lang a Dai [111] ukázaly, že BM-MSC by mohly významně zmírnit renální fibrózu u potkaního modelu diabetické nefropatie a mechanismus může být spojen s inhibicí dráhy TGF- 1/Smad3, snížený Exprese proteinu PAI{22}}, snížená akumulace ECM a rovnováha fibrinolytického systému. BM-MSC mohou také snížit protein v moči a Scr. Wu a kol. [112] ukázali, že po léčbě kmenovými buňkami se hladina BUN snížila, tubulární CCL-2 a CCL-5 se snížily a akumulace -SMA a kolagenu typu IV se významně snížila a BM-MSC měly anti- zánětlivé a antifibrotické účinky na renální tubulární buňky. Epidermální růstový faktor 8 mléčných globulí (MFG-E8) je sekreční multifunkční glykoprotein, který se obvykle vyskytuje v globulích lidského mléka. Shi a kol. [113] prokázali, že BM-MSC-EV může snížit renální fibrózu produkcí MFG-E8, který potlačuje dráhu RhoA/ROCK. Ninichuk a kol. [114] injikovali BM-MSC přes ocasní žílu u COL4A3-deficientních myší (model Alportovy choroby) a ukázali, že BM-MSC mohou snížit BUN a Scr a inhibovat glomerulosklerózu a renální fibrózu, ale EVGF a BMP7 se nezměnily . Wang a kol. [115] injikovali BM-MSC přes žílu do UUO myší a ukázali, že BM-MSC mohou snížit Kim-1, Col4a1, TGF- 1, TGF-R1, -SMA a renální fibrózu. Matsui a kol. [116] injikovali BM-MSC přes renální arterii na UUO potkaním modelu a výsledky ukázaly, že BM-MSC mohly snížit Col-I, Col-III, fibronektin, -SMA, p-STAT3, MMP-9 , TIMP-1 a renální fibrózu a zvýšit TIMP-1/MMP-9 (tabulka 1).
Terapeutické účinky AMSC na renální fibrózu
V roce 2001 Zuk a kol. [139] poprvé úspěšně izolovali MSC z tukové tkáně. Ve studii transplantace autologních AMSC Song et al. [23] transplantovali AMSC modelovým krysám UUO injekcí do ocasní žíly a uvedli, že AMSC snižují MCP-1, TLR4, TNF-, IL-1, IL-6, TGF- 1 , Smad2/3, -SMA, fibroblast-specifický protein 1 (FSP-1) a FN a inhibovaná renální fibróza. AMSC však mohly zvýšit Smad7 a E-cadherin, ale Scr a BUN se nezměnily. Burgos-Silva a kol. [128] injikovali AMSC myším FVB intraperitoneální injekcí, aby porovnali účinnost AMSC na akutní ledviny
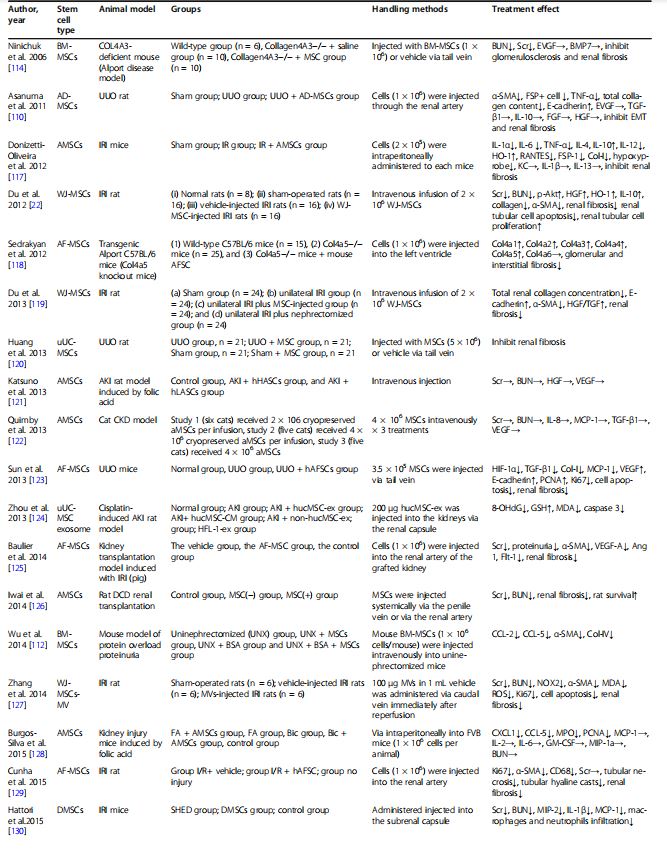

zranění (AKI) a CKD. Výsledky ukázaly, že AMSC snížily CXCL1, CCL-5, MPO a PCNA, ale MCP-1, IL-2, IL-6, GM-CSF, MIP{{6 }}a a BUN nebyly změněny. Donizetti-Oliveira a kol. [117] provedli studii na myším modelu vyvolaném ischemicko-reperfuzním poškozením (IRI) a léčba alogenními AMSC snížila IL-1, IL-6, TNF-, IL-4, IL-12, RANTES, FSP-1, Col-I a Hypoxyprobe a inhibovaly renální fibrózu. Exprese IL-10 a HO-1 však byla zvýšena pomocí AMSC. Kromě toho nebyly změněny KC, IL-1 a IL-13. Quimby a kol. [122] aplikovali intravenózní injekci AMSC do modelu kočičího CKD a ukázali, že AMSC nemohou změnit Scr, BUN, IL-8, MCP-1, TGF- 1 nebo VEGF. Zou a kol. [138] injikovali AMSC přes krční tepnu u IRI myší a výsledky ukázaly, že AMSC mohly snížit BAX a CTGF a inhibovat apoptózu a renální fibrózu, ale exprese PAI a TIMP1 se nezměnila. Podobná studie u koček provedená stejným týmem neprokázala žádné významné změny v BUN, sérovém kreatininu, fosforu, draslíku, rychlosti glomerulární filtrace (GFR), poměru albumin/kreatinin v moči (UACR) nebo objemu naplněných buněk u koček, kterým byla injekčně podána alogenní AMSC [140].
Ve studii xenogenní transplantace AMSC Katsuno et al. [121] kultivovali lidské AMSC s nízkým a vysokým obsahem séra a tyto AMSC a vysokosérové AMSC byly injikovány do AKI potkaního modelu indukovaného kyselinou listovou. Výsledky ukázaly, že stupeň mezenchymální fibrózy ve skupině mezenchymálních kmenových buněk s nízkým obsahem tukových buněk byl nižší než ve skupině s vysokým obsahem tukových mezenchymálních kmenových buněk s vysokým obsahem séra. AMSC však nezměnily hladiny Scr, BUN, HGF nebo VEGF. Kromě toho Zhu a kol. [135] injikovali lidské AMSC do IRI potkaního modelu a výsledky ukázaly, že AMSC snížily -SMA, PDGFR-, FN, Col-I, TGF- 1, p-Smad3/Smad3, IL-6 , IL-1, TNF- a FACS a inhibovaly renální fibrózu, ale zvýšily Sox9 a IL-10. Iwai a kol. [126] injikovali AMSC systémově přes penilní žílu nebo přes renální arterii u potkaního modelu transplantace ledviny DCD a ukázali, že MSC mohou snížit Scr, BUN a renální fibrózu a zvýšit přežití potkanů. Erin a kol. [132] injikovali AMSC přes renální arterii na prasečím modelu RAS. Výsledky ukázaly, že AMSC snížily Scr, makrofágy M1, makrofágy M1/M2, TNF-, IL-6, IL-1 a renální fibrózu a zvýšily IL-10 a počet makrofágů M2 (Stůl 1).
Terapeutické účinky WJ-MSC na renální fibrózu
Zvláště byla studována funkce WJ-MSC při léčbě renální fibrózy. Extrakce WJ-MSC může být provedena v intervaskulárních, perivaskulárních a subamniotických oblastech Whartonova želé [141]. Du a kol. [22] provedli studii na potkaním modelu IRI s intravenózní infuzí WJ-MSC a prokázali, že WJ-MSC snížily celkovou koncentraci kolagenu v ledvinách, hladiny -SMA a renální fibrózu a zvýšily E-cadherin a HGF/TGF. Du et al [119] také hodnotili účinky WJ-MSC na akutní a chronické poškození ledvin vyvolané IRI a uvedli, že WJ-MSC inhibovaly Scr, BUN, kolagen, -SMA, renální fibrózu a apoptózu renálních tubulárních buněk a zvýšily p -Akt, HGF, HO-1, IL-10 a proliferace renálních tubulárních buněk.
Dále Zhang a kol. [127] injikovali lidské WJ-MSC-MV do IRI potkanů a zjistili, že MV mohou eliminovat IRI-indukovanou fibrózu a zlepšit renální funkci. Kromě toho výsledky ukázaly, že WJ-MSCs-MVs snížily Scr, BUN, NOX2, -SMA, MDA, ROS a Ki67 a zmírnily apoptózu. Wu a kol. [137] injekčně podali WJ-MSCs-MV přes ocasní žílu po transplantaci ledviny v modelu IRI transplantace ledvin u potkana a výsledky ukázaly, že WJ-MSCs-MV snížily hladiny exprese Scr, BUN, vWF, IL-10 , TNF-, -SMA a TGF- 1, inhibovaly buněčnou apoptózu a renální fibrózu a zvýšily Ki67 a HGF. Jak bylo zmíněno dříve, lidské WJ-MSC-MV mohou významně snížit renální fibrózu (tabulka 1).
Terapeutické účinky AF-MSC na renální fibrózu
Sedrakyan a kol. [118] vytvořili zvířecí model Alportova syndromu pro intrakardiální transplantaci homogenních AF-MSC. Výsledky ukázaly, že AF-MSC inhibovaly progresi intersticiální fibrózy a glomerulosklerózy před nástupem proteinurie. Polarizace makrofágů M2 byla také nalezena v ledvinách myšího modelu. Po transplantaci ledviny byly autologní AF-MSC injikovány přímo do transplantované ledviny přes renální tepnu. Výsledky ukázaly, že injekce AF-MSC zvýšila Col4a1, Col4a2, Col4a3, Col4a4 a Col4a5, ale Col4a6 se nezměnil. Sun a kol. [123] injekčně podali AF-MSC přes ocasní žílu na myším modelu UUO a ukázali, že AF-MSC snížily HIF-1, TGF- 1, Col-I, MCP-1, Ki67, apoptóza a renální fibróza a zvýšený VEGF, E-cadherin a PCNA. Boulier a kol. [125] ukázali, že AF-MSC mohou léčit renální fibrózu na zvířecích modelech a tento účinek může být spojen s AF-MSC zprostředkovaným zlepšením glomerulární a tubulární funkce prostřednictvím dráhy TGF-/Smad3, což účinně zlepšuje renální fibrózu. Výzkumníci také ukázali, že AF-MSC mohou snížit Scr, proteinurii, -SMA, VEGF-A, Ang 1 a Flt-1. Monteiro Carvalho Mori da Cunha a kol. [129] vstříkli AF-MSC do renální arterie na IRI potkaním modelu a výsledky ukázaly, že AF-MSC snížily Ki67, - SMA, CD68, tubulární nekrózu, tubulární hyalinní odlitky a renální fibrózu, ale Scr se nezměnil ( Stůl 1).
Terapeutické účinky mezenchymálních kmenových buněk z jiných zdrojů na renální fibrózu
Huang a kol. [120] injikovali UC-MSC přes ocasní žílu v modelu UUO potkanů a výsledky ukázaly, že MSC inhibovaly renální fibrózu. Zhou a kol. [124] injikovali exozomy odvozené od UC-MSC do modelu potkana AKI indukovaného cisplatinou a výsledky ukázaly, že exozomy odvozené od UC-MSC snížily 8-OhdG, MDA a kaspázu 3 a zvýšily GSH. Zou a kol. [131] injekčně podali UC-MSCs-MV přes kaudální žílu po IRI a výsledky ukázaly, že hu-MSC snížily Scr, BUN, apoptózu, HIF-1, -SMA a renální fibrózu a zvýšily Ki67, VEGF, PHD2 a VHL. Liu a kol. [133] vstříkli UC-MSC-Conditioned medium (CM) (500 μl) do levé renální tepny po operaci u UUO potkanů a výsledky ukázaly, že UC-MSC-CM snížil ROS, MDA, -SMA, TGF{{25 }}, TNF-, Col-I, apoptóza a renální intersticiální fibróza a zvýšený GSH, E-cadherin a PCNA. Rota a kol. [136] aplikovali intravenózní infuzi UC-MSC v ADR-indukovaném nefropatickém athymickém potkaním modelu a prokázali, že UC-MSC oslabily poškození glomerulárních podocytů a endoteliálních buněk. Rodrigues a kol. [134] injikovali hu-MSC prostřednictvím injekce do žíly na IRI potkaním modelu a výsledky ukázaly, že hu-MSC mohly snížit BUN, Scr, FENa, TGF- 1, HO-1, miR{{38 }}a, miR-34a a renální fibróza, ale miR-29b a miR-335 se nezměnily. DMSC jsou buňky podobné MSC, které jsou přítomny v lidském těle po celý život [142]. Studie ukázaly, že kryokonzervace DMSC může podporovat regeneraci struktury renálních tubulů u potkanů s akutním selháním ledvin. Kromě toho Hattori a kol. [130] potvrdili, že DMSC mohou redukovat zánětlivé cytokiny a podporovat renální funkci při akutním renálním poškození způsobeném ischemicko-reperfuzním poškozením. Výzkumníci prokázali, že DMSC snížily Scr, BUN, MIP-2, IL-1 a MCP-1 a zmírnily infiltraci renálních makrofágů a neutrofilů (tabulka 1).
Klinické aplikace MSC při léčbě renální fibrózy (bezpečnost a účinnost)
Jak již bylo zmíněno dříve, ve většině preklinických studií nevyvolávaly BM-MSC téměř žádné nežádoucí reakce a jsou považovány za bezpečné, ale jejich účinnost je stále kontroverzní [122, 140, 143]. Pro lidský překlad je však bezpečnost vážným problémem a překážkou hladkého přechodu z laboratoře. Znepokojující je, že pacienti jsou náchylní k infekci kvůli svému fyzickému stavu a technickým problémům. Imunomodulační účinky, potenciální karcinogenita, aktivní proliferace kmenových buněk, buněčná embolie, akutní a chronická imunogenicita buněk a zoonóza vyvolaná činidly buněčných kultur [144]. Klinická studie fáze I ukázala, že po kardiochirurgickém výkonu pacienti s vysokým rizikem AKI dostávali alogenní MSC a bylo zjištěno, že alogenní MSC jsou proveditelné a bezpečné [145]. Tan a kol. [146] zjistili, že ve srovnání s indukční terapií anti-IL-2 receptorovými protilátkami mohou autologní BM-MSC snížit riziko oportunní infekce, snížit výskyt akutní rejekce ledvin a lépe předpovídat renální funkce. Kromě toho BM-MSC nezvýšily nežádoucí účinky a neměly žádný negativní dopad na míru přežití po transplantaci ledvin. Reinders a kol. [147] extrahovali BM-MSC od pacientů s terminálním onemocněním ledvin (ESRD) a zdravých kontrol odpovídajících věku a zjistili, že tyto buňky mají podobné fenotypové a funkční charakteristiky. Kromě toho vědci také hodnotili účinek autologních BM-MSC na rejekci po transplantaci ledviny a zjistili, že renální intersticiální fibróza/tubulární atrofie (IF/TA) byla zmírněna u 2 pacientů s renální tubulitidou bez rejekce a použití autologní BM MSC při transplantaci, IF/TA a subklinické rejekci jsou klinicky praktické a bezpečné [148]. Výzkumníci také ukázali, že autologní BM-MSC v kombinaci s inhibitorem mTOR everolimus by mohly podpořit vysazení takrolimu a snížit renální fibrózu u příjemců transplantace ledvin. Dobré výsledky byly získány pro BM-MSC v prevenci renální fibrózy, která se ukázala být bezpečnou a chráněnou strukturou a funkcí ledvin, což naznačuje, že pacienti na čekacích listinách na transplantaci ledviny dosáhli dobrého pokroku [149]. Obávali jsme se alogenní imunitní odpovědi na buněčnou terapii od dárce u pacientů s transplantací ledvin. Alogenní MSC by mohly vyvolat imunitní odpověď proti dárci, což by zvýšilo výskyt odmítnutí orgánu a ovlivnilo přežití aloštěpů. Reinders a kol. [150] se pokusili použít alogenní BM-MSC k potvrzení jejich účinnosti a bezpečnosti u příjemců renálního transplantátu a prokázali, že alogenní BM-MSC jsou účinnou a bezpečnou léčbou. V naší předchozí studii [151] jsme zjistili, že u pacientů se systémovým lupus erythematodes měla skupina MSC nižší proteinurii než kontrolní skupina a skupina MSC také vykazovala nižší výskyt nežádoucích účinků než kontrolní skupina.
Studie však ukázala, že léčba MSC nemusí v klinických studiích dosáhnout dobré účinnosti. Kim a kol. [152] vyšetřili pacienta s CKD, aby zhodnotili účinnost autologních AMSC. Renální funkce pacienta byla před podáním AMSC řadu let stabilní. Preexistující renální insuficience se rychle zhoršila 1 týden po autologní MSC infuzi a renální biopsie prokázala infiltraci zánětlivých buněk a těžkou renální intersticiální fibrózu s několika kmenovými buňkami. Výsledky ukázaly potenciální nefrotoxicitu autologní terapie AMSC u pacientů s CKD.
Jak již bylo zmíněno dříve, v současnosti existuje relativně málo klinických studií na kmenových buňkách při léčbě renální fibrózy. Dodatečné studie by měly být
k posouzení bezpečnosti a účinnosti MSC při léčbě renální fibrózy.
Závěr
Výskyt renální fibrózy může být spojen se signálními cestami TGF-/Smad, Notch, Hedgehog, Wnt, TNF-, NF-KB, MAPK, JAK/STAT, PI3K/AKT a RHO/ROCK. Některé práce dosud naznačovaly, že kmenové buňky mohou regulovat signální dráhy TGF-/Smad, NF-KB, MAPK/ERK, PI3K/AKT a TNF- ke zmírnění renální fibrózy. Žádná studie neprokázala, že by kmenové buňky regulovaly signální dráhy Notch, Hedgehog, Wnt, RHO/ROCK nebo JAK/STAT k léčbě renální fibrózy. K potvrzení kmenových buněk jsou zapotřebí další studie
může působit prostřednictvím signálních drah Notch, Hedgehog, Wnt, JAK/STAT a RHO/ROCK k léčbě renální fibrózy.
Diskuse
V současné době se myšlenka použití kmenových buněk při léčbě renální fibrózy soustředila především na mechanismus fibrózy za účelem léčby renální fibrózy inhibicí fibrotických signálních drah. Ve srovnání s jinými způsoby léčby renální fibrózy mají kmenové buňky několik výhod.
(1) Kmenové buňky mají silné proliferační schopnosti a vícesměrný diferenciační potenciál a mohou se množit, diferencovat a produkovat různé potomstvo.
(2) Inhibice proliferace T buněk a imunitní reakce prostřednictvím mezibuněčných interakcí a produkce cytokinů moduluje imunitní odpověď.
(3) Kmenové buňky jsou vhodné a snadno se izolují, kultivují, amplifikují a čistí a tyto buňky si zachovávají vlastnosti kmenových buněk po opakovaných pasážích amplifikace.
(4) Kmenové buňky mají nízkou imunogenicitu. Vzhledem k tomu, že tyto buňky jsou v primitivním stavu, nejsou snadno rozpoznatelné, a tak neexistuje žádný problém, pokud jde o shodu krevních skupin a žádné charakteristiky imunitního odmítnutí.
(5) Dlouhodobá pasáž může být použita k diferenciaci těchto buněk na různé typy buněk, jako jsou renální vrozené buňky, svalové buňky, jaterní buňky, osteoblasty a chondrocyty, aniž by se změnily jejich biologické charakteristiky.
(6) Charakteristickým znakem těchto buněk je navádění (cílení -- cílení). Signály poškození mohou stimulovat migraci a diferenciaci kmenových buněk do poškozených orgánů a tkání, což usnadňuje navádění k poškozeným lézím a opravu poškozených buněk.
Existují však také problémy s použitím terapie kmenovými buňkami pro renální intersticiální fibrózu.
(1) Mechanismus, kterým kmenové buňky snižují renální intersticiální fibrózu, je omezen na závěry vyvozené z experimentálních důkazů a nebyla vyvinuta žádná jednotná specifická teorie.
(2) Většina výzkumu v oblasti kmenových buněk v ledvinách se omezila na pokusy na zvířatech nebo in vitro, zdroj kmenových buněk a jejich purifikace nejsou standardizovány a existuje jen málo zpráv o skutečných kmenových buňkách používaných v klinické praxi. léčba renální fibrózy. Na klinice chybí standardizovaná léčba onemocnění ledvin. Specifické kmenové buňky používané pro klinickou léčbu renální fibrózy jsou v souladu se zvířecími modely a závěry ještě vyžadují potvrzení klinických studií.
(3) Rozdíly v metodách používaných k získání kmenových buněk nelze ignorovat a chybí přísné protokoly pro charakterizaci, manipulaci a dodávání kmenových buněk. Kultivační médium kmenových buněk nelze zcela vyčistit. Po vstupu do lidského těla může toto médium vyvolat alergické reakce
(4) Kmenové buňky mají vlastnost multidiferenciace a při aplikaci v klinické praxi je možné, aby se exogenní kmenové buňky diferencovaly na necílové
produkty, jako jsou nádory a tuk po implantaci in vivo. Bezpečnost transplantovaných kmenových buněk nebyla jednoznačně prozkoumána a k vyvození závěrů jsou zapotřebí další klinické studie.
Očekávání
Přestože dosud žádná studie nepotvrdila, že kmenové buňky mohou zmírnit renální fibrózu prostřednictvím signálních drah Notch, Hedgehog, Wnt, Rho/Rock nebo JAK/STAT, věříme, že tyto mechanismy budou potvrzeny prostřednictvím kontinuálních experimentálních studií. Pokud experimentální data ukážou, že kmenové buňky jsou účinné v léčbě renální fibrózy, pak bude klinická aplikace kmenových buněk novou možností léčby renální fibrózy.
Zkratky
BM-MSC: mezenchymální kmenové buňky kostní dřeně; UC-MSC: mezenchymální kmenové buňky z pupečníkové krve; AF-MSC: mezenchymální kmenové buňky plodové vody; AMSC: Tukové mezenchymální kmenové buňky; WJ-MSC: MSC odvozené z Whartonova želé; DMSC: zubní mezenchymální kmenové buňky; ECM: Extracelulární matrix; CKD: Chronické onemocnění ledvin; EMT: transformace epitelu na mezenchym; TIMP: Tkáňový inhibitor metaloproteináz; MMP: matricové metaloproteinázy; PI3K/AKT: fosfatidylinositol-3kináza; TGF-
1: Transformující růstový faktor- 1; NF-kB: jaderný faktor-kB;
PTCH1: Patched1; GSK3B: Glykogensyntáza kináza 3B; CK1: Kaseinkináza 1; PKA: proteinkináza A; Smo: vyhlazené; Gli: protein se zinkovým prstem;
CK1: kaseinkináza 1; Rock: Rho coil kináza; JAK-STAT: Transkripční/signálové převodníky a aktivátory transkripce; MAPK: mitogenem aktivovaná proteinkináza; TNF-: faktor nekrózy nádorů; SP1: sfingosin 1-fosfát; PTEN: homolog fosfatázy a tenzinu; MMT: přechod makrofág-myofibroblast; EndoMT: Endoteliálně-mezenchymální transformace; -SMA: - Aktin hladkého svalstva; PAI{11}}: inhibitor aktivátoru plasminogenu{12}};
PCNA: nukleární antigen proliferující buňky; LPS: lipopolysacharid; IFN-: Interferon-; ROS: reaktivní formy kyslíku; HGF: Hepatocyte growth factor; MFG-E8: epidermální růstový faktor 8 mléčných globulí; GFR: Glomerulární filtrační rychlost; UACR: poměr albumin/kreatinin v moči; AKI: Akutní poškození ledvin; FSP- 1: Fibroblast-specifický protein 1; CBP: CREB-vazebný protein; Pst: Sonic ježek; Ihh: indický ježek; Dhh: Pouštní ježek; UUO: Jednostranná ureterální obstrukce; IRI: ischemicko-reperfuzní poškození; CM: Kondicionované médium; IF/TA: Renální intersticiální fibróza/tubulární atrofie; NICD: Notch intracelulární doména
Poděkování
Žádný.
Příspěvky autorů
YPL vyhledala spoustu příslušných dokumentů a napsala rukopis. YYS a QY zkontrolovali a zkontrolovali článek. TBZ upravil a vyleštil článek a zkontroloval článek. Autoři přečetli a schválili konečný rukopis.
Informace autorů
YPL je studentem prvního ročníku postgraduálního studia oboru nefrologie na druhé přidružené nemocnici univerzity Shantou. YYZ je vedoucím oddělením nefrologie, lidové nemocnice okresu Huadu v Guangzhou, Southern Medical University, Guangzhou, Čína. QY je studentem prvního ročníku postgraduálního studia oboru nefrologie na druhé přidružené nemocnici univerzity Shantou. TBZ je přidruženým vedoucím lékařem na klinice nefrologie, druhé přidružené nemocnice lékařské fakulty univerzity Shantou se sídlem na adrese 69 Dongxia North Road, okres Jinping, město Shantou, provincie Guangdong.
Financování
Nelze použít.
Dostupnost dat a materiálů
Sdílení dat se na tento článek nevztahuje, protože během aktuální studie nebyly vytvořeny ani analyzovány žádné datové sady.
Liu a kol. Výzkum a terapie kmenových buněk (2021) 12:333 Strana 15 z 18
Prohlášení
Etický souhlas a souhlas s účastí
Nelze použít.
Souhlas se zveřejněním
Nelze použít.
Konkurenční zájmy
Autoři prohlašují, že nemají žádné konkurenční zájmy.
Podrobnosti o autorovi
1Katedra nefrologie, Druhá přidružená nemocnice Shantou University Medical College, č. 69 Dongsha Road, Shantou 515041, Čína. 2Katedra nefrologie, lidová nemocnice okresu Huadu v Guangzhou, Southern Medical University, Guangzhou, Čína.


