ČÁST DRUHÁ Echinakosid zvyšuje množství spermií u potkanů cílením na hypotalamický androgenní receptor
Mar 09, 2022
Pro více informací prosím kontaktujte:Joanna.jia@wecistanche.com
Jak echinakosid stimuluje estrogen a zvyšuje počet spermií?

Cistanche deserticola má mnoho účinků, klikněte sem a dozvíte se více
Diskuse
Etnofarmakologické záznamy a naše předchozí studie13 to potvrdilyCistanche tubulosa extrakty účinně zvýšily hladiny pohlavních hormonů a zlepšily kvalitu spermií. ECH jako jedna z hlavních sloučenin vCistanchetubulosa19,20, může zvýšit počet spermií a zvýšit sekreci LH a T (obr. 1). V této studii jsme prokázali, že ECH byla distribuována do hypotalamu místo do varlat, což naznačuje nepřímý účinek ECH na varlata. ECH skutečně přímo inhibovala aktivitu AR hypotalamu, translokaci AR do jádra a genovou expresi související s HPG osou a také poskytovala ochranu proti poškození reprodukce vyvolanému BPA.
Ve studiích produkce lidských gonadotropinů jsou hladiny pohlavních hormonů přísně regulovány osou HPG a smyčkou negativní zpětné vazby21. Konkrétně sekrece T je výrazně zvýšena v reakci na konzistentní a trvalé zvýšení hladin LH v krvi v reakci na nedostatek negativní androgenní zpětné vazby do hypofýzy a hypotalamu. V této studii ECH zvýšila sekreci LH v encefalu plus hypofýze a produkci testosteronu ve varlatech a hladiny mRNA LHR a Gnrhr v encefalu plus hypofýze (obr. 1 a obr. 4), což naznačuje, že ECH může ovlivnit negativní zpětnou vazbu osy HPG . Není překvapením, že samotná AR hraje důležitou roli ve zpětnovazební regulaci hladin T a LH22,23. Mužské paradigma HPG osy je zaměřeno na testosteron poskytující negativní zpětnou vazbu na úrovni hypotalamu i hypofýzy24,25. Předchozí studie použily Foxg1-Cre k ablaci genů zájmu v hypofýze, ale ne v hypotalamu, aby se určila relativní důležitost těchto dvou oblastí. Výsledky ukázaly, že signalizace AR v hypofýze samců myši je zbytečná, pokud jde o regulaci sekrece LH závislou na testosteronu26. Z tohoto důvodu jsme se pro další studium rozhodli zaměřit na hypotalamickou AR.

Echinakosidvcistanchemůže chránit játra
Jako receptor steroidního jaderného hormonu je aktivita AR regulována steroidním ligandem T, jehož vazba iniciuje jadernou translokaci a transkripční regulační funkci AR27. V této studii jsme ukázali, že léčba ECH inhibovala translokaci AR z cytoplazmy do jader v hypotalamu (obr.3). Kromě toho PK studie ukázala, že ECH může výrazně pronikat do hypotalamu spíše než do varlat, což naznačuje, že více ECH prochází hematoencefalickou bariérou, pravděpodobně prostřednictvím endocytózy, spíše než bariérou krevních varlat. Dále jsme pomocí nepřímé ELISA prokázali kombinační kapacitu ECH a AR, což naznačuje, že ECH se může přímo vázat na AR. To bylo dále podpořeno výsledky testu dokování molekul, které ukázaly, že domnělá vazebná místa pro ECH existují v Met-894 a Val-713 v kapse AR (obr. 5D). To podporuje zjištění jiných, že AR se účastní regulace negativní napájecí smyčky a že snížení interakcí AR-T v mozku vede ke zvýšené sekreci LH23,28,29.
Steroidogeneze je přísně kontrolovaný, nezbytný proces pro vývoj spermatogeneze se zapojením steroidogenního proteinu (StAR)30 a steroidogenních enzymů, jako jsou CYP11A1, CYP17A1, 3 -hydroxysteroid dehydrogenáza (HSD3) a 17 -hydroxysteroid dehydrogenáza (HSD17), která přeměňuje cholesterol na testosteron31. Ukázali jsme, že hladiny mRNA genů kódujících tyto enzymy významně vzrostly při léčbě ECH, zatímco exprese mRNA StAR se nezměnila. To naznačuje, že ECH neměl žádný vliv na přenos cholesterolu do vnitřní membrány mitochondrií, zatímco může hrát roli při podpoře přeměny cholesterolu na testosteron. Z toho lze vyvodit závěr, že léčba ECH významně zvyšuje počet spermií zvýšením syntézy a sekrece testosteronu.
Ke zkoumání ochranného účinku ECH na poškození spermií byl bisfenol A (BPA), typický exogenní endokrinní disruptor, použit jako model samčího reprodukčního poškození u myší32. Léčba ECH účinně obnovila počty spermií, motilitu spermií, hladiny T a LH snížené BPA (obr. 6A, B), což naznačuje, že ECH může zmírnit poškození spermií.

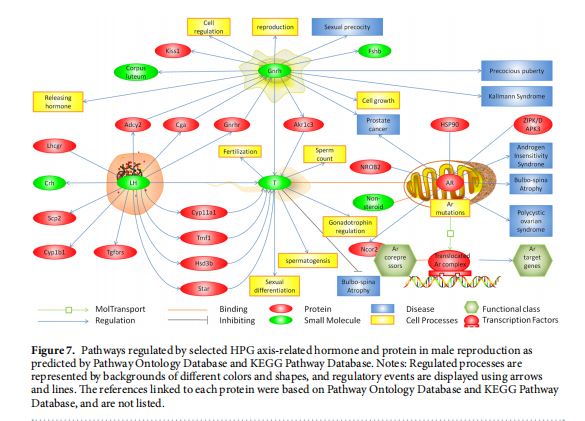
Ve srovnání s uměle syntetizovanými chemikáliemi pro hormonální substituční terapii je ECH přírodní nehormonální sloučenina, která ovlivňuje negativní zpětnou vazbu na HPG ose, čímž zvyšuje sekreci LH, T a kvalitu spermií. Tato mechanická cesta může chránit mužský reprodukční systém, a proto lze ECH považovat za potenciální přírodní reprodukční ochranný prostředek. Regulace hormonů jsou však složité a často vedou k systémovým účinkům. Jak je naznačeno na obr. 7, ECH zvýšila sekreci T a LH a inhibovala aktivaci AR, což může také vést k následkům na jiné cesty spojené se zdravím nebo onemocněním, jako je osteoporóza33 a deprese u mužů34, proto by komplexní účinky ECH měly být dále vyšetřován. Celkově naše výsledky naznačují, že ECH se váže na AR v hypotalamu a inhibuje přenos AR z cytoplazmy do jádra. Naše data naznačují, že ECH se váže na místa v kapse AR na aminokyselinách Met-894 a Val-713. To může vysvětlit zvýšení hladin T a AR jako systémovou odpověď na vyvážení hladin hormonů podporou sekrece LH a následným zvýšením produkce T a počtu spermií (obr. 8).

Echinakosidvcistanchemůže proti oxidaci
Metody Etické prohlášení.
Tato studie byla provedena v přísném souladu s Směrnicemi pro experimentální zvířata stanovenými Ministerstvem vědy a technologie (Peking, Čína). Všechny experimentální protokoly byly přezkoumány a schváleny etickou komisí Anyang Institute of Technology. Pokusná zvířata. Čtyřtýdenní inbrední myši Kunming (22 g–25 g) byly získány ze zvířecího centra čtvrté vojenské lékařské univerzity (Xi'an, Čína). Zvířata byla držena za kontrolovaných podmínek při teplotě 22 stupňů ± 2 stupně, vlhkosti 70 procent ± 4 procenta s 12 hodinovým cyklováním světlo-tma a volným přístupem ke krmivu a vodě. 6

Experimentální léčba.
Experiment 1. Myši byly náhodně rozděleny do šesti skupin, sedm myší v každé skupině (n=7). ECH (CAS: 82854-37-3; Chengdu Preferred Biotechnology Co., Ltd, Sichuan, Čína) byl podáván pomocí intragastrické sondy a byl podáván testosteron propionát (TP, CAS: 57-85-2; KingYork, Tianjin, Čína). podávaná intramuskulární injekcí jednou denně po dobu 14 dnů podle následujícího experimentálního uspořádání: Kontrolní skupina: normální fyziologický roztok (10ml/kg), skupina ECH(L) (5 mg/kg), skupina ECH(M) ( 20 mg/kg), skupina ECH(H) (80 mg/kg), TP (15 mg/kg) a enzalutamid (inhibitor AR, jednou denně každý druhý den po dobu 14 dnů; 20 mg/kg; CAS: 915087-33-1; Aladdin , Šanghaj, Čína). Po 2 týdnech léčby byly myši anestetizovány diethyletherem, aby byly odebrány vzorky krve pro analýzu hladin hormonů. Myši pak byly pitvány, aby se oddělil hypotalamus, mozek plus hypofýza, varlata a cauda nadvarlata. Vzorky cauda epididymis byly vloženy do normálního fyziologického roztoku s 5% BSA pro hodnocení kvality spermií a hypotalamus, mozek plus hypofýza a varlata byly zmraženy v kapalném dusíku a skladovány při teplotě -80 stupňů pro další vyšetření. Experiment 2. Myši byly náhodně rozděleny do 10 skupin, pět zvířat na skupinu. ECH (20 mg/kg) byl podáván orálně a myši v každé skupině byly anestetizovány diethyletherem v časových bodech 0,5 h, 1 h, 1,5 h, 2 h, 2,5 h, 3 h, 4 h, 6 h, 9 h a 12 h po podání. kolekce vzorků. Byla odebrána plazma a srdce bylo obnaženo. Perfuze normálního fyziologického roztoku do levé komory byla prováděna infuzním přístrojem, dokud játra a plíce nebyly blanšírovány. Bylo odebráno deset hypothalami a varlat pro stanovení tkáňových koncentrací ECH. Experiment 3. Myši byly náhodně rozděleny do 4 skupin, sedm v každé skupině. ECH a BPA (CAS: 80-05-7; Aladdin, Shanghai, Čína) byly podávány intragastrickou sondou jednou denně po dobu 6 týdnů podle následujícího experimentálního uspořádání: normální skupina (kukuřičný olej, 10 ml/kg, bw/ d), modelová skupina: skupina BPA (BPA 200 mg/kg, bw/d, kukuřičný olej) a experimentální skupina: skupina BPA plus ECH (BPA 200 mg/kg; ECH 20 mg/kg). Po 42 dnech léčby byly myši anestetizovány diethyletherem a byly odebrány vzorky krve pro analýzy hladiny hormonů. Testis a cauda epididymis byly odděleny a odebrány. Pro hodnocení kvality spermií bylo použito cauda epididymis a varlata byla zmražena v tekutém dusíku a skladována při teplotě -80 stupňů pro další vyšetření.
odhodlání z spermie kvalitní. Spermie suspenze příprava. Cauda nadvarlata byla rozemleta do 5 ml normálního fyziologického roztoku s 5 procenty BSA a inkubována po dobu 5 minut při 37 stupních, aby se jejich obsah mohl rozšířit do média.
Počet spermií: Podle metody popsané Yokoi (2003) byla zředěná suspenze spermií (1:10; v/v; suspenze spermií/10% methanol) přenesena do každé počítací komory hemocytometru a byla ponechána stát 5 min a poté počítány pod světelným mikroskopem (Nikon, Instruments Inc., Japonsko) při zvětšení X200.
Životaschopnost spermií: Celkem 20 μl suspenze spermií bylo smícháno se stejným objemem barviva eosin-nigrosin po dobu 2 minut; nezabarvené spermie byly spočítány pod světelným mikroskopem při 200x zvětšení.
Pohyblivost spermií: Celkem 10 μl suspenze spermií bylo umístěno na podložní sklíčko a byly zaznamenány jako pohyblivé nebo nepohyblivé pod světelným mikroskopem při 200x zvětšení.
odhodlání z hormon úrovně. Hladiny testosteronu (T) a LH byly kvantifikovány v homogenátech séra, encefala plus hypofýzy a varlat pomocí souprav pro radioimunoanalýzu (RIA) (Beijing Sino-UK Institute of Biological Technology, Peking, Čína). Krátce, anti-testosteron nebo anti-LH IgG protilátka (100 ul) a 125-I-konjugovaná anti-myší protilátka byly přidány do vzorků nebo standardu (100 ul) a míchány na kolébce přes noc při 4 stupních. Po trojnásobném promytí PBS-Tween 20 (500 ul) byly směsi centrifugovány (3500 ot./min.) při 4 stupních po dobu 15 minut. Hodnoty CPM precipitátů byly stanoveny pomocí radioimunoanalytického přístroje (Beijing Sino-western Technology Co. Ltd, CN202M/KZ4GC-1200, Peking, Čína) a koncentrace T a LH byly vypočteny podle vzorce standardu křivka. Variační koeficient T a LH je 2,8 procenta a 3,2 procenta ve vzorových skupinách a 2,1 procenta a 2,8 procenta ve standardních skupinách.
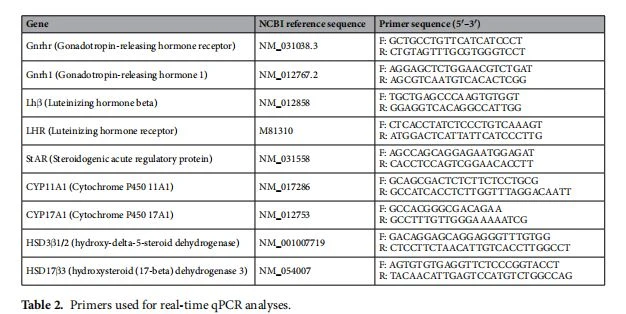
odhodlání z gen výrazy podle reálný čas kvantitativní PCR. Celková RNA byla izolována ze zmrazených tkání varlat a encefala plus hypofýzy za použití soupravy RNA Simple Total RNA (Tiangen, Peking, Čína). Kvantitativní real-time PCR (q RT-PCR) byla provedena pro amplifikaci cDNA pomocí 2 x SYBR Green I PCR Master Mix (Vazyme, Nanjing, Čína). Postup PCR sestával z 95 stupňů po dobu 30 sekund následovaných 35 cykly 95 stupňů po dobu 15 sekund, 58 stupňů po dobu 30 sekund a 72 stupňů po dobu 30 sekund. Analýza křivky tání byla provedena na produktech PCR, aby se ověřila specificita primeru a čistota produktu. Pro každou destičku byla provedena disociační křivka pro potvrzení produkce jednoho produktu. Bylo vypočteno relativní množství každé mRNA. PCR primery použité pro studii jsou uvedeny v tabulce 2.
Západní skvrna. Pro analýzu exprese AR byla provedena extrakce a izolace cytoplazmatického a jaderného proteinu pomocí soupravy pro extrakci cytoplazmatického a jaderného proteinu (Beyotime, Nanjing, Čína) podle pokynů výrobce. Koncentrace cytoplazmatických a jaderných proteinů byly hodnoceny pomocí soupravy Bradford Protein Assay Kit (Beyotime, Jiangsu, Čína). Vzorky proteinů (80 ug) byly naneseny na 12% a 5% SDS-PAGE gel a přeneseny na PVDF membrány. Po zablokování byly membrány inkubovány s anti-AR IgG protilátkami (1:1,000; Bioss; Peking Čína) a myšími polyklonálními anti-GAPDH protilátkami (1:1,000; Wuhan Boster Biologický

Technology, Wuhan, Čína) nebo myší polyklonální anti-Lamin b1 protilátky po dobu 2 hodin. Membrána byla třikrát promyta TBST a inkubována s HRP-konjugovanou králičí anti-myší IgG protilátkou (1:5, 000; Bioss; Peking Čína). Signál byl vizualizován pomocí systému ChemiDoc Imaging System (Tanon-3,500, Šanghaj, Čína).
Vysoký výkonKapalina Chromatografie (HPLC) test. Krev byla odebírána do heparinizovaných skleněných zkumavek. Plazma byla oddělena okamžitou centrifugací při 6,{1}} otáčkách za minutu po dobu 10 minut a skladována při -20 stupních pro další experiment. Vzorky hypotalamu a varlat z každého časového bodu byly spojeny a homogenizovány methanolem. Po odstředění při 10, 000 otáčkách za minutu při 4 stupních po dobu 10 minut byl supernatant zakoncentrován N2a zbytek byl rozpuštěn v 50 μl methanolu a přefiltrován přes 0,45 μm filtr. Deset μl kapaliny filtrované vzorkem bylo vstříknuto do systému HPLC pro analýzu.
Standardní křivka sestávala ze vzorků obsahujících 50, 100, 250, 500 a 750 ng/ml ECH (Chengdu Pufei De Biotech Co., Ltd, Sichuan, Čína). Vzorky pro kontrolu kvality plazmy s přídavkem 75 ng/ml (nízká), 150 ng/ml (střední) a 300 ng/ml (vysoká) ECH byly odpovídajícím způsobem připraveny pro měření přesnosti a preciznosti metody.
Chromatografie byla provedena pomocí systému HPLC (D2{{1{12}}}}}00 Elite series, Hitachi, Japonsko) připojeného k UV detektoru (L-2400, Hitachi, Japonsko). Separace byla provedena na Thermo-C18 (250 mm x 4,6 mm vnitřní průměr, 4,6 um částice) koloně udržované při 25 stupních. Mobilní fází byl gradient připravený z 0,1 % kyseliny fosforečné obsahující 0,04 % trimethylaminu (složka A) a methanolu (složka B). Lineární gradient byl následující: 70–90 procent A za 0-2 min, 60–70 procent A za 2–6 minut, 55–60 procent B za 6–8 minut a poté se vrátil na 90 procent A při 8 min ihned. Průtok byl 0,8 ml/min. UV detektor pracoval při 332 nm. Oblast píku byla vyhodnocena jako analytické měření.
Farmakokinetické studie v myši. Průnik ECH do hypotalamu a varlat byl podroben farmakokinetické analýze pomocí softwaru Drug and Statistics (Drug and Statistics, Mathematical Pharmacology Professional Committee of China). Farmakokinetické parametry byly stanoveny nekompartmentální metodou založenou na teorii statistického momentu. Předběžné farmakokinetické parametry včetně doby do dosažení maximální konstanty (Tmax), maximální koncentrace (Cmax), rychlostní konstanta eliminace (Ke), poločas eliminace (T0.5), plocha pod křivkou (AUC0–12), zdánlivý distribuční objem (Vc) a clearance (CL) byly získány pro další analýzu. Poměry mozek/plazma byly vypočteny na základě AUC0-thodnoty pro plazmu a mozek.
ECH-ovalbumin (ECH-OVA) syntéza a identifikace. Celkem 9,8 mg ECH a 1 0 mg anhydridu butandiolu bylo rozpuštěno ve 2 ml pyridinu, mícháno po dobu 12 hodin za míchání při teplotě místnosti. Směs byla zahuštěna pomocí N2a zbytek byl spojen s 10,8 mgN-hydroxysukcinimid (NHS) a 19,3 mg dicyklohexylkarbodiimidu (DCC) a rozpuštěné ve 4 mlN, N-dimethylformamidu (DMF) po dobu 12 hodin za míchání při teplotě místnosti. Po centrifugaci při 2,000 g po dobu 5 minut při 4 stupních byl supernatant přidán do 5 ml PBS, ve kterém bylo rozpuštěno 14,4 mg ovalbuminu (OVA). Nová směs se míchá 24 hodin při 4 stupních. Reakční roztok byl poté dialyzován proti PBS po dobu tří dnů. Přítomnost ECH-OVA byla potvrzena UV spektry (Shimadzu Scientifc Instruments, Inc. Columbia, MD USA) při vlnové délce v rozmezí od 190 do 400 nm a také denaturací PAGE.
Nepřímý ELISA (iELISA). Mikrotitrační destička byla potažena ECH-OVA (2 ug/100 ul) a inkubována přes noc při 4 stupních. Destička byla promyta třikrát PBST a dvakrát PBS a bylo přidáno 5 procent PBSM (PBS obsahující 5 procent odstředěného mléka), aby se blokovala nenavázaná místa při 37 stupních po dobu 2 hodin. Poté, co byly destičky promyty PBST a PBS, byly jamky rozděleny do 4 skupin; experimentální skupina, 1 ug celkového proteinu AR/100 μl; pozitivní skupina, králičí anti-OVA protilátka (1:1, 000); negativní skupina, 1 ug hovězího sérového albuminu; a prázdnou skupinu obsahující PBS. Po inkubaci po dobu 1,5 hodiny byly destičky promyty a do pozitivní skupiny bylo přidáno 100 μl/jamku králičího IgG konjugovaného s HRP (1:1,000), bylo přidáno 100 μl/jamka anti-AR (1:1,000) ostatním skupinám. Po inkubaci po dobu 1,5 hodiny bylo na destičky přidáno ředění králičího HRP-konjugovaného IgG (1:5,000). Po inkubaci při 37 stupních po dobu 1 hodiny byly destičky promyty třikrát PBST a dvakrát PBS. Poté byl přidán TMB a inkubován po dobu 10 minut ve tmě při teplotě místnosti a 2 MH2TAK4pro zastavení reakce. Absorbance byla odečítána při vlnové délce 450 nm.
Molekulární dokování. Byla provedena studie molekulárního dokování za účelem zkoumání vazebného režimu sloučeniny ECH k lidskému androgennímu receptoru (AR) pomocí Autodock vina 1.1.2. Trojrozměrná (3D) struktura AR (PDB ID: 2YHD) byla stažena z Protein Data Bank. 3D struktura ECH byla získána pomocí softwaru ChemBioDraw Ultra 14.0 a ChemBio 3D Ultra 14.0. Ke generování vstupních souborů dokování byl použit balíček AutoDockTools 1.5.6. Vyhledávací mřížka AR byla identifikována jako střed x: 36,141, střed y: 8,513 a střed z:
21.304 s rozměry velikost x: 15, velikost y: 15 a velikost z: 15. Hodnota vyčerpání byla nastavena na 20. Pro dokování Vina byly použity výchozí parametry, pokud nebyly uvedeny. Nejlépe hodnocená pozice podle hodnocení Vina docking score byla vybrána a vizuálně analyzována pomocí softwaru PyMOL 1.7.6
Data analýza a statistický metody. Data byla analyzována pomocí statistického softwaru SPSS 19.0 (SPSS Inc., Chicago, IL, USA). Pro srovnání mezi skupinami byla použita jednocestná ANOVA. Byly stanoveny Tukeyho srovnávací testy významných rozdílů mezi skupinami. Výsledky byly vyjádřeny jako průměr ± standardní odchylka (SD) za použití softwaru Graph Pad Prism v.7 (GraphPad Software, Inc, Kalifornie, USA).
Etika schválení a souhlas na účastnit se. Etický souhlas pro tuto studii byl získán od Etického výboru Anyang Institute of Technology.

Echinakosidvcistancheumí léčitnemoc ledvin
Reference
1. Cano, SN, Misra, M. & Ackerman, KE Cvičení, trénink a osa hypotalamus-hypofýza-gonadální osa u mužů a žen.
Přední. Horm. Res.47, 27–43 (2016).
2. Papadopoulos, V. & Miller, WL Role mitochondrií v steroidogenezi.Nejlepší Praxe. Res. Cl. En. 26, 771–790 (2012).
3. Rone, MBet al. Identifikace dynamického mitochondriálního proteinového komplexu, který řídí import cholesterolu, obchodování a metabolismus na steroidní hormon.Mol. Endocrinol. 26, 1868–1882 (2012).
4. Shibari, S., Ylonen, H. & Palme, R. Vylučování a měření kortikosteronu a metabolitů testosteronu u hraboše obecného (Myodes glareolus).Gen. Comp. Endocrinol. 243, 39–50 (2017).
5. O'Hara, L.et al. Signalizace hypofyzárního androgenního receptoru reguluje prolaktin, ale ne gonadotropiny u samců myši.PloS jeden. 10, e0121657 (2015).
6. Amador, AG, Parkening, TA, Beamer, WG, Bartke, A. & Collins, TJ Testikulární LH receptory a hladiny cirkulujícího hormonu ve třech myších modelech pro dědičné choroby (Tfm/y, lit/lit a hyt/hyt).Endocrinol. Exp. 20, 349–58 (1986).
7. Bulldan, A., Dietze, R., Shihan, M. & Scheiner-Bobis, G. Neklasická testosteronová signalizace zprostředkovaná prostřednictvím ZIP9 stimuluje expresi klaudinu a tvorbu těsného spojení v Sertoliho buňkách.Buňka. Signál. 28, 1075–85 (2016).
8. Walker, WH Testosteronová signalizace a regulace spermatogeneze.Spermatogeneze. 1, 116–20 (2011).
9. Cao, C. & Kindscher, K. The Medicinal Chemistry of Echinacea Species (ed. Kindscher, K.) 127–145 (Springer, 2016).
10. Jiang, ZH, Jian, W., Li, XP & Zhang, XY Echinacoside a Cistanchetubulosa (Schenk) R. Wight zmírňují poškození varlat a spermií vyvolané bisfenolem A u potkanů prostřednictvím steroidogenních enzymů regulovaných osou gonád.J. Ethnopharmacol. 193, 321–328 (2016).
11. Chiou, SY, Sung, JM, Huang, PW & Lin, SD Antioxidační, antidiabetické a antihypertenzní vlastnosti extraktu z květu Echinacea purpurea a derivátů kyseliny kofeinové pomocív in vitro modely.J. Med. Jídlo. 20, 171–179 (2017).
12. Ross, SM Echinacea purpura: Patentovaný extrakt z echinacea purpura se ukázal jako bezpečný a účinný při prevenci běžného nachlazení.Holist. Zdravotní sestry. Praxe. 30, 54–57 (2016).
13. Wang, T.et al. Cistanche tubulosaethanolový extrakt zprostředkovává hladiny pohlavních hormonů u potkanů indukcí testikulárních steroidogenních enzymů.
Pharma. Biol.54, 1–7 (2015).
14. Hotaling, JMet al. Demografické a socioekonomické rozdíly mezi muži, kteří hledají hodnocení neplodnosti, a těmi, kteří hledají chirurgickou sterilizaci: z National Survey of Family Growth.BJU. Int. 116, 288–292 (2015).
15. Jodar, M., Solerventura, A. & Oliva, R. Semenová proteomika a mužská neplodnost.J. Proteomika. org/
16. Rahman, MSet al. Bisfenol-A ovlivňuje mužskou plodnost prostřednictvím proteinů souvisejících s plodností ve spermiích.Sci. Rep. 5, 9169 (2015).
17. Xi, W.et al. Účinek perinatální a postnatální expozice bisfenolu A na regulační okruhy v ose hypotalamus-hypofýza-gonáda CD-1 myší.Reprod. Toxicol. 31, 409–17 (2011).
18. Wisniewski, P.et al. Expozice dospělých bisfenolu A (BPA) u potkanů Wistar snižuje kvalitu spermií s narušením osy hypotalamus-hypofýza-varlata.Toxikologie. 329, 1–9 (2015).
19. Wang, T., Zhang, X. & Xie, W.Cistanche deserticolaYC Ma, "Pouštní ženšen": recenze.Dopoledne. J. Brada. Med. 40, 1123–1141 (2012).
20. Li, Y., Zhou, G., Peng, Y., Tu, P. & Li, X. Screening a identifikace tří typických metabolitů fenylethanoidových glykosidů z Cistanches Herba lidskými střevními bakteriemi pomocí UPLC/Q-TOF-MS .J. Pharmaceut Biom. 118, 167–176 (2016).
21. Matsumoto, AM Andropauza klinické důsledky poklesu hladiny testosteronu v séru se stárnutím u mužů.J. Gerontol. A. Biol. Sci. Med. Sci. 57, M76–M99 (2002).
22. Aluja, A.et al. Interakce mezi impulzivitou, testosteronem, globulinem vázajícím pohlavní hormony a délkou repetice genu CAG androgenního receptoru.Physiol. Chovej se. 147, 91–96 (2015).
23. Walters, KA, Simanainen, U. & Handelsman, DJ Molekulární pohledy na působení androgenů v mužské a ženské reprodukční funkci z modelů vyřazení androgenních receptorů.Hučení. Reprod. Aktualizace. 16, 543–558 (2010).
24. Sar, M., Lubahn, DB, French, FS & Wilson, EM Imunohistochemická lokalizace androgenního receptoru v krysích a lidských tkáních.Endokrinologie. 127, 3180–3186 (1990).
25. Liang, YQet al. Účinky progesteronu na profily transkripční exprese genů spojených s osou hypotalamus-hypofýza-gonadální a hypotalamo-hypofýza-nadledviny během raného vývoje zebřičky (Daniorerio).Chemosféra. 128, 199–206 (2015).
26. O'Hara, L. & Smith, LB Role androgenního receptoru ve spermatogenezi a neplodnosti.Nejlepší. Praxe. Res. Cl. En. 29, 595–605 (2015).
27. Lindzey, J., Kumar, MV, Grossman, M., Young, C. & Tindall, DI Molekulární mechanismy působení androgenů.Vitam. Horm. 49, 383–432 (1994).
28. Holdcraft, RW & Braun, RE Funkce androgenního receptoru je vyžadována v Sertoliho buňkách pro terminální diferenciaci haploidních spermatid.Rozvoj. 131, 459–467 (2004).
29. Holdcraft, RW & Braun, RE Hormonální regulace spermatogeneze.Int. J. Androl. 27, 335–342 (2004).
30. Luu-The, V. Hodnocení steroidogeneze a funkcí steroidogenních enzymů.J. Steroidní. Biochem. Mol. Biol. 137, 176–182 (2013).
31. Ye, L., Su, ZL & Ge, RS Inhibitory biosyntetických a metabolických aktivačních enzymů testosteronu.Molekuly 16, 9983–10001 (2011).
32. Khan, D. & Ahmed, SA Epigenetická regulace nelymfoidních buněk Bisfenolem A, modelovým endokrinním disruptorem: potenciální důsledky pro imunoregulaci.Přední. Endocrinol. 6, 91 (2015).
33. Mohamad, NV, Soelaiman, IN & Chin, KY Stručný přehled testosteronu a zdraví kostí.Clin. Interv Stárnutí. 11, 1317 (2016).
34. Akerman, J. Kovac, JR & Lipshultz, LI Terapie testosteronem zlepšuje pohodu a psychické zdraví.Curr. Opin. Urology. (2017).
Poděkování
Tato práce byla podpořena Programem vědeckých a technologických inovačních talentů na univerzitách v provincii Henan (18HASTIT035) HASTIE, Stavebním programem Výzkumného ústavu moderní biologické technologie Technologického institutu v Anyangu a Programem klíčových staveb (2015SD0018) základny mezinárodní spolupráce v roce S&T, provincie Shaanxi, Čína.
Autorské příspěvky
Zhi-hui Jiang a Bo Zhou navrhli výzkum, provedli výzkum, analyzovali data a napsali článek; Xin-ping Li a Gordon M. Kirby navrhli výzkum a analyzovali data; Xiao-Ying Zhang navrhl výzkum.
dodatečné informace
Konkurenční zájmy:Autoři neuvádějí žádné konkurenční zájmy.
vydavatelství Poznámka: Springer Nature zůstává neutrální, pokud jde o jurisdikční nároky v publikovaných mapách a institucionálních afilacích.