

Část 4 Studie ukázaly, že autofagie hraje důležitou roli v regulaci buněčné depozice LD
Apr 25, 2022
Prosím kontaktujteoscar.xiao@wecistanche.comPro více informací
2.14. Test laktátdehydrogenázy (LDH).
Podle instrukcí výrobce byly buňky naneseny na 96-jamkovou destičku v množství 5000 buněk/jamku a bylo odebráno kultivační médium pro měření hladin LDH pomocí testovací soupravy (Nanjing Jiancheng Bioengineering Institute). Poté byla detekována absorbance vzorků pomocí Multiskan Spectrum (Thermo Fisher Scientific) při 450 nm.
2.15. BODIPY493/503, BODIPY 581/591 C11 a MitoTracker tmavě červené barvení
Živé buňky byly promyty PBS a inkubovány s 2 ug/ml BOD-IPY 493/503 (InvitrogenTM, Cat D3922) nebo BODIPY 581/591 C11 (BD-C11))(2).{15}} μM, InvitrogenTM, Cat D3861)v PBS po dobu 15 minut při 37 stupních Pro barvení MitoTracker Deep Red byly živé buňky inkubovány s 0,5 ug/ml MitoTracker Deep Red (InvitrogenTM, Cat M22426) v PBS po dobu 30 minut. byly dvakrát promyty v PBS a fixovány v 3,5% PFA po dobu 10 minut, poté následovalo promytí a kontrastní barvení s Hoechst 3342 (Sigma, Cat B2261) po dobu 10 minut před tím, než byly pokryty na sklíčka pro zobrazení.kolik cistanche vzítSnímky byly pozorovány a fotografie byly zachyceny fluorescenční mikroskopií (Olympus, Tokio, Japonsko).

2.16 Barvení Hoechst a PI
Buňky byly obarveny Hoechst 33,342 (1 ul zředěný v 5 0 0 ul PBS, Sigma, Cat B2261) a (nebo) PI (0,1 ul zředěný v 500 ul PBS, Solarbio, (cistanche spánek) CA1020 a) po dobu 10 min. poté fixovány a pozorovány fluorescenční mikroskopií (Olympus, Tokio, Japonsko).
2.17. Průtoková cytometrie
Buňky byly štěpeny a promyty D-hank's a poté obarveny Annexinem V-FITC(5 ul zředěným v 500 ul PBS)/PI (0,1 ul zředěným v 500 ul PBS) apoptózní soupravou (CA1020, Solarbio, Beijing, Chian ) podle protokolu výrobce. Poté byly apoptotické buňky analyzovány pomocí průtokové cytometrie (guava easyCyterM 8, Millipore, USA). Měření mitochondriálního ROS a mitochondriálního membránového potenciálu byla provedena podle publikace 【12】. Buňky SH-SY5Y byly obarveny MitoSOX (2,5 μM, Invitrogen, USA) nebo JC1 (10 ug/ml, T-3168, Invitrogen, USA) při 37 stupních po dobu 30 minut. Po dvojnásobném promytí PBS byly buňky resuspendovány ve studeném PBS obsahujícím 1 procento FBS pro analýzu průtokovou cytometrií. Data byla analyzována pomocí softwaru FCS Express (Guava Easy CyterM8, Millipore, Hayward, CA, USA).
2.18. Respirační testy mořského koníka
Mitochondriální respirační funkce v živých buňkách SH-SY5Y byla měřena pomocí analyzátoru extracelulárního toku Seahorse (XFe96) (Agi-lent, Santa Clara, USA) prostřednictvím změn v rychlosti spotřeby kyslíku (OCR). Buňky SH-SY5Y nasazené v množství 3 × 10³ buněk/jamka se nechaly přilnout k destičkám pro buněčné kultury Seahorse a dosáhly přibližně 80% konfluence v době experimentu. (cistanche čaj) Následující den byly buňky předem ošetřeny Ka a poté vystaveno MPP* dalších 24 hodin. OCR byla detekována za bazálních podmínek následovaných postupným přidáním 1 μM oligomycinu, 1 μM FCCP, stejně jako 1 μM rotenonu a antimycinu A.
Cistanche může zlepšit imunitu
2.19. Statistická analýza
Data byla prezentována jako průměr ± SEM. Významnost rozdílu byla stanovena Studentovým t-testem, dvoucestnou analýzou rozptylu nebo jednosměrnou analýzou rozptylu (ANOVA) následovanou Tukeyho post hoc testem. Rozdíl byl považován za významný u P<>
3. Výsledky
Výsledek1. Ka obnovuje motorickou dysfunkci a zvyšuje hladiny dopaminu ve striatu u myší s modelem MPTP/p PD
Ke zkoumání neuroprotektivního účinku patogeneze Kaon PD byl 4-měsíčním samcům myší C57BL/6 injikován neurotoxin MPTP k vytvoření modelu MPTP/p PD a byli léčeni Ka (obr. la). Po modelové indukci byly testy na rotarodu a pólový test použity k vyhodnocení motorického a behaviorálního výkonu myší v různých skupinách. Jak je ukázáno, doba výkonu rotarodu byla u myší ošetřených MPTP výrazně snížena a tomuto efektu zabránil Ka (obr. 1b). (přínosy cistanche tubulosa) Ka také obnovila deficity chování vyvolané MPTP, jak naznačují zkrácení doby otáčení a celkového času v testu tyčí (obr. 1c a d), aniž by to ovlivnilo tělesnou hmotnost myší (obr. le). Kromě toho analýza HPLC ukázala, že hladina dopaminu ve striatu byla významně snížena u myší infikovaných MPTP/p a tato hladina byla obnovena léčbou Ka (obr. 1f). (extrakt cistanche tubulosa) Léčba Ka také zmírnila MPTP/ p-indukované snížení hladin kyseliny dihydroxyfenyloctové (DOPAC, metabolit dopaminu) ve striatu (obr. 1g).superman byliny cistancheTyto výsledky naznačují, že Ka obnovuje motorickou dysfunkci a zvyšuje hladiny dopaminu ve striatu u MPTP-indukovaných PD myší.
Výsledek 2. Ka zmírňuje ztrátu DA neuronů u SNpc myší s modelem MPTP/p PD
Dále, abychom dále vyhodnotili neuroprotektivní účinek Kaon MPTP/p-indukovaného poškození DA neuronů, zkoumali jsme neurony tyrosinhydroxylázy (TH) v myších SNpc imunobarvením. Jak je ukázáno na obr. 2a a b, MPTP/p indukoval významné snížení počtu TH neuronů, které bylo zmírněno působením Ka. Dále, stereologické počty celkových neuronů v SNpc, jak je definoval Nissl
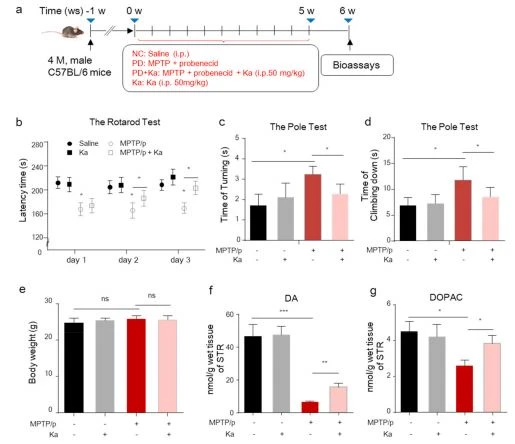
Obr. 1. Léčba Ka zmírňuje motorickou dysfunkci a zvyšuje hladiny dopaminu ve striatu u myší s modelem MPTP/p PD.
(a) Schematický diagram experimentálního designu. (cistanche tubulosa reddit) (b) Čas na tyči byl měřen pro test rotarod ve třech po sobě jdoucích dnech. (cd) Pro test na tyči byl zaznamenán čas otočení (čas otočení) a sestup tyče (čas lezení). (e) Tělesná hmotnost myší byla změřena na konci studie. (fg) Dopamin (DA) a kyselina dihydroxyfenyloctová (DOPAC) ve striatu byly analyzovány vysokoúčinnou kapalinovou chromatografií. Data jsou vyjádřena jako průměr ± SEM.n=9-10 pro každou skupinu v (b,c,d);n=6-8 pro každou skupinu v (f,g).ns, nevýznamné,* P<><><0.001, by="" one-way="" anova="" followed="" by="" tukey's="" post="" hoc="" test.="" mptp,1-methyl-4-phenyl-1,2,3,6-tetrahydropyridine;="" ka,kaempferol.="" staining,="" verified="" that="" the="" loss="" of="" th+="" cells="" reflected="" cellular="" death="" but="" not="" the="" downregulation="" of="" th="" expression="" and="" showed="" that="" ka="" treatment="" restored="" the="" decrease="" in="" the="" number="" of="" nissl-positive="" neurons="" in="" the="" snpc="" of="" mptp-treated="" mice="" from="" 43.3%="" to="" 25.4%="" (fig.="" 2c="" and="" d).in="" addition,="">výhody bioflavonoidůKa významně zlepšila MPTP-indukované snížení exprese TH a DAT proteinu, jak bylo měřeno Western blotováním (obr. 2e-g). Tento důkaz potvrzuje neuroprotektivní účinek Kaonu na myším modelu PD.
Výsledek 3. Ka snižuje akumulaci LD vakuol a oxidativní stres v SNpc myší léčených MPTP/p
Stále více důkazů prokázalo zapojení LD do NDD [10], konzistentně naše předchozí práce identifikovala zvýšené LD v SNpc myší s PD indukovanou MPTP [12]. LD lze snadno identifikovat a vykazují kulaté struktury s nízkou hustotou s homogenními amorfní obsah [28]. Normálně mohou být LD degradovány autofagií, aby se zabránilo akumulaci [29].koupit cistancheAby se zjistilo, zda Ka může regulovat LD u PD, akumulace LD byla analyzována transmisní elektronovou mikroskopií (TEM) v SNpc kontrolních, MPTP/p a MPTP/p + Ka myší. Jak bylo ukázáno v naší předchozí práci [12], počet a velikost LD byly

zvýšené u MPTP/p myší ve srovnání s kontrolami ošetřenými fyziologickým roztokem (obr. 3a a b) a byly významně sníženy u myší ošetřených Ka (obr. 3c-e). Navíc u myší léčených Ka byly LD častěji pozorovány také poblíž, uzavřeny nebo degradovány autolysozomy, které byly definovány jako elektron-denzní granule lipofuscinu. Další histologické barvení TH neuronů pomocí BODIPY, barviva, které specificky označuje neutrální lipidy a běžně se používá k detekci LD [30], ukázalo, že jak počet, tak velikost BODIPY plus LD v SNpc byly vyšší u PD myší než u kontrol, a byly významně sníženy ošetřením Ka (obr. 3f-h).
Pokud nelze LD degradovat včas, nahromaděné LD mohou podléhat peroxidaci a přispívat k mitochondriálnímu stresu zprostředkovanému ROS [4],vzdálenostkterý zesiluje neurotoxicitu a progresi onemocnění. Proto jsme dále zkoumali expresní profily genů spojených s ochranou proti toxicitě volných FA (Gpx8), neutralizujícími oxidačními druhy, superoxidovými radikály (Sod3) a peroxidem vodíku (Cat) a metabolismem FA (Acsbg1 a Dbi), jak bylo uvedeno [31]. , z nichž všechny byly nápadně sníženy u SNpc myší léčených MPTP ve srovnání s kontrolami a tyto účinky byly zlepšeny u myší s PD léčenými Ka (obr. 3i). Podobně MPTP/p také zvýšil hladiny exprese mRNA

Obr.2. Ka zlepšuje ztrátu DA neuronů u SNpc myší s modelem MPTP/p PD.
(ab) Mikrofotografie tyrosinhydroxylázy (TH)-pozitivních neuronů (a) a stereologické počty TH-pozitivních neuronů v substantia nigra pars compacta (SNpc) (b). Měřítko je uvedeno. (cd) Mikrofotografie buněk pozitivních na kresylovou violeť (c) a stereologické počty buněk pozitivních na kresylovou violeť v SNpc (d). Měřítko, 120 um. (např.) Western blot analýza exprese TH a DAT proteinu v SNpc (e) a kvantitativní analýza (f,g). Kvantifikovaná data jsou normalizována na kontrolní skupinu s fyziologickým roztokem. Data jsou vyjádřena jako průměr ± SEM.*P<><0.01, by="" one-way="" anova="" followed="" by="" tukey's="" post="" hoc="" test.n="4-5" for="" each="" group.="" ve,="" vehicle,="" ka,="" kaempferol;="" mptp,1-methyl-4-phenyl-1,2,3,6-tetrahydroloyridine..="" (for="" interpretation="" of="" the="" references="" to="" color="" in="" this="" figure="" legend,="" the="" reader="" is="" referred="" to="" the="" web="" version="" of="" this="" article.="" of="" nadph="" oxidase="" subunits="" such="" as="" nox1,="" nox2,="" and="" nox4="" in="" the="" snpc="" of="" mptp/p="" mice,="" which="" were="" further="" blunted="" by="" ka="" treatment="" (fig.="" 3j).="" taken="" together,="" these="" data="" suggest="" that="" ka="" alleviates="" mptp/p-induced="" ld="" accumulation,="" peroxidation,="" and="" ros-mediated="">
Výsledek 4. Ka chrání buňky SH-SY5Y proti apoptóze indukované MPP plus
MPP, aktivní metabolit MPTP, inhibuje enzymy mitochondriálního komplexu a způsobuje buněčnou smrt, která je přímo spojena s PD [32]. Dále jsme zkoumali, zda Ka může zabránit MPPt-indukované neuronální apoptóze in vitro. Jak je znázorněno na obr. 4a a b, MPPt (40 uM, 24 h) indukoval uvolňování LDH z buněk SH-SY5Y a Ka(30 a 60 uM) významně zeslaboval uvolňování LDH bez ovlivnění přežití buněk (obr. 4a). Protože Ka vyvolal podstatný ochranný účinek při koncentraci 30 μM (obr. 4b), tuto koncentraci jsme použili v následujících experimentech. Výsledky barvení Hoechst/PI také ukázaly, že Ka významně snížilo procento buněk s MPPt-indukovanou kondenzací chromatinu (obr. 4c a d) a buněčnou apoptózou, jak dokazuje zvýšená intenzita fluorescence Hoechst (obr. 4c) a procento Buňky obarvené Hoechst/PI (Hoechst plus /PI') (obr. 4e). Také, jak bylo detekováno průtokovou cytometrií, MPP plus indukovala buněčnou apoptózu, doloženou zvýšeným procentem buněk barvených Annexinem V (AV/PI a AV plus/PI plus), byla chráněna Ka (obr. 4f a g). Kromě toho Ka výrazně zvrátil MPP-indukované změny v expresi proteinů souvisejících s apoptózou, o čemž svědčí upregulace Bcl-2, downregulace Bax (obr. 4hi-j) a snížené štěpení kaspázy-3 (obr. 4h, k). Tato data naznačují, že Ka může zrušit škodlivé účinky MPPt na přežití buněk.
Výsledek 5. Ka potlačuje akumulaci LD indukovanou MPPt a peroxidaci lipidů, které zprostředkovávají mitochondriální poškození v buňkách SH-SY5Y
Nedávné studie ukázaly, že neočekávaná akumulace LD může vést ke zvýšenému stresu zprostředkovanému peroxidací lipidů a urychlit mitochondriální dysfunkci, která podporuje neurodegeneraci [10]. Naše předchozí práce také ukázala, že zvýšené LD v SNpc byly spojeny s patologií PD u myší [12]. Abychom prozkoumali, zda ochranný účinek Ka souvisel s akumulací LD in vitro, provedli jsme nejprve LD-specifické barvení v buňkách SH-SY5Y pomocí BODIPY 493/503 a pozorovali jsme zvýšenou depozici LD (zvýšené hladiny neutrálních lipidů)
Výsledek 6. Ka podporuje autofagii a snižuje produkci mtROS v buňkách SH-SY5Y ošetřených MPP plus
Normálně jsou LD dodávány do lysozomů autofagií a mohou být rozloženy na FA, aby se zabránilo peroxidaci. Důkazy však naznačují, že autofagie je narušena, což hraje klíčovou roli u PD [2]. Když autofagie zahrnuje porcování LD, které se má rozložit v lysozomech (obr. 6a), tento proces se specificky nazývá lipofagie [2]. Abychom zjistili, zda se autofagie podílí na neuroprotektivním účinku Ka, zkoumali jsme hladiny proteinů spojených s autofagií. Jak je znázorněno na obr. 6b-d, v kultivovaných buňkách SH-SY5Y byla hladina lehkého řetězce 3 (LC3)-II asociovaného s mikrotubuly výrazně snížena, zatímco exprese p62 byla výrazně zvýšena v buňkách ošetřených MPP plus, jak bylo měřeno imunoblotováním, a tento účinek byl významně zvrácen Ka. Dále jsme zkoumali změny v autofagii imunobarvením na LC3. Aby se umožnilo akumulaci autofagozomů v buňkách, byl přidán bafilomycin, aby se zabránilo fúzi autofagozomů s lysozomy. Jak je ukázáno, zvýšený počet LC3b puncta byl detekován v buňkách ošetřených MPP*, což ukazuje na zhoršenou autofagickou degradaci, a tento účinek byl také zvrácen pomocí Ka (obr. 6e a f). Tyto výsledky naznačují, že LD v buňkách SH-SY5Y jsou mobilizovány autofagií pro případné odstranění a že Ka může podporovat autofagii, aby se snížila akumulace oxidovaných lipidů. Zvýšená peroxidace lipidů může zhoršit poškození mitochondrií zvýšením mitochondriálního oxidačního stresu [4]. Léčba Ka navíc významně snížila robustní generování mtROS, jak bylo určeno barvením MitoSOX (obr. 6g a h), a snížilo počet dysfunkčních mitochondrií, jak bylo určeno značkami specifickými pro mitochondrie pro rozlišení dýchání (MitoTracker tmavě červená) a celkového ( MitoTracker zelená) mitochondrie (obr. 6i a j). Kromě toho, abychom měli přímý pohled na mitochondriální změny, jsme dále detekovali rychlost spotřeby kyslíku (OCR) pomocí analyzátoru Seahorse XF. Jak je znázorněno na obr. 6k, respirace mitochondrií byla u buněk ošetřených MPPt snížena, zatímco léčba Ka zjevně zvrátila toto poškození způsobené MPP plus (obr. 6k).
Výsledek7. Inhibice autofagie obrací in vitro supresivní účinek akumulace Kaon LD, mitochondriální dysfunkce a poškození DA neuronů
Ke zkoumání, zda je autofagie jedním z hlavních mechanismů, kterými Ka zprostředkovává DA neuroprotekci, byl použit inhibitor autofagie 3-MA. Zjistili jsme, že inhibiční účinky Ka na poranění vyvolané MPP#, včetně snížené akumulace LD (obr. 7a a b), snížené produkce mtROS (obr. 7c a d) a zmírnění mitochondriální dysfunkce (obr. 7e a f) v SH-SY5Y buňky byly významně blokovány 3-MA. Protože oxidace LD a mitochondriální dysfunkce jsou úzce spojeny se smrtí neuronů DA, dále jsme zkoumali primárně kultivované neurony DA. Ošetřili jsme kultivované mezencefalon TH plus neurony s Ka a/nebo MPPf a kvantifikovali jsme počet a délku TH plus neuronových procesů imunobarvením. Morfologická analýza odhalila, že počet a délka neuronálních procesů byly výrazně sníženy MPP plus a chráněny Ka a tato ochrana byla dále obrácena 3-MA (obr. 7g-i). Tato data naznačují, že Ka zmírňuje poškození DA neuronů podporou autofagie.
Výsledek 8. Umlčení Atg5 zrušilo Ka-zprostředkovanou prevenci ztráty neuronů in vivo
Abychom dále potvrdili, že Ka chrání před MPTP/p-indukovaným TH plus ztrátou neuronů způsobem závislým na autofagii, umlčeli jsme Atg5 mikroinjekcí adeno-asociovaného viru (AAV) exprimujícího dříve charakterizovanou shRNA proti Atg5 do bilaterálního mezencefalu (obr. .8a), jak bylo popsáno dříve [25]. V předběžných experimentech jsme pozorovali, že transfekce Atg5 shRNA po dobu 2 týdnů dosáhla dostatečné exprese GFP v TH plus neuronech (obr. 8b) a inhibovala expresi ATG5 v SNpc injikovaných myší (obr. 8c). Zjistili jsme, že Atg5-knockdown zvrátil neuroprotektivní účinek Ka, jak dokazuje upregulovaná proteinová exprese TH (obr. 8d a e) a zvýšený počet TH plus neuronů (obr. 8f a g). Tato data dále podporují příspěvek autofagie k ochrannému účinku Ka u PD myší. Závěrem jsme potvrdili, že Ka chrání před poškozením vyvolaným MPTP/p snížením oxidace LD a mitochondriální dysfunkce podporou autofagie.
4. Diskuze
Tato studie ukázala, že přirozená malá molekula Ka byla klíčovým faktorem, kterým by autofagická signalizace mohla inhibovat oxidační toxicitu lipidů. Naše výsledky ukázaly, že autofagická dráha je klíčovou regulační smyčkou, jejímž prostřednictvím Ka zmírňuje peroxidaci LD a následné mitochondriální poškození, a zaměřily se na roli autofagií regulované toxicity LD při zmírňování mitochondriálního poškození při předcházení neurodegeneraci v důsledku nadměrného oxidačního stresu (obr. 9).
LD jsou intracelulární místa ukládání neutrálních lipidů [5] a jsou rozhodující pro metabolismus lipidů a energetickou homeostázu, zatímco dysfunkce LD je spojována s mnoha onemocněními [16]. Hromadné důkazy naznačují, že role LD v biologii a patologii jsou podstatně širší, než se dříve myslelo. V CNS důkazy ukázaly, že zvýšené LD v neuronech a gliích se podílejí na neurodegenerativní patologii [10,36]. Podrobně byly LD detekovány jak v axonech neuronů Aplysia kultivovaných in vitro [37], tak v řezech mozku z Modely Huntingtonovy choroby [38]. Kromě toho se ukázalo, že neurony jsou zvláště citlivé na toxicitu lipidů a akumulace LD, které nelze odstranit včas, vede k urychlené peroxidaci LD a může vést k neurodegeneraci [17].
Hromadění lipidů v hyperaktivních neuronech je toxické nejen kvůli náchylnosti těchto lipidů k peroxidaci. Kromě toho může obsah přebytečných LD vstoupit do neoxidačních metabolických drah a spustit nadměrnou produkci ceramidu, který je toxický pro buňky [39]. Nedávné studie také ukázaly, že v LD-defektních buňkách mohou být FA přeměněny na acylkarnitiny, které pak způsobují mitochondriální dysfunkci a produkci ROS [40]. Tyto procesy budou mít pravděpodobně specifické a hluboké důsledky v hyperaktivních neuronech, protože dysfunkční mitochondrie ohrožují kapacitu spotřeby FA a produkce mtROS dále způsobuje peroxidaci membránových lipidů.
Homeostáza LD by tedy měla být dobře kontrolována v neuronech, což je rozhodující pro zamezení toxicitě a v konečném důsledku pro udržení zdraví mozku. V této studii jsme zjistili, že malá přirozená molekula Ka inhibuje neuronální toxicitu LD, která se projevuje jako zvýšená akumulace LD, zvýšená peroxidace lipidů a upregulovaná genová exprese související s toxicitou lipidů v buňkách SH-SY5Y uražených MPP#. Ještě důležitější je, že jsme také ukázali, že léčba Ka snižuje 45]. V této studii jsme pozorovali defektní autofagii/lipofágii v neuronových buňkách poškozených MPPt, včetně snížených hladin LC3-II a zvýšené exprese p62, a zvýšený počet LC3B puncta uložených v buňkách. Defektní lipofagie u poraněných buněk SH-SY5Y byla zvrácena ošetřením Ka. V důsledku toho Ka snížil akumulaci oxidovaných LD, poškozených mitochondrií a tvorbu mtROS v buňkách SH-SY5Y ošetřených MPP#. Důležité je, že inhibice autofagie pomocí 3-MA zrušila Ka-zprostředkovanou eliminaci oxidovaných LD a poškozených mitochondrií a zmírnění poškození DA neuronů in vitro. Kromě toho inhibice autofagie knockdownem Atg5 in vivo zvrátila ochranné účinky neuronální degenerace Kaon DA v myším modelu PD indukovaném MPTP. Souhrnně tato zjištění naznačují, že Ka inhibuje mitochondriální poškození související s toxicitou LD podporou autofagie v experimentálním modelu PD.
Hromadné důkazy ukazují, že zvýšená tvorba mtROS je primární charakteristikou neuronů s vysokou aktivitou a byla pozorována u mnoha NDD, včetně PD [46]. Zprávy o tom, zda je ROS příčinou nebo důsledkem tvorby LD, jsou rozporuplné [47,48]. Je zajímavé, že naše výsledky in vitro ukázaly, že farmakologická inhibice peroxidace LD o-tokoferolem zabránila generování mtROS a abnormalitám potenciálu mitochondriální membrány a zmírnila mitochondriální redukce, jak dokazuje barvení Tomm20 v buňkách SH-SY5Y, což podporuje myšlenku, že peroxidace LD hraje roli kauzální roli v mitochondriální dysfunkci indukované MPP a tvorbě mtROS. Je však možné, že zvýšené ROS zpočátku urychlují tvorbu LD a následně LD indukují další tvorbu ROS a zhoršují intracelulární a mitochondriální hladiny ROS.
V této studii jsme ukázali, že myši s MPTP-indukovanou PD měly vysoké hladiny akumulace LD, což bylo doprovázeno zvýšenou ztrátou DA neuronů, zrychleným stresem zprostředkovaným ROS a behaviorálními deficity. Léčba Ka zabránila toxicitě LD in vitro a zlepšila ztrátu neuronů DA a deficity chování v modelu myší PD a tyto účinky byly závislé na autofagii. Proto je rozumné dojít k závěru, že Ka podporuje autofagii a tato zesílená autofagie snižuje oxidovanou akumulaci LD, snižuje produkci mtROS a zmírňuje mitochondriální poškození v DA neuronech, což přispívá k inhibici toxicity LD, a tím zmírňuje patologii PD (obr. 9).
Financování
Tento výzkum byl podpořen granty od National Natural Science Foundation of China (č. 81903587), projekt financovaný China Postdoctoral Science Foundation (č. 2019M661807), Natural Science Foundation of Jiangsu Province (č. BK20190120) a Open Project of Chinese Materia Medica First Class Discipline of Nanjing University of Chinese Medicine (č. 2020YLXK006) a Drug Innovation Major Project (č. 2018ZX09711001-003-007).
Tento článek je převzat z Redox Biology 41 (2021) 101911


