Část 2: Účinek akteosidu jako buněčného chrániče k produkci klonovaného psa
Mar 05, 2022
Ji Hye Lee1☯, Ju Lan Chun1☯, Keun Jung Kim1, Eun Young Kim1, Dong-hee Kim1, Bo Myeong Lee1, Kil Woo Han1, Kang-Sun Park1, Kyung-Bon Lee2, Min Kyu Kim1*
Kontakt:joanna.jia@wecistanche.com
Pls klikněte zde pro část 1
Pls klikněte sem pro část 3
Akteosidvcistanchemá hodnězdravívýhod
Statistická analýza
Data byla analyzována pomocí statistik IBM SPSS (SPSS Inc., Chicago, IL USA) pomocí jednocestné ANOVA a Tukeyho poctivě signifikantního rozdílového testu. Rozdíly byly považovány za statisticky významné, když P-hodnota byla menší než 0,05.
Výsledek
Vliv akteosidu na synchronizaci buněčného cyklu
Účinekakteosidna synchronizaci buněčného cyklu byla zkoumána pomocí fluorescenčně aktivovaného třídění buněk (FACS) (tabulka 1). Psí fetální fibroblasty byly ošetřeny různými koncentracemiakteosid(10, 30, 50 μM) po různé doby trvání (24, 48, 72 h) a buňky byly rozděleny do stádia G0/G1, stádia S a stádia G2/M pomocí FACS. Výsledky FACS byly porovnány s výsledky buněk synchronizovaných sérovým hladověním a kontaktní inhibicí. Sérové hladovění mělo za následek nejvyšší míru synchronizace buněčného cyklu (88,2 procenta) ve stadiu G0/G1 ve srovnání s kontaktní inhibicí (84,6 procenta) aakteosidléčba (80,8–84,5 procenta).Akteosidošetření po dobu 24 hodin vyvolalo synchronizaci buněčného cyklu G0/G1 s nejnižší účinností (80,8, 81,1 a 82,0 procent).Akteosidbyl nejúčinnější při indukci synchronizace buněčného cyklu G0/G1 při koncentraci 30 μM a trvání léčby 48 hodin (84,5 procenta). Mezi koncentracemi a trváním však nebyl žádný významný rozdílakteosidléčba při indukci synchronizace G1/G0 buněčného cyklu. Celkově,akteosidléčba neprokázala žádný významný rozdíl ve srovnání se sérovým hladověním a kontaktní inhibicí, pokud jde o synchronizaci buněčného cyklu G{{0}}/G1. Mezi těmito třemi skupinami také nebyl žádný rozdíl v synchronizaci buněčného cyklu ve fázi S. Kromě toho byl podíl buněk zastavených ve stádiu G2/M podobný jako podíl buněk zastavených ve stádiu G0/G1.
Tabulka 1. Vliv kontaktní inhibice, sérového hladovění aakteosidléčba synchronizace buněčného cyklu u psích fetálních fibroblastů.


Obr. 1. Hladiny ROS ve psích fetálních fibroblastech. Synchronizace buněčného cyklu (A) kontaktní inhibicí, (B) sérovým hladověním a (C) 30 μM působením akteosidů po dobu 48 hodin. Histogramy ukazují hladiny ROS detekované ve psích fetálních fibroblastech.
Účinek akteosidu na ROS a apoptózu
Účinekakteosidna ROS byla stanovena pomocí FACS s použitím karboxy-H2DCFDA, indikátoru oxidačního stresu, který se aktivuje v buňkách, když esterázy odstraňují acetátové skupiny mezi buňkami (obr. 1). ROS byla detekována v nižších hladinách v buňkách ošetřených akteosidy než v buňkách synchronizovaných sérovým hladověním nebo kontaktní inhibicí. Hladina ROS byla významně nižší ve skupině léčené akteosidy (42,8 procent) než ve skupině s kontaktní inhibicí a sérovým hladověním (54,3 a 99,5 procent, v tomto pořadí) (tabulka 2).
Abychom pochopili účinekakteosidna přežití a smrt buněk byla zkoumána apoptóza v buňkách po indukci synchronizace buněčného cyklu. Míra přežití buněk ošetřených akteosidy (94,8 ± 1,2 procenta) byla významně vyšší než u skupin s kontaktní inhibicí a u skupin s hladověním v séru (87,3 ± 0,5 procenta) (obr. 2D). Rychlosti apoptózy ve skupině s hladověním v séru
(52,1 ± 5,3 procenta) byly významně vyšší než ve skupinách s kontaktní inhibicí a akteosidy (obr. 2E). Apoptóza pozorovaná ve skupině s kontaktní inhibicí byla 10,6 procenta, což bylo také významně vyšší než ve skupině léčené akteosidy (4,2 procenta) (obr. 2E). Kromě toho bylo v buňkách ošetřených akteosidy zjištěno méně nekrózy ve srovnání s nekrózou ve skupině s kontaktní inhibicí (obr. 2F).

Cistancheakteosid deserticola může zvýšitimunitaa snížitapoptóza
Vliv akteosidu na in vitro vývoj psích embryí pro přenos jádra
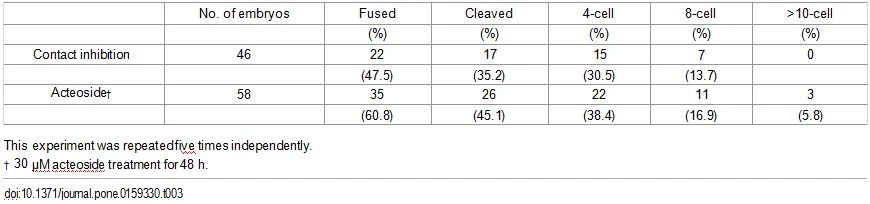
Aby se prozkoumal účinek akteosidu na vývoj embryí SCNT, byly buňky dárce jádra přeneseny do psích enukleovaných oocytů po synchronizaci buněčného cykluakteosid. Jak je uvedeno v tabulce 3, nebyly zjištěny žádné významné rozdíly v raném vývoji embrya od jádra
Tabulka 2. Kvantifikace ROS


Obr. 2. Rychlosti buněčného přežití, apoptózy a nekrózy psích fetálních fibroblastů. Apoptotické buňky v (A) kontaktní inhibici, (B) sérovém hladovění a (C) 30 μMakteosidléčba po dobu 48 hodin byla stanovena pomocí FACS; Kvantitativní analýza výsledků FACS přežití (D) buněk, (E) apoptózy a (F) nekrózy. Tento experiment byl opakován čtyřikrát nezávisle na sobě. (P<>
dárcovských buněk s různými metodami synchronizace buněčného cyklu buď kontaktní inhibicí nebo ošetřením akteosidy. Po fázi 10-buněčného embrya se však vyvinula pouze psí embrya SCNT vytvořená pomocí jaderných dárcovských buněk synchronizovaných ve fázi G0/G1 s akteosidem.
Produkce klonovaného psa pomocí buněk kultivovaných sakteosid
Padesát sedm klonovaných psích embryí produkovaných pomocí kontaktně inhibovaných dárcovských buněk bylo chirurgicky přeneseno do vejcovodů 6 příjemců. Žádný z 6 příjemců neprodukoval potomky
Tabulka 3. In vitro vývoj psích embryí pro přenos jádra.
Tabulka 4. Produkce klonovaného psa pomocí SCNT.
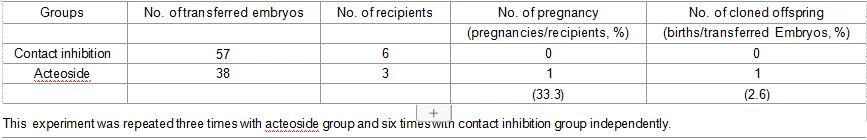
nebo dokonce otěhotněla. 38 klonovaných psích embryí produkovaných z dárcovských buněk ošetřených akteosidy bylo také chirurgicky přeneseno do vejcovodů 3 příjemců. Březost byla potvrzena u jedné ze tří náhradních matek, která nakonec porodila císařským řezem zdravé štěně o hmotnosti 354 g (tabulka 4 a obr. 3). Pro určení původu genomu byla provedena mikrosatelitní amplifikace s geny klonovaného psa. Mikrosatelity jsou krátké tandemově opakované sekvence používané v genomových screeningech pro sledování dědičnosti a vazebné analýzy v rodinách. K identifikaci původu genomu u klonovaného psa bylo použito sedm mikrosatelitních markerů (tabulka 5). Klonovaný pes a donorové buňky použité ke klonování psa měly stejné mikrosatelitní markery, zatímco dárce oocytů a náhradník sdíleli pouze částečné alely (tabulka 5). V testu mateřského původu měli klonovaný pes a oocyt příjemce identické sekvence mitochondriální DNA (mtDNA), což ukazuje, že mtDNA klonovaného psa byla odvozena od dárce oocytů (tabulka 6).

akteosidv cistanche
Diskuse
Synchronizace buněčného cyklu dárce je důležitým faktorem pro zlepšení účinnosti SCNT [43]. Rychlost vývoje embryí SCNT a efektivita klonování živočišných produkcí
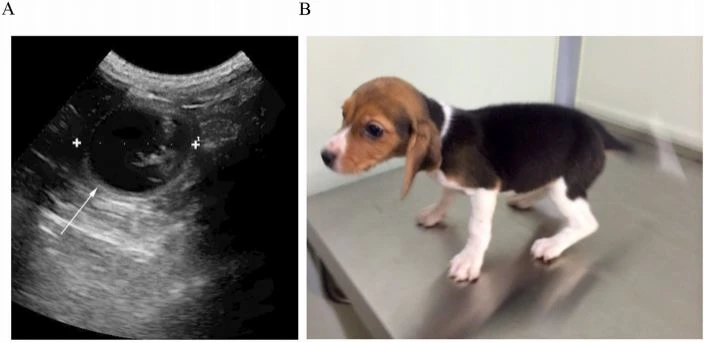
Obr. 3. Klonovaný pes: (A) Ultrasonogram plodu ve fetálním váčku 32 dní po přenosu embrya; (B) Klonovaný bígl ve věku 2 měsíců.

akteosidvcistanchemůže proti stárnutí