ČÁST 1 Regulační vztah mezi kolísáním kvality a prostředím Cistanche Deserticola ve třech ekotypech založených na analýze půdního mikrobiomu
Mar 03, 2022
Prostředí ovlivňuje složení a funkci půdního mikrobiomu, což nepřímo ovlivňuje kvalitu rostlin. V této studii bylo použito sekvenování amplikonů 16S k odhalení rozdílů vsložení půdního mikrobiálního společenstvaCistanche deserticolave třech ekotypech (solná alkalická půda, travní porosty a písčitá půda). prostřednictvím korelační analýzy četnosti mikrobiálních společenstev, obsahu fenylethanoidních glykosidů a ekologických faktorů, regulačního vztahu mezi mikrobiálním společenstvím a kvalitativními variacemiC. deserticolabyla vyložena. profil metabolických funkcí půdního mikrobiomu byl předpovězen pomocí Tax4Fun. Data ukázala, že půdní mikrobiální společenstva tří ekotypů byla významně odlišná (AMOVA, P< 0.001),="" and="" the="" alpha="" diversity="" of="" the="" grassland="" soil="" microbial="" community="" was="" the="" highest.="" core="" microbiome="" analysis="" demonstrated="" that="" the="" soil="" microbial="" communities="" of="">C. deserticolabyly většinou měly sucho, toleranci vůči soli, odolnost vůči alkáliím a odolnost vůči stresu, jako jsou mikrokokály a bacilly. Biomarkery, jmenovitě oceanospirillales (solná alkalická půda), Sphingomonadales (travní porosty) a propionibacteriales (písečná půda), mohou rozlišit tři ekotypové mikrobiální komunity, byly vykopány přes LEfSe a náhodný les. Výsledky korelační analýzy ukázaly, že 2′-acetylakteosid je pozitivně korelován s oceanospirillaly ve slané alkalické půdě. Profily metabolických funkcí vykazovaly vysoce obohacený metabolismus (metabolismus sacharidů a aminokyselin) a cesty zpracování informací o životním prostředí (membránový transport a přenos signálu). Celkově bylo zjištěno, že složení a funkce půdních mikrobiomů jsou důležitými faktory pro kvalitativní variabilituC. deserticolav různých ekotypech. Tato práce poskytla nový pohled na regulační vztah mezi životním prostředím, půdním mikrobiálním společenstvím a variacemi kvality rostlin.
Více informací prosím kontaktujte:Joanna.jia@wecistanche.com
Cistanche deserticola má mnoho účinků, klikněte zde pro více informací
Cistanche deserticolaje nefotosyntetická parazitická rostlina, která může růst v suchých stanovištích, jako je písčitá půda a suchý říční příkop, stejně jako za stresových podmínek, jako je solná alkalická půda1. Tato rostlina parazitovala na kořenech psammofytu Haloxylon ammodendron, který vykazuje silnou odolnost vůči drsným podmínkám prostředí2. Rostliny se spoléhají na benefciální interakci mezi kořeny a mikroorganismy, aby získaly živiny, podpořily růst a odolaly vnějšímu stresu3. Mezitím půdní mikrobiom řídí biogeochemický cyklus makronutrientů, mikroživin a dalších prvků, které jsou životně důležité pro růst rostlin4. Vztah meziC. deserticolaa půdní mikroorganismy rhizosféry zůstávají nejasné. V důsledku toho představujeme půdní mikrobiom rhizosféryC. deserticolaje nezbytné.
C. deserticolase často používá ve východní Asii, střední Asii, severní Africe a dalších zemích jako druh potravinového a zdravotnického léku ke zlepšení paměti, zlepšení sexuální funkce a ochraně jater5,6. Hlavní účinné látkyC. deserticolajsou fenylethanoidní glykosidy (PhGs), iridoidy, lignany a polysacharidy. Mezi těmito složkami jsou PhG aktivní komponenty7. Předchozí studie uváděla, že obsah PhG v různých ekotypechC. deserticolaznačně diferencovaný, mezi nimiž by 2′-acetylakteosid mohl být použit jako chemický marker k rozlišeníC. deserticolavyráběné v Sin-ťiangu a Vnitřním Mongolsku1. Studie mikrobiálních komunit ukázaly, že mikrobiální komunity mohou regulovat metabolismus svých hostitelů8,9. Proto srovnání vztahu mezi mikrobiálním společenstvím a metabolity v půdě rhizosféryC. deserticolav různých ekotypech je naléhavě zapotřebí.16S amplikonové sekvenování vzorků půdy rostlinné rhizosféry bylo provedeno s cílem prozkoumat rozmanitost mikrobiálních společenstev a poskytnout nové poznatky o vztahu mezi rostlinami a půdními mikrobiálními komunitami10,11. Například Asociace distribuce a dynamiky endofytických hub s C. songaricum a N. tangutorum byla zkoumána ve studiích mikrobiomu pomocí vysoce výkonného sekvenování11. V této studii jsme provedli sekvenování amplikonů 16S rRNA, abychom získali půdní mikrobiomyC. deserticolav různých ekotypech. Byly také porovnány rozdíly půdního mikrobiálního společenství v různých ekotypech a byly vykopány biomarkery, které by mohly rozlišit tři ekotypy. Korelační analýza byla poté vypočtena pomocí klíčové četnosti mikrobiálních komunit, obsahu PhG a ekologických faktorů a byl zkoumán regulační vztah. Konečně, funkce půdních mikrobiomůC. deserticolav různých ekotypech bylo předpovězeno.
Materiály a metody
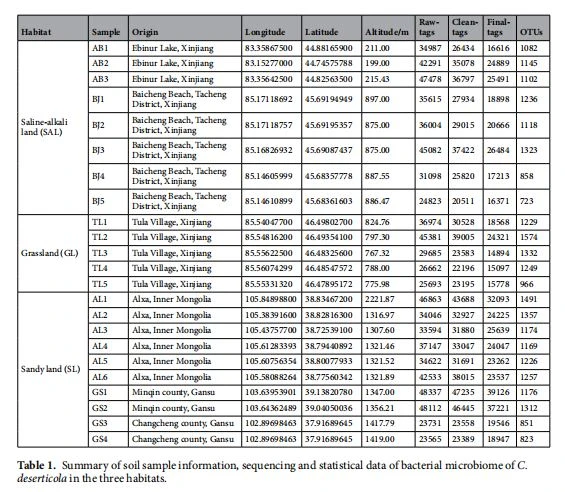
Popis místa studie a odběr vzorků.Podle Feldova vyšetřováníC. deserticolamá tři hlavní ekotypy, včetně solné alkalické půdy, travních porostů a písčité půdy. V dubnu 2017 jsme odebrali vzorky půdy představující hlavní ekotypyC. deserticolav Číně. Půdní vzorky solné alkalické půdy byly odebrány z jezera Ebinur (AB1, AB2, AB3) a pláže Baicheng (BJ1, BJ2, BJ3, BJ4, BJ5) v provincii Sin-ťiang. Vzorky travních porostů byly odebrány z vesnice Tula (TL1, TL2, TL3, TL4, TL5) v provincii Sin-ťiang. Vzorky půdy Sandy byly odebrány z Alxa (AL1, AL2, AL3, AL4, AL5, AL6) v provincii Vnitřní Mongolsko a Minqin county (GS1, GS2), Changcheng county (GS3, GS4) v provincii Gansu. Informace o zeměpisné délce, šířce a nadmořské výšce všech míst odběru vzorků jsou uvedeny v tabulce 1 a na obr. 1. Na místě feldu jsme použili válcovou vrtačku z nerezové oceli o průměru 5 cm pro sběr půdy přiléhající k šťavnatému stonkuC. deserticolaa jeho hostitele a okamžitě jej uložil do přenosné chladničky při teplotě –20 °C. Po transportu do laboratoře prošly vzorky půdy 2mm sítem, aby se odstranily rostlinné tkáně, kořeny, kameny atd., a před dalšími experimenty byly skladovány při teplotě –20 °C v chladničce.
Extrakce DNA a sekvenování 16S rRNA.Půdní DNA byla extrahována pomocí PowerSoil DNA Isolation Kit (MoBio Laboratories, Carlsbad, CA) podle příručky12. Čistota a kvalita genomové DNA byla kontrolována elektroforézou a nanoropem 0,8% agarózových gelů.
Hypervariabilní oblast V3-V4 bakteriálního genu 16S rRNA byla amplifikována primery 338F (ACTCCTACGGGAGGCAGCAG) a 806R (GGACTACHVGGGTWTCTAAT)13. Pro každý vzorek půdy byla přidána 10místná sekvence čárového kódu na 5′ konec dopředného a zadního primeru (Allwegene Company, Peking)12. PCR byla provedena na Mastercycler Gradient (Eppendorf, Německo) s použitím 25 μl reakčních objemů obsahujících 12,5 μl KAPA 2G Robust Hot Start Ready Mix, 1 μl dopředného primeru (5 μM), 1 μl reverzního primeru (5 μM), 5 μl DNA (celkové množství šablony je 30 ng) a 5,5 μl H2O. Parametry cyklu jsou následující: 95 °C po dobu 5 minut, následované 28 cykly o teplotě 95 °C po dobu 45 s, 55 °C po dobu 50 s a 72 °C po dobu 45 s, s prodloužením frekvence při 72 °C po dobu 10 minut. Tři produkty PCR na vzorek byly sdruženy, aby se zmírnilo zkreslení PCR na úrovni reakce. Produkty PCR byly vyčištěny pomocí QIAquick Gel Extraction Kit (QIAGEN, Německo) a poté kvantifikovány pomocí PCR v reálném čase14.
Hluboké sekvenování bylo provedeno na platformě MISeq v Allwegene Company (Peking). Po spuštění byla provedena analýza obrazu, základní volání a odhad chyb pomocí kanálu Illumina Analysis Pipeline verze 2.614.

Cistanchetubulosa může proti stárnutí
Analýza dat.Nezpracovaná data byla důkladně prověřena a sekvence byly odstraněny na základě následujících kon- siderations: sekvence kratší než 200 bp s nízkým skóre kvality (≤20) a obsahovaly nejednoznačné základy nebo neodpovídaly sekvencím základního nátěru a značkám čárových kódů15. Čtení qualifedu bylo odděleno pomocí sekvencí čárových kódů specifických pro vzorek a oříznuto pomocí Illumina Analysis Pipeline verze 2.6. Poté byly datové sady analyzovány pomocí QIIME. Sekvence byly seskupeny do operačních taxonomických jednotek (OTU) na úrovni podobnosti 97%16, aby se vygenerovaly křivky zředění a vypočítaly indexy bohatosti a rozmanitosti. Nástroj Ribosomal Database Project Classifer byl použit ke klasifikaci všech sekvencí do různých taxonomických skupin15. Shlukovací analýzy byly vytvořeny na základě informací OTU z každého vzorku pomocí R ke zkoumání podobnosti mezi různými vzorky17. Matice UniFracdistances mezi mikrobiálními společenstvími z každého vzorku byla vypočtena pomocí Taycova koeficientu a reprezentována jako nevážená metoda párových skupin s aritmetickým středním shlukovacím stromem, který popisuje odlišnost (1-podobnost) mezi více vzorky18. Prostřednictvím této analýzy byl také vygenerován stromový fle ve formátu Newick. Alfa diverzita byla aplikována při analýze složitosti druhové diverzity pro vzorek pomocí čtyř indexů, včetně Chao1, pozorovaných druhů, fylogenetické diverzity (PD) celého stromu a Shannonova indexu diverzity. Tyto indexy byly vypočteny pomocí softwaru QIIME (Boulder, CO, USA) v Pythonu (v.1.8.0) (La Jalla, CA, USA)19. Analýza beta diverzity byla použita k vyhodnocení rozdílů vzorků z hlediska druhové složitosti. Beta diverzita byla vypočtena pomocí hlavní souřadnicové analýzy (PCoA) a shlukové analýzy v QIIME20. Analýza molekulárního rozptylu (AMOVA) byla provedena pomocí mothur. EdgeR byl použit k výpočtu rozdílu OTU mezi skupinami. Heatmap.2 byl použit k nakreslení tepelné mapy, zatímco Ggplot byl použit k nakreslení mapy Manhattanu.
Stanovení biomarkeru a jádrového mikrobiomu.Metody lineární diskriminační analýzy (LDA) a ran-dom forest (RF) na webových stránkách Microbiome Analyst21 byly použity k určení mikrobiomu biomarkeru.
Webová stránka nejprve provádí neparametrický faktoriální Kruskalův–Wallisův sumární test k identifikaci rysů s významnou diferenciální hojností s ohledem na experimentální faktor nebo třídu zájmu, následovanou LDA pro výpočet velikosti efektu každého diferenciálně hojného rysu21. Vlastnosti jsou považovány za významné na základě jejich upravené p-hodnoty. Výchozí hodnota adj.p-cutof = 0,05. RF analýza se provádí pomocí balíčku randomForest5. RF je algoritmus učení pod dohledem, který je vhodný pro vysokodimenzionální analýzu dat. Tato metoda využívá soubor klasifikačních stromů, z nichž každý je pěstován náhodným výběrem prvků ze vzorku bootstrapu v každé větvi22. Analýza jádrového mikrobiomu byla převzata z základní funkce mikrobiomu R balíčku microbiome Analyst
korelační analýza klíčových mikrobiálních společenstev, obsahu PhG a ekologických faktorů.Obsah sedmi fenylethanoidních glykosidů (PhGs) tří ekotypů C. deserticola, jmenovitě echinakosidu, cistanosidu A, akteosidu, isoakteosidu, 2′-acetylakteosidu, tubulosidu A a cistanosidu F, byl stanoven pomocí HPLC. Chromatografické podmínky zahrnují kolonu Waters C18 (150 mm × 3,9 mm, 4,6 μm) a mobilní fáze zahrnuje acetonitril a 0,2% kyselinu mravenčí. Chromatografická nastavení byla následující: 0–10 min, 10 % →15 % A; 10–30 min, 15 % →40 % A. Rychlost byla 1 ml/min. Absorpční vlnová délka, vstřikovací objem a teplota kolony byly 330 nm, 10 μl a 27 °C. Metodická studie odkazuje na předběžnou experimentální práci referenční skupiny1.
Tato studie shromáždila 16 meteorologických stanic v blízkosti tří ekologických typůC. deserticolaXinjiang Bole 51238, Tacheng 51133, Tori 51241, Karamay 51243, Buxail 51156, Yumin 51137, Emin
51145, Gansu Minqin 52681, Yongchang 52674, Wuwei 52679, Gulang 52784, Vnitřní Mongolsko Suikou 53419, Hangjinhouqi 53420 a Wuhai 53512. Data sedmi klimatických faktorů z let 1981–2010 sloužila jako klimatologicko-faktorová data pro následnou korelační analýzu.
Redundancní analýza diferenciálních metabolitů a bioklimatických faktorů byla provedena pomocí softwaru Canoco 523. Pearsonova korelace coefcient byla vypočtena pro četnost biomarkerů mikrobiomu, sloučeninu con- tent a integraci dat ekologického faktoru. V této studii byla konverze dat log2 jednotně provedena před analýzou. SPSS byl použit k výpočtu Pearsonovy korelační koefcient šesti biomarkerů, šesti jádrových mikrobiomů, sedmi hlavních aktivních složek C. deserticola a ekologických faktorů ve třech stanovištích a screeningový standard byl následující: Pearsonova korelace coefcient (r) >0,5 a hodnota p< 0.05.="" the="" relationships="" amongst="" the="" above="" factors="" were="" visualised="" using="" cytoscape24="" (the="" cytoscape="" consortium,="" san="" diego,="" ca,="" usa,="" version="" 3.7.0)="" and="" pheatmap="" (r="">

Predikce mikrobiálních funkčních profles mikrobiomu.Tax4Fun25 (R balíček, http:// tax4fun.gobics.de/) byl použit k předpovědi mikrobiálních funkčních profles mikrobiomů ve vzorcích půdy. Tabulka OTU Biom půdního mikrobiomu byla použita jako vstupní fle pro metagenomovou imputaci vzorků půdy C. deserticola. Poté byly předpovězené četnosti genových tříd analyzovány na úrovni skupiny KEGG Orthology (KO) 3. Výsledky z Tax4Fun byly analyzovány v doBy (R balíček)26.
Výsledky
Složení mikrobiální komunity.Sekvenování 16S rRNA vedlo k 834 323 surovým čtením, z nichž 522 929 prošlo kvalitou a délkou flteringu. Datový soubor obsahoval 20 511–48 337 (průměr: 33 994) sekvencí na vzorek. Vysoce kvalitní čtení byla seskupena pomocí >97% sekvenční identity do 3541 mikrobiálních OTU (tabulka 1).
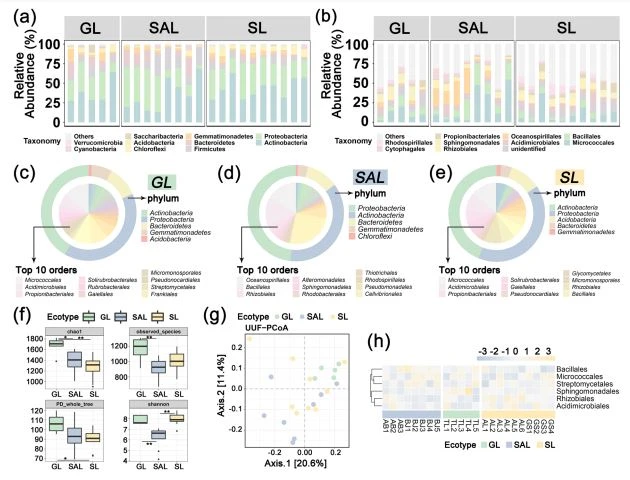
Mikrobiální komunita byla obecně klasifikována do 19 kmenů, 46 tříd a 87 řádů (obr. 2a, b a S1–S3). Na úrovni kmenů byly v solné alkalické půdě dominantní Actinobacteria (35%), Proteobacteria (31%) a Firmicutes (15%). Na travních porostech dominovaly Actinobacteria (37 %), Proteobacteria (29 %) a Bacteroidetes (9 %). V písčité půdě dominovaly Actinobacteria (42%), Proteobacteria (33%) a Firmicutes (6%). Na úrovni třídy byly Actinobacteria (25%), Gammaproteobacteria (21%) a Bacilli (15%) dominantní v solné alkalické půdě, zatímco Actinobacteria (22%), Alphaproteobacteria (16%) a Bacilli (8%) byly dominantní v travních porostech. V písčité zemi dominovaly Actinobacteria (23%), Alphaproteobacteria (20%) a Gammaproteobacteria (9%). Na úrovni řádu (obr. 2c–e) dominovaly ve slané alkalické půdě mikrokokly (22 %), oceanospirillaly (15 %) a bacilály (15 %). Mikrokokály (11 %) a Bacillales (8 %) dominovaly na pastvinách. Nejdominantnějšími bakteriálními řády byly tedy mikrokokly (10%) a Acidimicrobiales (7%).
Rozmanitost půdních bakterií ve třech ekotypech C. deserticola.Měření rozmanitosti uvnitř vzorku (α rozmanitost) odhalilo gradient rozmanitosti mezi těmito třemi stanovišti (obr. 2f a tabulka S1). Alfa diverzita půdního bakteriálního mikrobiálního společenství každého vzorku byla odhadnuta pomocí bohatství společenstva (Chao 1, který byl vyjádřen jako předpokládaný celkový počet OTU v každém vzorku), pozorovaných druhů, PD celého stromu a Shannonova indexu diverzity. Pozorované druhy, Chao 1 a PD index celých stromů naznačovaly, že travní půdní společenstva měla nejvyšší α rozmanitost, zatímco α rozmanitost solných alkalických a písčitých půd je podobná. Výsledky teoretických refakčních křivek (obr. S1) jsou podobné výše uvedeným výsledkům.

Akteosidvcistanchemají dobré účinky naledvina
Výsledky AMOVA (tabulka S2) ukázaly, že p< 0.001,="" which="" indicates="" a="" signifcant="" diference="" amongst="" the="" three="" habitats.="" the="" bray="" distance="" diversity="" tree="" clustering="" results="" (fig.="" s2)="" of="" the="" three="" habitat="" soil="" samples="" demon-="" strated="" that="" the="" saline-alkali="" soil="" samples="" were="" closely="" clustered,="" and="" the="" distance="" between="" the="" grassland="" and="" sandy="" soil="" samples="" was="" close.="" the="" results="" of="" the="" unconstrained="" pcoas="" of="" unweighted="" unifrac="" distance="" 2d="" plots="" (fig.="" 2g)="" showed="" that="" the="" diferent="" soil="" samples="" of="" bacterial="" microbial="" community="" from="" diferent="" habitats="" were="">
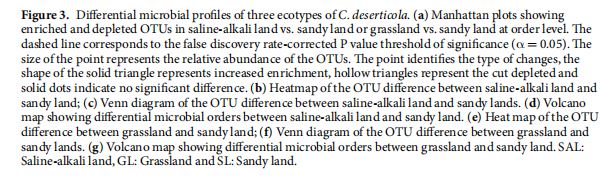
srovnání půdních bakteriálních společenstev tří ekotypů c. deserticola.Různé tepelné mapy hojnosti OTU a mapa sopky (obr. 3b, e, d, h a tabulka S3) ukázaly, že ve srovnání se vzorky písčité půdy bylo 24 a 17 OTU obohaceno a vyčerpáno ve slané alkalické půdě na úrovni objednávky. Kromě toho bylo ve srovnání se vzorky písčité půdy obohaceno a vyčerpáno 8 a 11 OTU na pastvinách. Vennův diagram (obr. 3c,f) ilustroval, že 216 OTU bylo vyčerpáno v písčité půdě, 8 bylo vyčerpáno fyziologickým roztokem a alkálií

půda a 1 OTU se překrývaly mezi solnými alkalickými a písčitými půdami. Kromě toho byly 3 OTU obohaceny o travnatou půdu, zatímco 161 bylo obohaceno o písčitou půdu, včetně 6 OTU, které se překrývaly mezi travními porosty a písčitou půdou. Pozemky na Manhattanu (obr. 3a) ukázaly, že Xanthomonadales byly více obohaceny a vyčerpány ve slané alkalické půdě než ty v písčité zemi, zatímco bakterie Xanthomonadaceae WWH73, půdní skupina WD2101, Vibrionales a Verrucomicrobiales byly významně vyčerpány na úrovni řádu. Porovnáním travních porostů s písčitou půdou byly výrazně vyčerpány Xanthomonadales, půdní skupina WD2101, Vibrionales a Verrucomicrobiales.
Cistanchedeserticola má mnoho účinků na léčbuCukrovka
Stanovení biomarkeru a jádrového mikrobiomu ve třech ekotypech C. deserticola.Metody LEfSe a RF (obr. 4a,b,d) byly použity k identifikaci rysů s významnou diferenciační četností napříč vzorky půdy, výpočtu velikosti efektu každého diferenciálně hojného rysu a stanovení biomarkerového bakteriálního mikrobiomu ve třech stanovištích na úrovni řádu. Výsledky uvedené v tabulce S4 ukázaly, že skóre LDA u Oceanospirillales, Bacillales a Flavobacteriales bylo nejvyšší mezi těmi ve slané alkalické půdě, zatímco skóre Sphingomonadales, Gaiellales, Rubrobacterales, Burkholderiales a Sphingobacteriales bylo nejvyšší mezi těmi v travních porostech. LDA skóre Propionibacteriales, Rhodospirillales, Solirubrobacterales, Rhizobiales, Xanthomonadales a Pseudonocardiales byly dominantní v písčité zemi. S vyloučením neuznaných a duplikovaných řádů byly tyto OTU rozděleny do šesti řádů a jejich početnost byla nakreslena v heatmapě (obr. 4c).
Metoda perzistence byla převzata z základní funkce v mikrobiomu R balení k identifikaci jádrového mikrobiomu ve třech ekotypech C. deserticola. Tento základní bakteriální mikrobiom obsahoval šest řádů, včetně Mikrokokly, Bacillales, Rhizobiales, Acidimicrobiales, Streptomycetales a Sphingomonadales. S vyloučením neobdržených a duplikovaných řádů byly tyto OTU rozděleny do šesti řádů a jejich množství bylo nakresleno v tepelné mapě (obr. 2h).
Metoda perzistence byla převzata z základní funkce v mikrobiomu R balení k identifikaci jádrového mikrobiomu ve třech ekotypech C. deserticola. Tento základní bakteriální mikrobiom obsahoval šest řádů, včetně Mikrokokly, Bacillales, Rhizobiales, Acidimicrobiales, Streptomycetales a Sphingomonadales. S vyloučením neobdržených a duplikovaných řádů byly tyto OTU rozděleny do šesti řádů a jejich množství bylo nakresleno v tepelné mapě (obr. 2h).