Část 1 Hemoxygenáza 1: Obranný mediátor při onemocněních ledvin
Mar 20, 2022
Část 1
Anny Grunenwaldové1, Lubka T. Roumenina1a Marie Frimatová 2,3,*
Abstraktní:Výskytledvinaonemocnění narůstá, což představuje značnou zátěž pro systém zdravotní péče a identifikace nových terapeutických cílů je stále naléhavější. Systém hemoxygenázy (HO) plní důležitou funkci při regulaci oxidačního stresu a zánětu a prostřednictvím těchto mechanismů se předpokládá, že hraje roli v prevenci nespecifických poranění po akutním selhání ledvin nebo v důsledku chronického onemocnění ledvin. Exprese HO-1 je silně indukovatelná širokou škálou podnětů vledvinav důsledku filtrační role ledvin, což znamená, že HO-1 je vystavena širokému spektru endogenních a exogenních molekul, a na různých neuropatologických zvířecích modelech se ukázalo, že má ochranný účinek. Zajímavé je, že pozitivní účinek HO-1 se vyskytuje u onemocnění s převahou hemolýzy i rhabdomyolýzy, kdeledvinaje ve velké míře vystaven hemu (hlavnímu induktoru HO{0}}) a také u nemocí nezávislých na hemu, jako je hypertenze, diabetická nefropatie nebo progrese do konečného stadia onemocnění ledvin. To zdůrazňuje složitost funkcí HO-1, což také ilustruje skutečnost, že navzdory velkému množství preklinických údajů nebyl dosud žádný lék cílený na HO-1 převeden do klinického použití. Cílem tohoto přehledu je posoudit současné poznatky týkající se úlohy HO-1 v ledvinách a jejího potenciálního zájmu jako nefroprotektivního činidla. Budou představeny potenciální terapeutické možnosti, zejména prostřednictvím identifikace klinických studií zaměřených na tento enzym nebo jeho produkty.
klíčová slova:heme-oxygenáza-1; hem;ledvina; hemolýza; rhabdomyolýza; toxicita; ischemie-reperfuze
Kontakt:ali.ma@wecistanche.com

Přínos extraktu z Cistanche pro onemocnění ledvin, kliknutím sem získáte vzorek
1. Úvod
Počet lidí na celém světě s chronickýmiledvinaonemocnění (CKD), akutní poškození ledvin (AKI) nebo vyžadující renální substituční terapii přesahuje 850 milionů [1]. Předpokládaná incidence je důvodem k obavám, přičemž se předpokládá, že CKD se do roku 2040 stane pátou hlavní příčinou úmrtí na světě [2]. To je obecně přijímánoledvinanemoci jsou významným problémem veřejného zdraví a že je naléhavě zapotřebí multimodálního přístupu k omezení tohoto předpokládaného vývoje [3]. Klíčový význam má identifikace nových terapeutických cílů, a to jak pro omezení dopadu akutních renálních příhod, tak pro zlepšení špatných výsledků u CKD, napříč řadou základních etiologií. V současné době je studováno několik kandidátů na nefroprotekci [4,5]. Systém hemoxygenázy (HO) je jedním z cílů, které by mohly být použity k ochraně ledvinových struktur před poškozením způsobeným oxidačním stresem, omezením zánětu a následně zrychleného stárnutí.
HO objevili v roce 1968 Tenhunen a kolegové, kteří poprvé popsali její schopnost katalyzovat rozklad hemu (Fe-protoporfyrin IX) na volné železo, oxid uhelnatý (CO) a biliverdin, který se rychle přeměňuje na bilirubin [6]. Byly popsány dvě hlavní izoformy HO: indukovatelná HO-1 a konstitutivní HO-2. Zpočátku byl HO považován pouze za systém recyklace hemu ze starých červených krvinek, ale od té doby se mu připisovala řada cytoprotektivních vlastností prostřednictvím jeho metabolitů a následné signalizace, čímž se jeho definice rozšířila z definice „molekulární ničivé koule“ na „hypnotizující“ spouštěč buněčné události, abychom citovali Mainese et al. [7]
HO-1, poháněný svými potenciálními antioxidačními a protizánětlivými schopnostmi, je předmětem rostoucího zájmu pro svou roli v různých lidských patologiích. Mezi studovanými orgány byla v posledních 30 letech často zdůrazňována ledvina, zejména prostřednictvím identifikace úlohy HO-1 v různých ledvinových, metabolických a vaskulárních onemocněních akutní i chronické povahy [8–11 ]. HO-1 je zásadní pro efektivituledvinafunkce, jak dokládají poškození ledvin u lidí s nedostatkem HO-1 a četné studie na zvířatech (popsané níže). Theledvinyfyziologické funkce specificky ovlivňují regulaci HO-1. Renální tkáň je skutečně velmi citlivá na hypoxii [12], hlavní hnací sílu exprese HO-1, a je zvláště vystavena toxickým molekulám kvůli své filtrační a reabsorpční funkci. Tato zvláštnost „detoxikačního“ orgánu sdíleného s játry znamená, že ledviny jsou vysoce vystaveny molekulárním vzorcům spojeným s poškozením (DAMP) a mediátorům stresu. Zajímavé je, želedvinamá schopnost syntézy albuminu, alfa proteinu a haptoglobinu při ischemickém nebo toxickém ischemickém poškození, což podtrhuje paralelu s játry [13,14]. Renální buňky proto vyžadují adaptační strategie, aby si zachovaly své funkce a integritu v tak drsném prostředí. Ledviny jsou hlavním místem expozice hemu v případě extravaskulární hemolýzy nebo rhabdomyolýzy, a tedy také při indukci exprese HO-1. Za těchto podmínek lze nadměrnou expresi HO-1 snadno vysvětlit potřebou katabolizovat přetížení volného hemu. Účast HO-1 na onemocněních ledvin však přesahuje rámec onemocnění souvisejících s hemem, což ilustruje složitost mechanismů jeho působení, které přesahují samotný katabolismus hemu [15].
Cílem tohoto přehledu je shrnout velké množství experimentálních a klinických dat popisujících význam HO-1 vledvina, aniž bychom zapomněli, že HO-2 je také významný: konstitutivně exprimovaný v ledvinách za homeostatických podmínek, je v první linii obrany proti ischemii a dalším inzultům a jeho renální cytoprotektivní účinky byly prokázány u hemových proteinů a ischemií indukovaná AKI [16]. Ve srovnání s literaturou o HO-1 však existuje jen velmi málo studií zkoumajících funkční význam HO-2 u onemocnění ledvin; proto se tato recenze zaměří na HO-1. Po obecném úvodu do charakteristiky HO-1 v ledvinách popíšeme roli tohoto enzymu v různých populacích ledvinových buněk a při onemocněních ledvin. Vzhledem k jeho primární funkci recyklace hemu budeme k těmto patologickým stavům přistupovat podle toho, zda dochází či nedochází k masivnímu uvolňování volného hemu. Nakonec budou prezentovány současné klinické aplikace, které odhalí nepoměr mezi množstvím dostupných experimentálních dat a relativním nedostatkem terapeutických aplikací.
2. O hemoxygenáze-1 v ledvinách
2.1. Proč je HO-1 zvláště důležitá pro ledviny?
V posledních několika desetiletích byla klíčová role HO-1 systému v patofyziologiiledvinaonemocnění bylo podpořeno několika studiemi. U dvou dosud hlášených pacientů s deficitem HO-1-byly ledviny mezi poškozenými orgány. Oba pacienti měli hematurii a proteinurii.ledvinybiopsie odhalily zvýšenou mezangiální proliferaci a fokální ztluštění kapilárních kliček pomocí světelné mikroskopie a odchlípení endotelu v glomerulární kapiláre pomocí elektronové mikroskopie [17,18]. Renální poranění byla také přítomna v obou zvířecích modelech neplatné pro HMOX1, s některými rozdíly patrnými mezi myším [19] a potkaním modelem [20]. U myší Hmox1-/- byl nedostatek funkční hemoxygenázy zodpovědný za zvýšenou náchylnost k oxidativnímu stresu [19], sníženou hemofagocytózu senescentních červených krvinek tkáňovými makrofágy, zvýšenou hemolýzu a redistribuci železa ze sleziny a jater makrofágů na hepatocyty a buňky proximálního tubulu ledvin [21]. Podobně krysy Hmox1-/- vykazovaly anémii, splenomegalii a výrazné infiltráty intersticiálních zánětlivých buněk a fibrózní jizvy v ledvinách. Zatímco glomerulární léze byly na myším modelu neoficiální, Atsaves et al. zjistili nárůst mezangiální matrix a fokálních a segmentálních glomerulosklerózových lézí u Hmox1-/- potkanů. Tyto morfologické nálezy byly spojeny se zvýšeným dusíkem močoviny v krvi, sérovým kreatininem a albuminurií, ale zajímavé je, že nedošlo ke zvýšení depozit železa v glomerulech, tubulech nebo intersticiu [20].
Spontánní poškození ledvin u lidských i zvířecích modelů neplatné pro HMOX naznačuje, že HO-1 je důležitá pro účinnou funkci ledvin. Renální protektivní role tohoto enzymu byla potvrzena v mnoha modelech renální stimulace u stavů invalidizace/inhibice nebo nadměrné exprese HO-1 [22]. Výše uvedené histologické rozdíly však ilustrují obtíže při transpozici výsledků z jednoho druhu na druhý. Rozdíly v regulaci HO-1 mezi lidmi a myšmi jsou dobře popsány, což motivuje generování lidských transgenních myší hHO{4}} BAC [23]. V tomto modelu je HO-1 nadměrně exprimován a zůstává neznámé, zda tato vyšší exprese na pozadí může zakrýt jemné poškození po dlouhou dobu, nebo dokonce sama o sobě mít nepříznivé účinky.
Lepší pochopení toho, jak HO-1 funguje vledvinaa způsob, jakým je ovládán jeho výraz nebo funkce, je zásadní pro naše pochopeníledvinafyziologie a patologie, ale je (jako vždy) důležité pamatovat na limity každé studie při její interpretaci a překladu: pokusíme se udržet tento kritický pohled v celém tomto přehledu.
2.2. Regulace exprese HO-1 v ledvinách
Protein HO-1 je všudypřítomný, je ukotven v membráně endoplazmatického retikula a také se nachází v mitochondriálních jádrech a kaveolinu, zatímco gen HO-1 (HMOX1), který kóduje HO-1, se nachází na chromozomu 22. Mnoho stimulů může modulovat transkripci HMOX1, což odráží široké spektrum motivů vázající DNA v jeho promotoru a velký počet signálních drah, které vedou k jeho transkripci. Hlavním regulátorem genu HMOX1 je jaderný erytroidní faktor 2 (Nrf2), jehož aktivace závisí na jeho interakci s ECH-asociovaným proteinem Kelchova typu (Keap1). Interakce Keap–Nrf2 podporuje degradaci Nrf2 (zdravý stav), zatímco destabilizace tohoto komplexu uvolňuje Nrf2, který se translokuje do jádra a upreguluje určité geny, včetně HO-1 (stresový stav). Existuje mnoho dalších aktivátorů nebo represorů HO-1, které tvoří komplexní biomolekulární síť (podrobně v předchozích recenzích [7,10]). Podrobnosti o nich jsou nad rámec tohoto přehledu a zde se zaměříme na renální specifické rysy exprese HO{21}}.
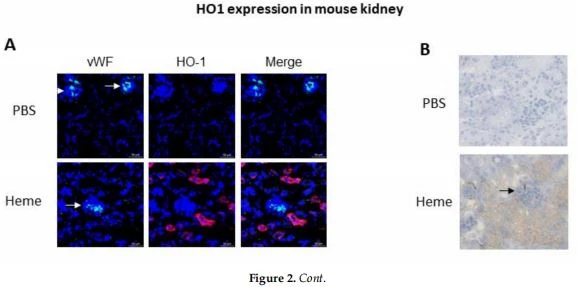
Vledvina, hladiny proteinu HO-1 jsou za homeostatických podmínek nedetekovatelné, s výjimkou tubulů, kde však zůstávají nízké [24]. Je známo, že mnoho stresových stavů up-reguluje renální transkripci HO-1, včetně oxidačního stresu, tepelného šoku, hypoxie, těžkých kovů a toxinů (přehled v Bolisetty et al. [8]). Za těchto podmínek zůstává exprese HO-1 heterogenní mezi různými renálními kompartmenty. Ledvina se skládá ze dvou hlavních oblastí: výstupní kůra a dřeň v nejvnitřnější oblasti. Dřeň obsahuje většinu délky nefronů, funkčních složek ledvin, které filtrují tekutinu z krve. Ledvinová kůra zahrnuje glomeruly, ty „chuchvalce“ kapilár, kde je plazma filtrována přes glomerulární bazální membránu. Filtrovaná tekutina pak proudí podél stočeného proximálního tubulu do Henleovy kličky a poté do stočeného distálního tubulu a sběrných kanálků, které odtékají do močovodu (obrázek 1). Glomerulární filtrace a reabsorpce rozpuštěných látek (dvě hlavní funkce ledvin) jsou podporovány průtokem krve ledvinami, který patří k nejvyšším v těle, přičemž ledviny přijímají asi 20 až 25 procent srdečního výdeje. Ve srovnání s kůrou je průtok krve do dřeně ledvin relativně nízký. Tato disparita je nutná pro umožnění účinného mechanismu koncentrace moči a také vysvětluje zvláštní náchylnost dřeně ke snížení průtoku krve. Za stresových podmínek je tedy HO-1 více exprimován v dřeni než v kůře [25]. Jeho exprese je velmi silná v tubulech (zejména proximálních tubulech), ale minimální nebo chybí v glomerulech, jak je znázorněno na obrázku 2 jak u hemolytických pacientů, tak u myší s injekcí hemu. Ukázalo se však, že předchozí indukce HO-1 v glomerulech zabránila následnému rozvoji nefrotoxické glomerulonefritidy na modelu potkanů Lewis, ale hlavním producentem HO-1 v glomerulech byly infiltrující makrofágy, nikoli vnitřní glomerulární buňky [26]. Tato nižší kapacita glomerulů exprimovat HO-1, což je klíčový cytoprotektivní mechanismus, by mohla vysvětlit zvláštní citlivost glomerulů vůči stresorům u určitých patologií [27].
Dohromady tato data ukazují, že hladiny HO-1 jsou normálně nezjistitelné vledvinaale že HO-1 je vysoce indukovatelná v tubulech během patologických stavů, zejména prostřednictvím svého hlavního transkripčního faktoru Nrf2. Kapacita glomerulů indukovat HO-1 je však nižší.


2.3. HO-1 a nefroprotekce
Podobně jako HO-2 i HO-1 řídí na NADPH závislé přidávání molekuly kyslíku do porfyrinového kruhu hemu, čímž katalyzuje oxidaci hemu a ekvimolární uvolňování biliverdinu, volného železa a oxidu uhlíku (CO). Všechny tyto události jsou cytoprotektivní tím, že odstraňují volný hem, regulují odtok železa a zvyšují hladiny bilirubinu a CO. Škodlivé účinky volného hemu jsou skutečně dobře popsány, zejména na vaskulárním místě prostřednictvím přímé toxicity, ale také prostřednictvím stimulace prozánětlivých signálních drah (jako jsou DAMP) a aktivace systému komplementu [28]. Podobně jako u endotelových buněk jsou tyto nepříznivé účinky hlášeny u jiných typů buněk, když jsou masivně vystaveny hemu. To je případ lidských vláken kosterního svalstva, u nichž expozice hemu vyvolává kontraktilní dysfunkci [29], a renálních tubulárních buněk [30]. Kromě toho je železo výrazně toxické i v nízkých koncentracích. Účastní se Fentonovy reakce, produkující hydroxyl, a může vést k buněčné smrti ferroptózou, což je dráha buněčné smrti charakterizovaná na železe závislým poklesem hladiny glutathionu (GSH) a akumulací hydroperoxidů lipidů na letální hladiny [31]. Bylo tedy publikováno, že cytoprotekce HO-1 byla způsobena, alespoň částečně, zvýšeným tokem železa [32], které se po uvolnění buď ukládá ve feritinu, nebo se exportuje z makrofágů do plazmy pro opětovné - použití přes transmembránový feroportin exportér železných kovů. CO působí proti vazokonstrikci a má silné antioxidační vlastnosti, stejně jako biliverdin, který se enzymaticky přeměňuje na bilirubin prostřednictvím biliverdin reduktázy [33].
Přeneseme-li tyto vlastnosti na renální úroveň, je snadné pochopit výzkumný zájem o využití této molekuly k léčběledvinachoroba. Pozitivní účinky byly popsány již téměř 30 let po práci Natha et al., kteří uvedli, že HO-1 poskytuje ochranu u potkaního modelu akutního selhání ledvin vyvolaného glycerolem. V jejich modelu jediná předchozí injekce hemoglobinu rychle indukovala HO-1 messenger RNA a protein v ledvinách, což zabránilo progresi k selhání ledvin [34]. Nefroprotektivní účinky HO-1 a jejích metabolitů byly od té doby popsány na různých modelech onemocnění ledvin [8,35]. Potenciální význam HO-1 v patogenezi onemocnění ledvin také naznačuje souvislost mezi polymorfismy v genu HO-1 a renálním výsledkem. Jedinci s kratšími repeticemi (GT)n v oblasti promotoru HO-1 mají vyšší transkripční aktivitu, a tedy vyšší hladiny HO{11}} než jedinci s delšími repeticemi (GT)n [36]. Je zajímavé, že dlouhé (GT)n repetice byly spojeny s horší prognózou v několika kontextech, jmenovitě s vyšším rizikem AKI po kardiochirurgickém výkonu nebo se sníženou funkcí ledvin po transplantaci ledviny [37,38]. Neexistují však žádné důkazy o protektivním účinku krátké repetice (GT)n na přežití štěpu nebo příjemce po transplantaci ledviny [39], což zdůrazňuje složitost příslušných mechanismů. Úrovně exprese HO-1 se také mohou lišit s věkem. Renální exprese genu HO-1 u kontrolních myší C57Bl6 byla významně snížena ve věku 18 let ve srovnání se 3 měsíci věku [40]. V jiné studii se exprese proteinu HO-1 na začátku mezi 6–8-týdenními myšmi a 1-letými myšmi významně nelišila, ale schopnost starších zvířat upregulovat HO -1 v reakci na ischemicko-reperfuzní poranění (IRI) byla narušena (zejména v dřeni) a vykazovali horší renální funkce ve srovnání s mladými zvířaty [41]. Tyto výsledky odrážejí renální citlivost starších lidí na nefrotoxické látky.
Abychom to shrnuli, v mnoha studiích bylo prokázáno, že preventivní nebo genetická indukce exprese HO-1 poskytuje ochranu ledvin. Snížení renální exprese HO-1 může přispět kledvinycitlivost na určité patologie.
3. HO-1 v populacích ledvinových buněk
Srovnávací analýzy odhalily, že HO-1 není exprimován ve stejném rozsahu v různých buněčných populacíchledvinapro daný podnět (obrázek 1). Během intravaskulární hemolýzy nebo v přítomnosti HO-1- indukující stresové stimuly nebo léky v oběhu jsou endoteliální buňky prvními buňkami, které jsou vystaveny těmto systémovým stresorům. Pokud je stresor filtrován v glomerulech, pak jsou podocyty obnaženy a mohou být poškozeny, jak je vidět u diabetické nefropatie. Stresor se dále může setkat s mezangiálními buňkami, které mají sekreční a imunomodulační roli a proliferují během nedostatku HO-1. Nakonec může stresor dosáhnout tubulárního epitelu, který je nejvíce prozkoumaným buněčným typem ve vztahu k HO-1 (proximální a distální tubuly musí být zvažovány odděleně s ohledem na epitel). Tubulární epiteliální buňky mají nejúčinnější schopnost nadměrně exprimovat HO-1 a utrpí nejzávažnější poškození v případě jeho nedostatku nebo během intravaskulární hemolýzy a rhabdomyolýzy. Tato část popisuje klíčové funkce hlavních typů ledvinových buněk a specifickou roli HO-1 v nich.
3.1. Endoteliální buňky
Endotel se skládá z monovrstvy endoteliálních buněk (EC), které plní kritické funkce v krevních cévách. Pokrývají vnitřek cév a plní bariérové funkce, ale slouží také jako výměnné rozhraní se sousedními tkáněmi, senzor pro tkáňový a intravaskulární stres a jako zdroj obranných mediátorů [42]. EC jako takové jsou první linií buněk, které se setkávají s cirkulujícími stresory a exprese HO-1 je nezbytná pro jejich přežití, přičemž pacienti s deficitem HO-1-a myší modely vykazují rozsáhlé poškození endotelu [19,43]. Účinky HO-1 na přežití v EC se vyskytují v každém orgánu a existuje velké množství práce týkající se jeho indukce různými molekulami [44,45]. Podle jeho lokalizace (v různých orgánech, v cévách nebo kapilárách) se liší struktura EC, specializace a funkce. EC z různých cévních řečišť tedy mají dynamické expresní profily (jak prostorově, tak časově), což by mohlo vysvětlovat jejich selektivní zapojení do různých chorobných procesů [42].
Vledvina, lze rozlišit tři hlavní typy endotelu: glomerulární, peritubulární kapiláry a endotel střední/velké cévy [46], každý s různou úrovní exprese nebo funkce HO-1. Glomerulární EC je „fenestrovaný“ a pokrytý glykokalyxou [47] odpovědnou za omezení průchodu makromolekul do močové komory [48]. Navzdory glykokalyxu mohou malé hydrofobní molekuly (např. hem) vstupovat do buněčných membrán a aktivovat prozánětlivé a protrombotické dráhy, včetně signalizace TLR-4, čímž podporují adhezi krevních buněk a vazookluzi (Schaer et al., 2013). EC peritubulárních kapilár je také fenestrovaný a leží na tenkém stromatu. Transportují reabsorbované složky a udržují funkci tubulárních epiteliálních buněk [46]. Konečně endotelie středních i velkých cév jsou souvislé, se vzájemně propojenými EC. Strukturální a funkční rozmanitost EC v ledvinách jako funkce jejich lokalizace je činí odlišně citlivými na specifické stresory, jako jsou toxické nebo prozánětlivé filtrované molekuly pro glomerulární EC, hypoxie pro peritubulární kapiláry nebo změny ve smykovém napětí, s odpovídajícími specifickými reakcemi. k takovým útokům [46].
Hlavními faktory ovlivňujícími expresi HO-1 v EC jsou hypoxie, smykové napětí, přítomnost hemu a dalších cirkulujících stresorů (amoniak [49], S-adenosylmethionin [50] atd.), cirkulující látky (statiny [51], resveratrol [52] atd.) nebo léky. Parciální tlak kyslíku klesá podél peritubulární kapiláry, zejména za stresových podmínek s nadměrnou spotřebou O2. Zajímavé je, že exprese HO-1 klesá při hypoxii, zatímco exprese HO-2 byla zachována v makrovaskulární EC (HUVEC) lidské pupeční žíly [53]. Exprese HO-1 je však indukovatelná v EC mikrovaskulárních peritubulárních kapilár za různých podmínek, které mohou vyvolat hypoxii (hem, Angiotensin II atd.). Fyziologický smykový stres je hlavním determinantem přežití EC, jak bylo prokázáno in vivo u lidských karotických aterosklerotických plátů [54] a králičích karotid se sníženým průtokem krve [55]: indukuje také expresi protizánětlivých faktorů (in vitro v HUVEC a in vivo v králičí aortě [56]) a vazodilatační (in vitro a in vivo u myší [57]). Zajímavé je, že exprese HO-1 je indukována smykovým stresem, in vitro v makrovaskulárních (aorta) a mikrovaskulárních (HMEC) lidských EC [58], a tato exprese byla hlášena u potkanů jako přímo související s úrovní smykového stresu : vyšší exprese při vysokých hladinách průtoku (v tepnách), ale vyžadující jiné faktory, aby HO-1 byla exprimována při nízkých hladinách průtoku (v mikrocévách) [59]. Tento jev byl dosud popsán pouze ve střevních cévách. Pokud jsou však tyto výsledky ověřeny v jiných orgánech, může to vysvětlit sníženou indukci HO-1 v kapilárách, jako je glomerulární EC při stresu [27]. EC je vysoce vystaveno produktům odvozeným od cytotoxické hemolýzy a endoteliální reakce na tyto inzulty odrážejí heterogenitu EC. Mikrovaskulární EC, a zejména glomerulární EC, jsou méně náchylné k up-regulaci HO-1 ve srovnání s makrovaskulární EC, a to jak in vitro, tak na myším modelu hemolýzy [27]. To je činí zvláště náchylnými k poškození prostřednictvím rozdílů v regulaci C3 komplementu a degradaci hemu ve srovnání s makrovaskulární EC [27]. O indukční kapacitě HO-1 EC peritubulárních kapilár je známo jen málo.
Renální makrovaskulární EC zůstává nedostatečně studována s ohledem na expresi a funkci HO-1. Nejpoužívanějším modelem při studiu makrovaskulární EC je lidská umbilikální žíla EC (HUVEC). Expozice hemu v HUVEC je zodpovědná za rychlou signální transdukci, mobilizaci endoteliálních Weibel Paladeových tělísek a aktivaci NF-kB, což jim propůjčuje prozánětlivý a protrombotický fenotyp [60–62]. Delší expozice jim však umožňuje vyvinout adaptační mechanismy a stát se vysoce odolnými vůči poraněním zprostředkovaným oxidačním stresem a produktům peroxidace lipidů. Patří mezi ně indukce feritinu a HO-1 [63], ačkoli indukce HO-1 v glomerulárních EC in vitro a na myších modelech hemolýzy je mnohem slabší [27,64]. Indukce HO-1 v makrovaskulárních EC významně modulovala aktivaci komplementu [27,65], expresi trombomodulinu u hemolytických stavů [27] a v kontextu septickýchledvinaporanění [66] a exprese adhezních molekul spojených s aktivací EC [67].
Dohromady tyto údaje naznačují, želedvinaendotel je v důsledku své filtrační funkce silně ovlivněn toxiny a stresory. Zdá se, že takové stresory spouštějí v makrovaskulárních EC silné adaptační mechanismy, které jim umožňují odolávat urážkám do určité úrovně, zejména zvýšenou regulací HO-1 a souvisejících genů. I když v literatuře existuje značný nedostatek údajů, dostupné studie naznačují, že na rozdíl od makrovaskulárního EC je tato upregulace HO-1 méně výrazná v glomerulárním mikrovaskulárním endotelu, takže je zvláště citlivý na stres prostředí.
3.2. Podocyty
Podocyty jsou hyperspecializované buňky, které udržují glomerulární filtrační bariéru prostřednictvím syntézy komponent glomerulární bazální membrány (GBM) a vytvářením štěrbinové bránice připojením svých výběžků na nohy ke glomerulárním endoteliálním buňkám [68] (obrázek 1). Jejich strategická lokalizace, umožňující jejich filtrační funkci, je činí zvláště citlivými na mechanickou, oxidační a imunologickou zátěž. Podocyty mají jedinečné adaptivní reakce, včetně upregulace vimentinu a desminu [69] nebo antioxidačních proteinů, jako je Sirtuin1 a metallothionein. Sirtuin upreguluje Nrf2, čímž zvyšuje expresi HO-1. [70,71] Zajímavé je, že exprese sirtuinu-1 (společně s Nrf2 a HO-1) byla hlášena jako zvýšená vystavením konečným produktům pokročilé glykace [71] a HO{{14} } bylo prokázáno, že je specificky zvýšena v podocytech u pacientů s diabetem [72]. Přestože je exprese HO-1 méně prostudována, byla popsána také za hemolytických podmínek [27,73], přičemž hem indukuje expresi HO-1 v podocytech způsobem závislým na Nrf{20}}. Je zajímavé, že u myší s deficitem Nrf{21}} se spontánně rozvinula proteinurie s vymazáním výběžků nohou, které snížilo expresi synaptopodinu a nefrinu a apoptózu podocytů [73].
Ačkoli literatura o HO-1 v podocytech není bohatá, existují důkazy, které naznačují ochrannou fyziologickou roli osy Nrf2/HO-1 zachováním pedicelů a inhibicí smrti a oddělení podocytů. V patologických kontextech je HO-1 nadměrně exprimován jako obranný mechanismus, ale mohl by být také vedlejším produktem vyčerpaných mechanismů rezistence vyplývajících z ohromujícího stresu, v tomto kontextu nestačí k prevenci poškození podocytů.
3.3. Mesangiální buňky
Mesangiální buňky spolu s mezangiální matricí, kterou produkují, tvoří mezangium, podpůrnou tkáň pro glomerulus floculus. Mezi mezangiálními buňkami jsou imunitní buňky, monocytům/makrofágům podobné (5 až 15 procent) a kontraktilní buňky, které jsou podobné buňkám hladkého svalstva (85 až 95 procent) a poskytují strukturální podporu a kontrakci [74,75]. Hem podporuje proliferaci buněk hladkého svalstva [76] a jeho receptor TLR4 je exprimován na mezangiálních buňkách [77], ale role HO-1 v těchto buňkách je málo studována. Bylo prokázáno, že oxid dusnatý (NO) indukuje HO-1 v mezangiálních buňkách [78], pacienti s deficitem HO-1-mají mírnou mezangiální proliferaci [17,18,43] a HO{{17} } bylo prokázáno, že moduluje proliferaci mezangiálních buněk prostřednictvím upregulace p21 [79]. Je zapotřebí další práce, aby se zjistilo, zda je velké množství znalostí nashromážděných pro makrofágy použitelné pro mezangiální buňky podobné makrofágům.
3.4. Tubulární buňky
Pokud byla exprese HO-1 popsána v tubulech před časem, teprve nedávno byla její regulace popsána jako segmentově specifická; HO-1 také hraje odlišné role v různých segmentech tubulu za účelem udržení renálních funkcí [80].
3.4.1. Proximální tubul
Proximální tubuly jsou buňky vledvinakteré vykazují nejvyšší kapacitu pro nadměrnou expresi HO-1. Ukázalo se, že proximální tubulární epiteliální buňky jsou zvláště citlivé na oxidační stres in vitro [81]. Silně spoléhají na HO-1 při ochraně před stresory a adaptaci na ně, jak dokazuje skutečnost, že hlavním patologickým rysem lidského nedostatku HO-1 je tubulární poranění [82]. Hlavní funkcí renálního proximálního tubulu je příjem vody, iontů, aminokyselin a filtrovaných proteinů. Při absenci glomerulárního poškození mají filtrované proteiny většinou velikost pod 68 kDa. Internalizace proteinů, včetně těch spojených s hemem, jako je myoglobin nebo hemoglobin, ale také hemopexin, probíhá prostřednictvím megalinových a tubulinových receptorů [83]. Tato reabsorpční funkce vyžaduje velké množství energie (ATP) poskytované mitochondriální beta-oxidací [84]. Závažná deplece ATP však vede k poškození mitochondrií, což způsobuje další vyčerpání energetických zásob a tvorbu reaktivních forem kyslíku [85]. Tato vysoká metabolická náročnost vyvolává stav relativní hypoxie v dřeni ledvin a proximální tubuly jsou zvláště citlivé na ischemii/reperfuzi a nadbytek hemu [86,87]. Citlivost na hem je také vysvětlena konstitutivní expresí TLR4 (receptor hemu) proximálními tubuly [61] a exprese TLR4 je zvýšená u renálního ischemicko-reperfuzního poškození a septického poškození [77].
Zatímco HO-1 je vyjádřeno pouze slabě vledvinaza normálních podmínek je silně indukovatelný v proximálních tubulech při různých formách stresu [88], mezi nimi proteinurie [80]. Souhra mezi absorpcí proteinů obsahujících hem, osmotickým tlakem řídícím příliv hemu, expresí TLR4 a zvýšenou syntézou hemu v proximálních tubulech může společně vysvětlit tuto specifickou silnou regulaci H20{4}}. Bylo navrženo, že exprese HO-1 v buňkách tubulárního epitelu závisí více na bazolaterální expozici hemu (z peritubulárních kapilár za hemolytických podmínek) než na obsahu intraluminálního hemu. V podmínkách hypoxie a změněné polarity renálního EC však bylo hlášeno, že zvýšená regulace HO-1 více závisí na apikální expozici hemu [89]. U tubulárních epiteliálních buněk je upregulace HO-1 hemem závislá na stabilizaci Nrf2 [90]. HO-1 má dvojí roli v tubulárním EC, je současně antioxidantem a regulátorem buněčné smrti. HO-1 je skutečně zodpovědná za upregulaci p21, inhibitoru cyklin-dependentní kinázy zodpovědného za zastavení progrese buněčného cyklu, který snižuje apoptózu v tubulární EC [91,92]. Kromě toho exprese HO-1 snižuje ferroptózu v proximálních tubulárních buňkách, neapoptoticky regulovanou buněčnou smrt spojenou s akumulací reaktivních forem kyslíku (ROS) odvozených z peroxidace lipidů [93]. Konečně bylo prokázáno, že HO-1 inhibuje autofagii v proximálních tubulárních buňkách [94].
Celkově jsou proximální tubulární buňky masivně vystaveny induktorům HO-1 v patologických kontextech (filtrace hemoglobinu, myoglobinu, komplexy hemopexin-hem; ischemie, filtrace toxických produktů nebo léků atd.) a spoléhají na HO{{2 }} pro jejich ochranu, ale HO-1 je také ukazatelem tubulárního napětí a zranění, když je jejich schopnost adaptace přemožena.
3.4.2. Distální tubul
Distální tubulární EC podél dřeně, zejména v tlustém, vzestupném rameni Henleovy kličky (mTAL) a distálním stočeném tubulu (DCT), se podílejí na koncentraci a ředění moči a udržování hladiny homeostatických solí a rozpuštěných látek. vyjadřující různé kanály specifické pro jejich lokalizaci a buněčný subtyp. Během reabsorpce vody je koncentrace toxinů (zejména hemu) mnohem vyšší v distálních segmentech nefronu. Vzhledem k nízkému parciálnímu tlaku kyslíku podél peritubulárních kapilár jsou tyto distální tubulární EC zvláště citlivé na hypoxii a spoléhají více na anaerobní, glykolytickou produkci ATP než proximální buňky. Distální tubuly mají větší schopnost přežít a adaptovat se na hypoxický stres [95], jsou méně citlivé na buněčnou smrt, zejména po ischemickém poškození [96].
Distální tubuly, stejně jako proximální tubuly, pouze slabě exprimují HO-1 na bazální úrovni; při stimulaci je však její indukce hemem zpochybněna [88]. (Zajímavé je, že HO-2 může být zesílen hemem v distálních tubulech [97].) Role HO- 1 v distálních tubulech však ještě není plně objasněna, protože jeho exprese byla také spojena se zlepšeným renální funkce po ischemii/reperfuzi u kadaverózní transplantace dárce [98] a také u CKD [99]. To může souviset s regenerační funkcí buněk distálního tubulárního epitelu, ale k lepšímu popisu vztahu mezi HO-1 a funkcemi buněk distálního tubulárního epitelu jsou zapotřebí další studie.
Závěrem lze říci, že ačkoli chybí údaje týkající se distálních tubulů, některé důkazy naznačují, že zvýšená exprese HO-1 by mohla poskytnout ochranu EC distálních tubulů.