

Metabolomické profilování založené na NMR pro zachycování radikálů a vlastnosti proti stárnutí Část 2
Jun 06, 2022
Prosím kontaktujteoscar.xiao@wecistanche.comPro více informací
2.5. Klasifikace bylinných extraktů analýzou hlavních složek
Variace metabolitů mezi listy testovaných bylin byla dále analyzována pomocí multivariační analýzy dat (MVDA). Principal component analysis (PCA), metoda rozpoznávání vzorů, je MVDA bez dozoru, která poskytuje velké porozumění asociaci mezi vzorky. Grafy PCA skóre ukázaly separaci bylin do shluků, zatímco diagramy zatížení zvýraznily metabolity, které separaci zajišťují [85,86]. Model PCA vykazoval dobrou kondici (R2X=0.997) a vysokou předvídatelnost (Q2=0.993), přičemž odchylka mezi R2X(cum) a Q2(cum) byla menší než 0 .3, což naznačuje, že každý z bylinných extraktů stejně a rovnoměrně přispěl k oddělení pozorované skupiny. Toto pozorování bylo v souladu s Wheelockem et al. [87].

Graf skóre analýzy hlavních složek ukázal, že vybrané byliny byly rozděleny do dvou shluků bez jakýchkoliv pozoruhodných odlehlých hodnot, jak je znázorněno na obrázku 4A. Hlavní složka (PC)1 vykazovala největší variaci vzorku, poté následovala PC2. PC1 a PC2 přispěly k procentuálnímu rozptylu ve výši 29,7 procenta a 24,9 procenta. Proto byla těmito počítači popsána celková odchylka asi 54,6 procenta. Výsledky z grafu nanášecí kolony odhalily metabolity zodpovědné za separaci bylin na pozitivní stranu PC1 (V.negundo a C.longa) a negativní stranu PC1 (P. minus, P. indica, O.javanica a C. caudatus) (obrázek 4B).

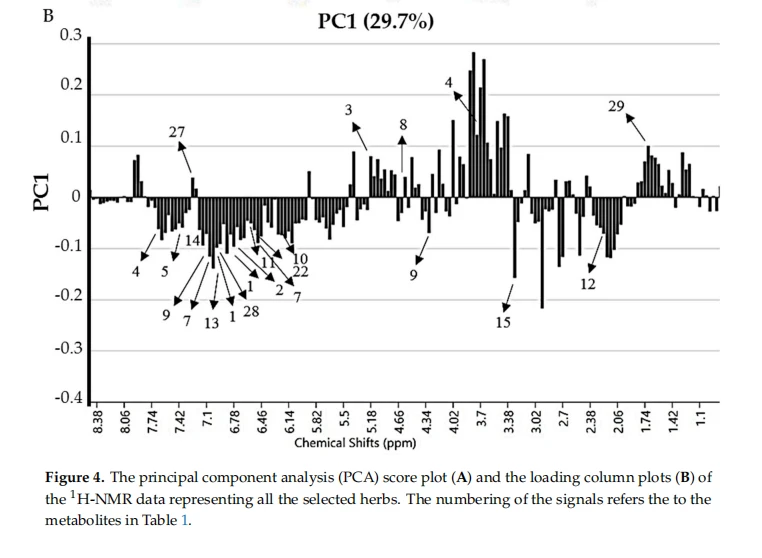
Data z grafu nanášecí kolony PC1 odhalila, že fenolické sloučeniny, zejména skupina flavonoidů a fenolové kyseliny, byly zodpovědné za separaci vybraných bylin. Kvercetin (1), kvercetin-3-O-rhamnosid (2), kvercetin-3-O-glukosid (3), kvercetin-3-O-glukuronid (4), kvercetin-3- O-arabinofuranosid (5), rutin (6), deriváty mvricetinu (7), katechin (8), epikatechin (9), isorhamnetin (10), astragalin (11), kyselina chlorogenová (12), kyselina gallová (13), obsahy kyseliny kumarové (14), kyseliny askorbové (15), kyseliny mravenčí (21), kyseliny fumarové (22), 3-methylxanthinu (26) a apigeninu (28) byly většinou vyšší u P. minus, P. indica , C. caudatus a O.javanica, protože se nacházely na negativní straně pozemku. Naproti tomu V.negundo a C.longa se od ostatních bylin odlišovaly přítomností serotoninu (27) a D-limonenu (29) v jejich extraktech.
2.6. Korelace mezi bioaktivitami a metabolity pomocí parciální analýzy nejmenších čtverců (PLS)
Aby bylo možné porozumět asociaci mezi naměřenými bioaktivitami a metabolity nalezenými v testovaných bylinách, byla implementována PLS, jako kontrolovaná metodika MVDA, aby korelovala data nezávislých proměnných (NMR chemický posun metabolitů) s daty závislých proměnných, které byly inhibice testů DPPH, ABTS a ORAC, stejně jako antielastázové a antikolagenázové aktivity. Tato metodika byla použita, protože PLS má velký úspěch v propojení testovaných bioaktivit s metabolity, a tak může poskytnout model pro predikci [88]. Prostřednictvím analýzy PLS mohl být stanoven vztah mezi biologickými aktivitami, jako jsou aktivity zachycující radikály a vlastnosti proti stárnutí, s metabolity ve vzorcích. Proto by mohly být navrženy metabolity, které byly zodpovědné jako bioaktivní markery.
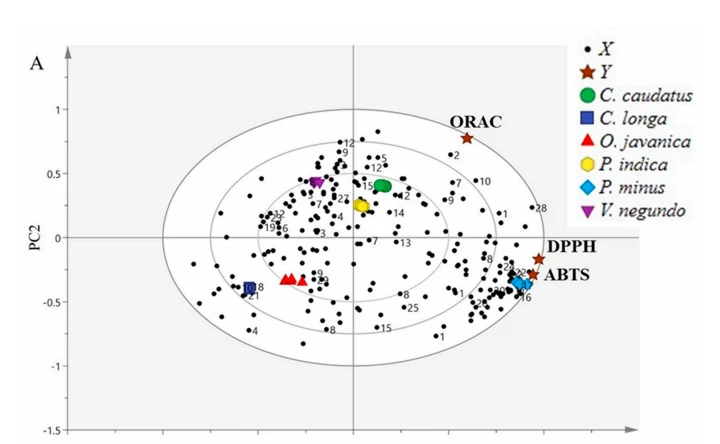
Biplot je směs skóre a grafů zatížení vyplývající z analýzy PLS, jak uvádí Mediani et al. [80]. Částečný biplot nejmenších čtverců pro aktivitu vychytávání radikálů (obrázek 5A) a vlastnosti proti stárnutí (obrázek 5B) ukázal, že všechny vzorky byly dobře odděleny a shluky bez výrazných odlehlých hodnot. PC1 oddělil listy P. minus, C.caudatus a P. indica od V. negundo, O.jaoanica a C.longa. Na základě aktivit zachycujících radikály a anti-aging vlastností biplotů model prezentoval dobré hodnoty fitness (R'Y) {{10}}}.988 a 0.966, v daném pořadí. Mezitím byla předvídatelnost (Q4) pro aktivity pohlcující radikály a vlastnosti proti stárnutí na 0,984 a 0,951, v tomto pořadí.
Jak ukazuje PLS biplot aktivit vychytávání radikálů (obrázek 5A), bioaktivity (DPPH, ABTS a ORACassay) byly zaměřeny na pozitivní stranu biplotu, což byly nejaktivnější oblasti a nejblíže k P.minus, P. indica a C. caudatus. Naproti tomu V. negundo, O.javanica a C. longa byly zaměřeny na negativní strany biplotu, které byly považovány za nejméně aktivní oblasti a byly dále od testů DPPH, ABTS a ORAC, a vykazovaly negativní korelaci s bioaktivitami. V této situaci se P. mimus, P. indica a C. caudatus seskupily vedle nejméně aktivních bylin, což naznačuje, že tyto byliny vykazovaly silnější účinek pohlcující radikály, což naznačuje, že tyto bylinné extrakty mohly obsahovat vyšší hladiny fenolických látek. sloučeniny. Mezi třemi nejaktivnějšími bylinami bylo zjištěno, že P. minus silněji koreluje s testem DPPH a ABTS, následovaným testem ORAC.
Toto zjištění bylo v souladu s výsledky in vitro aktivit zachycujících radikály, které byly provedeny. Výsledky ukázaly, že P. minus ve srovnání s jinými bylinami vykazoval silný účinek pohlcování volných radikálů. Výsledky tedy odhalily, že P. minus je nejaktivnější bylina pro eradikátor reaktivních forem kyslíku. Významné sekundární metabolity, které přispěly k aktivitě vychytávání radikálů P. minus, byly identifikovány jako kvercetin, kvercetin-3-O-rhamnosid, katechin, isorhamnetin, astragalin a apigenin.oteflavonoidVšechny tyto metabolity byly umístěny blíže k P. minus a také k DPPH a ABTS radikálovým testům. Předchozí studie Mediani et al.[80] také zjistili, že lyofilizovaný vzorek rostlin vykazoval vyšší množství -glukózy, -glukózy, katechinu a kyseliny chlorogenové, což mohlo přispět k silné schopnosti byliny pohlcovat radikály DPPH. K vysokému účinku P.minus na vychytávání radikálů však mohou přispívat také neidentifikované metabolity v extraktu.

Podobná zjištění byla také zjištěna pro vlastnosti proti stárnutí. Obrázek 5B představuje biplot získaný z PLS vlastností proti stárnutí. Bioaktivity (antielastázové a antikolagenázové aktivity) byly promítnuty na pozitivní straně biplotu, což byla nejaktivnější oblast a byla blíže P.minus, P. indica a C.caudatus. Naproti tomu V.negundo, O.javanica a C.longa byly zaměřeny na negativní stranu biplotu, která byla považována za nejméně aktivní oblast a byla dále od antielastázových a antikolagenázových aktivit. To ukázalo negativní nebo slabší korelaci s bioaktivitami. V této situaci byly P.mimus, P.indica a C. caudatus shluky odděleny od nejméně aktivních bylin, což ukazuje, že tyto bylinné extrakty vykazovaly větší inhibici elastázy a kolagenázy. Mezi třemi nejaktivnějšími bylinami bylo opět zjištěno, že P. minus má silnou korelaci s těmito vlastnostmi proti stárnutí ve srovnání s ostatními bylinami.
Toto zjištění bylo v souladu s výsledky in vitro o vlastnostech proti stárnutí, které byly provedeny dříve. Výsledky ukázaly, že P.minus byla nejaktivnější bylina pro inhibici enzymů elastázy a kolagenázy. Významné sekundární metabolity, které přispěly k vlastnostem P. minus proti stárnutí, byly identifikovány jako kvercetin, kvercetin-3-O-rhamnosid, deriváty myricetinu, katechin, isorhamnetin, astragalin a apigenin. Jiné metabolity, jako je -glukóza, -glukóza, kyselina fumarová a mastná kyselina, mohou být také zodpovědné za biologické aktivity. Všechny tyto metabolity byly umístěny blíže k P. minus a k antielastázovým a antikolagenázovým aktivitám.
Cistanche může proti stárnutí
Rozlišení těchto vybraných bylin bylo v souladu se vzorky s vysokou aktivitou vychytávání radikálů. minus, P.India a C.caudatus, u kterých se očekávalo, že budou odlišeny od ostatních kvůli jejich vysoké koncentraci sekundárních metabolitů, zejména flavonoidů. Přítomnost těchto fenolických sloučenin také přispívá k větší inhibiční aktivitě elastázy a kolagenázy. tyto bylinky [67-79,89-92].
Příspěvek bioaktivních sloučenin rostlinných extraktů ke schopnosti pohlcovat volné radikály a anti-aging aktivitě byl dokumentován různými studiemi [66,72,75,79,92-101]. Kromě toho bylo prokázáno, že metabolity, jako jsou flavonoidy (kvercetin, kempferol, myricetin, epikatechin a katechin) a další fenoly, jako je resveratrol a prokyanidin B2, významně inhibují elastázu a kolagenázu [69-71,79].
V této studii byly identifikovány a zhodnoceny signály metabolitů pro různou důležitost v hodnotách projekce (VIP), aby se získaly nejvýznamnější metabolity, které korelovaly s testovanými bioaktivitami. To bylo provedeno za účelem zvýšení integrity zde prezentovaných výsledků, které zkoumaly diskriminační potenciál identifikovaných metabolitů.puritans vitamín CGenerally, the metabolites signal with VIP>{{0}}.5 byl vzat v úvahu jako významný pro diskriminaci [102]. V této studii mohly být všechny metabolity přispívající k aktivitám pohlcujícím radikály a vlastnostem proti stárnutí klasifikovány jako významné rozlišující metabolity, protože jejich hodnoty VIP byly vyšší než 1,0 (tabulka 2). Model dvou PLSbiplotů byl validován pomocí 100 náhodných permutací, aby se potvrdila validita (R2) a prediktivní (Q2) schopnosti původního modelu s několika modely ve srovnání s dobrou shodou. R2 ilustroval, že modelová zdatnost byla významná a vysvětlila stupeň Y proměnných v modelu, zatímco Q2 nabízela modelovou prediktivní kvalitu podobnou té, kterou uvádí Eriksson et al. [103].

Generally, when the values of R2 and Q² are nearing 1, it reflects an improved presentation of the model in relation to goodness of fit and predictive quality [80]. In this study, R2 and Q2 values for both of the PLS models fell in the range of 0.951-0.988, which indicated outstanding goodness of fit(R2Y(cum)>0.8)and superior predictive ability (Q2(cum)>0.8). Výsledky ukázaly, že všechny průsečíky osy Y R< and="" q-="" for="" the="" assays="" in="" radical="" scavenging="" activities="" and="" anti-aging="" properties="" were="" within="" the="" limits="" of=""><0.3 and=""><0.05.>sistancheHodnoty zachycení R2 a Q2 byly v rozsahu 0.0367-0.0872 a -0.444 až -0.492, v tomto pořadí, což naznačuje, že oba modely PLS byly platné a nevykazoval přetížení. Proto mohly být tyto dva modely PLS kategorizovány jako modely s dobrým výkonem a tato zjištění zvýšila spolehlivost modelů.
2.7. Relativní kvantifikace sekundárních metabolitů
Relativní kvantifikace některých sekundárních metabolitů, které byly identifikovány u vybraných bylin, je znázorněna na obrázku 6. Tyto metabolity byly nalezeny většinou vyšší u nejaktivnějších bylin, jako je P. minus, byly umístěny na pozitivní straně biplotů, a byly blíže téměř všem testovaným biologickým aktivitám.co je cistancheTyto výsledky odhalily, že sekundární metabolity, zejména ze skupiny flavonoidů, které jsou přítomny ve vysokých množstvích v P. minus, mohly přispět k eradikátoru volných radikálů a vlastnostem proti stárnutí této byliny?

Při srovnání různých struktur flavonoidů, které mohly přispět k jejich účinnosti, bylo zjištěno, že hydroxylační vzor v B-kruhu může být jedním z důležitých faktorů pro inhibiční účinek metabolitů na aktivitu enzymů stárnutí[80]. . Sim a spol.[104] také odhalili, že jak na úrovni proteinu, tak na úrovni mRNA, inhibiční účinek těchto flavonoidů zesílil s rostoucím počtem skupin v B-kruhu a zkoumali asociaci struktury a aktivity některých flavonoidů na MMP-1 genová exprese v lidských dermálních fibroblastech ozářených UV zářením.
3. Materiály a metody
3.1. Chemikálie a činidla
Deuterovaný methanol-d4(CH3OH-d4), nedeuterovaný KH2P04, oxid deuterium sodný (NaOD), sodná sůl kyseliny trimethylsilylpropionové-d4 (TSP), ethanol a methanol byly dodány společností Merck Millipore International (Darmstadt, Německo). Kvercetin, fosfátový pufr, 2,2-difenyl-1-pikrylhydrazyl (DPPH),2,2-azinobis(3-ethyl-benzothiazolin-6-sulfonová kyselina)[ABTS ],Trolox,persíran draselný,2,2'-azobis(2-amidinopropan)[AAPH, epigalokatechin galát (EGCG), pufr HEPES, enzymy elastázy,N-methoxysukcinyl-Ala-Ala-Pro-Chloro,N -Methoxysukcinyl-Ala-Ala-Pro-Val-p-nitroanilid a oxid deuterium (D20) byly dodány společností Sigma (Aldrich, Německo).
3.2. Rostlinný materiál a odběr vzorků
Čerstvé listy O.jacanica, P. minus a C.longa byly shromážděny od Felda Sungai Koyan Satu, Raub a Pahang. Listy V.negundo byly získány z Institute of Bioscience, Universiti Putra Malaysia. Čerstvé listy P. indica byly sklizeny v University Agriculture Park, Universiti Putra Malajsie a čerstvé listy C. caudatus byly sbírány v Agricultural Institute, Serdang, Selangor. Poukazový vzorek těchto bylin byl umístěn v herbáři, Institute of Bioscience, Universiti Putra Malaysia, a každý vzorek byl validován botanikem.Čistota proti stárnutíVšechny listy byly sklízeny důsledně ráno, za slunečných dnů, aby byla zajištěna spolehlivost obsahu metabolitů. Plocha na otevřeném poli pro každou bylinu byla rozdělena do šesti částí a každý vzorek byl odebrán z každého segmentu v šesti replikátech.
3.3. Příprava vzorku
Po sklizni byly čerstvé listy omyty pod tekoucí vodou z vodovodu, aby se odstranily všechny zbytky, vysušeny laboratorním hedvábným papírem a okamžitě zmrazeny tekutým dusíkem, aby se zastavily všechny enzymatické reakce a uchovaly se metabolity před lyofilizací. Vzorky pak byly sušeny v LABCONCO (Kansas City, MO, USA) lyofilizační sušárně, dokud konzistentní hmotnost a obsah vlhkosti nedosáhly pod 10 procent. Všechny vysušené vzorky byly rozemlety pomocí laboratorního mixéru na jemný prášek a prosety pomocí laboratorního testovacího síta (ENDECOTTS LTD. Londýn, Anglie) o velikosti 300 um, aby se získala jednotná velikost. Práškové vzorky byly vakuově zabaleny do hliníkového obalu, aby byly chráněny před světlem a vlhkostí, a před analýzou byly skladovány při -80 stupních.
3.4. Extrakce
Extrakční postup popsaný Mediani et al. [105] byl následován s některými úpravami. Stručně řečeno, 10 g každého práškového vzorku bylo ponořeno do 100 ml 60% ethanolu v jantarové kuželové baňce a sonikováno po dobu 1 hodiny pomocí ultrazvukového sonikátoru (WiseClean, model WUC-D10H, Soul, Korea) při kontrolované teplotě (pod 40 stupňů) . Vzorky byly filtrovány přes filtrační papír Whatman č. 1 a zbytky byly dvakrát reextrahovány a filtrovány po dokončení první extrakce. Extrakty byly poté spojeny a zakoncentrovány pomocí rotační odparky ve vakuu při 40 stupních. Odvozené viskózní látky byly poté lyofilizovány pomocí lyofilizačního zařízení LABCONCO, aby bylo zajištěno úplné odstranění vody, a skladovány při -80 stupních až do dalšího použití. Nakonec byly vysušené surové extrakty zředěny na potřebné koncentrace pro všechny provedené výzkumy.
3.5. DPPH Radical Scavenging Activity
Aktivita vychytávání radikálů vzorků byla stanovena podle techniky vyvinuté Kongem a kol.[106], která byla vyvinuta z modifikované metody Brand-Williamse a kol. [107]s drobnými úpravami. Stručně, 50 ul extraktů vzorků v methanolu v různých koncentracích (0 až 500 ug/ml) bylo přidáno s 195 ul čerstvě připraveného 0,2 mM methanolického2,2-difenyl-1-pikrylhydrazylového (DPPH) roztoku a skladováno. Všechny testovací vzorky byly připraveny na 96jamkové destičce. Proces odbarvování byl zaznamenán při 515 nm pomocí spektrofotometru (Biotek EL 800 microplate reader, Bio-Tek, Winooski, VT, USA) po 60 minutách inkubace ve tmě a porovnán s pozitivní kontrolou a slepými vzorky. Procento aktivity vychytávání radikálů bylo měřeno podle následující rovnice:

kde A kontrola je absorbance kontroly bez rostlinných extraktů a Simple je absorbance rostlinných extraktů.
Rostlinné extrakty nebo koncentrace pozitivní kontroly, které zachytily 50 procent stabilních volných radikálů DPPH, byly vypočteny jako IC s použitím lineárního grafu procenta aktivity vychytávání radikálů proti
rostlinné extrakty/pozitivní kontrolní koncentrace. Nižší IC50 indikuje vyšší antioxidační aktivitu. Všechny experimenty byly provedeny v šesti replikátech s Troloxem a quercetinem jako pozitivními kontrolami.
3.6. ABTS Radical Scavenging Assay
Pro test ABTS pohlcování radikálů byla analýza provedena podle postupu popsaného Arnao et al.[108] s některými úpravami. Připravené zásobní roztoky byly 7 mM roztok ABTS plus a 2,45 mM roztok persíranu draselného. Za účelem přípravy pracovního roztoku byly dva zásobní roztoky smíchány ve stejném množství a ponechány reagovat ve tmě po dobu 16 hodin při teplotě místnosti. Poté byl pracovní roztok zředěn destilovanou vodou, aby se získala absorbance 0,700±0,005 jednotek při 734 nm pomocí spektrofotometru (UV{10}}PC spektrofotometr, Shimadzu, Kyoto, Japonsko) a známého jako Řešení ABTS plus. Roztok ABTS plus byl čerstvě připraven pro každý test. Tento roztok ABTS plus (900 μl) byl ponechán reagovat se 100 μl bylinných extraktů po dobu 2 minut. Absorbance byla poté odečtena při 734 nm pomocí spektrofotometru. Byla vyvinuta standardní křivka obsahující 3,1 ug/ml až 50 ug/ml Troloxu a výsledky byly vyjádřeny jako mg Trolox ekvivalentní antioxidační kapacity/g vzorku (mg TEAC/g vzorku).
3.7. ORAC Radical Scavenging Assay
Test ORAC pro měření účinnosti vychytávání peroxylových radikálů byl implementován, jak uvádí Huang et al. [109] pomocí fluorescenční čtečky mikrodestiček FLUOstar OPTIMA (BMG LABTECH, Ortenberg, Německo). Každý bylinný extrakt a Trolox (standard) byly připraveny v 75 mM roztoku fosfátového pufru (PBS) pH 7,4. Do 96-jamkové černé mikrodestičky bylo přidáno celkem 150 μl fluoresceinu (10 nM rozpuštěného v PBS) a následně 25 μl Troloxu, rostlinných extraktů nebo PBS jako slepý pokus. Tyto roztoky byly pipetovány do jamek ve třech opakováních. Mikrodestička byla inkubována po dobu 15 minut při 37 stupních a zakryta víčkem. Fluorescence byla měřena s excitační vlnovou délkou při 458 nm a emisní vlnovou délkou při 520 nm. Signál pozadí byl stanoven měřením každých 90 sekund.
Poté bylo pomocí palubních injektorů zavedeno 25 ul čerstvě připraveného 2,2'-azobis(2-amidinopropanu) (AAPH, 240 mM v PBS). Úpadek fluorescence byl poté měřen až 90 minut za použití stejných vlnových délek excitace a emise. Vyhodnocení bylo provedeno pro plochy pod křivkou pro vzorky (fluorescence versus čas) mínus plocha pod křivkou pro slepý pokus a porovnáno se standardní křivkou (25-400 μM Trolox)). Hodnoty ORAC vztahující se k Troloxu byly vypočteny pomocí rovnice takto:

3.8. Test inhibice elastázy
Inhibiční aktivita elastázy byla stanovena podle techniky popsané v Krause et al.[110], s malými modifikacemi Ndlovu et al. [75]. Jamky na vzorky obsahovaly 25 μl 0,1 M HEPES pufru (pH 7,5), 25 μl bylinného extraktu (100 ug/ml) a 25 μl enzymu elastázy (1 ug/ml). Slepé jamky obsahovaly pouze 75 ul HEPES pufru a negativní kontrolní jamky obsahovaly 50 ul HEPES pufru a 25 ul enzymu elastázy. Pozitivní kontrolní jamky obsahovaly 25 μl pufru HEPES, 25 μl N-methoxysukcinyl-Ala-Ala-Pro-Chloro (10 ug/ml) a 25 μl enzymu elastázy. Kontrolní jamky rozpouštědla obsahovaly 25 ul HEPES pufru, 25 ul 10% methanolu a 25 ul enzymu elastázy. Slepé kontroly pro extrakt z bylin (pro barevné kontroly každého testovaného extraktu) obsahovaly 150 μl pufru HEPES a 25 ul extraktu z bylin. Mikrotitrační destička byla poté inkubována po dobu 20 minut při teplotě místnosti. Následně bylo přidáno 100 ul substrátu (N-methoxysukcinyl-Ala-Ala-Pro-Val-p-nitroanilid, 1 mM). Poté byly destičky inkubovány dalších 40 minut při 25 stupních. Po inkubaci byla odečtena absorbance pomocí spektrofotometru (Biotek EL800 microplate reader) při 405 nm. Procentuální inhibice bylinných extraktů byla vypočtena pomocí následující rovnice:
kde A kontrola je absorbance pufru s elastázou a rozpouštědlem a Atest je absorbance pufru, elastázy a bylinného extraktu nebo N-Methoxysukcinyl-Ala-Ala-Pro-Chloro.
3.9. Test inhibice kolagenázy
Inhibiční aktivita kolagenázy byla provedena podle metody Van-Wart a Steinbrink [111] (1981) s modifikacemi podle Madrone et al. [92]. Test byl proveden v 50 mM TES pufru (pH 7,4 s 0,36 mM CaCl2). Kolagenázový enzym z Clostridium histolyticum (ChC-EC.3.4.23.3) byl připraven v koncentraci 0,8 jednotek/ml (rozpuštěný v TES pufrovém zásobním roztoku). Syntetický substrát N-[3-(2-furyl)akryloyl]-Leu-Gly-Pro-Ala (FALGPA) byl připraven v koncentraci 2 mM v zásobním roztoku TES pufru. Celkový objem 150 μl pro konečnou reakční směs obsahoval 46,3 μl TESpufru, 60 μl FALGPA (0,8 mM FALGPA konečná koncentrace), 18,7 μl enzymu kolagenázy (0,1 jednotek/ml ( konečná koncentrace) a 25 μl extraktu 100 ug/ml). Bylinné extrakty a enzymy v TES pufru byly inkubovány při teplotě místnosti po dobu 15 minut před přidáním substrátu k zahájení chemické reakce. Negativní kontroly byly provedeny s TES pufrem. Po přidání substrátu byla okamžitě odečtena absorbance při 340 nm pomocí spektrofotometru (Benchmark Plus Microplate, Bio-Rad 170-6930, Bio-Rad, Hercules, CA, USA) v 96jamkových mikrotitračních destičkách a kontinuálně měřena pro další 20 min. Pozitivní kontrola byla provedena s použitím epigalokatechin galátu (EGCG) při 12,5 ug/ml. Procentuální inhibice vzorků byla vypočtena pomocí následující rovnice:

kde A kontrola je absorbance TES pufru a Atest je absorbance TES pufru, enzymu kolagenázy a rostlinného extraktu nebo FALGPA.
3.10 Profilování metabolitů pomocí 'H-NMR měření
Profilování metabolitů pomocí H-NMR vybraných bylin bylo provedeno na základě protokolu popsaného Kim et al. [47] s drobnými úpravami. Surové bylinné extrakty (25 mg) byly přeneseny do ml mikrocentrifugační zkumavky. Směs pufru methanol-d4 a KHPO4 v Dao (pH 6.0) obsahující 0,1 procenta sodné soli kyseliny trimethylsilylpropionové (TSP) byla přidána ke vzorkům bylin v celkovém objemu { {10}},7 ml v poměru (1:1). Mikrocentrifugační zkumavky obsahující bylinné extrakty byly poté vortexovány po dobu 1 minuty při pokojové teplotě a následně ultrasonikovány po dobu 15 minut. Poté byla směs centrifugována po dobu 10 min při 5678g, aby se oddělil supernatant od jakýchkoli nerozpustných materiálů. Dále bylo 0,6 ml čirého supernatantu začleněno do NMR zkumavek a podrobeno 'H-NMR analýze. Analýza 'H-NMR byla provedena pomocí 500 MHz Varian INOVA NMR spektrometru (Varian Inc., Palo Alto, CA, USA), který pracoval při frekvenci 499,887 MHz a spektra byla zaznamenávána při 26 stupních. Každé jednotlivé spektrum obsahovalo 64 skenů s dobou akvizice 3,53 min a šířkou 20 ppm. Data byla analyzována pomocí softwaru Chenomx (v.6.2) (Clhenomx Inc., Edmonton, AB, Kanada) k provedení fázování a korekce základní linie s konzistentním nastavením. Multivariační analýza dat byla provedena pomocí softwaru SIMCA (verze 13.0, Umetrics, Umea, Švédsko). 3.11. Sběr 'H-NMR spekter
Sběr H-NMR spekter byl realizován pomocí softwaru Chenomx (v.6.2, Edmonton, AB, Kanada). Všechna spektra byla sestavena z oblasti 0.5-10.0 pprn se stejnými parametry. Parametry zahrnovaly spektrální šířku §0.04, která získala celkem 245 integrovaných oblastí pro každé spektrum NMR. Chemický posun pro vodu a zbytkový methanol-d při δ4.{11}}.90 a δ3.{14}}.35 byly eliminovány. Jednotná sdružená data byla poté podrobena multivariační analýze dat (MVDA).
3.12. Relativní kvantifikace metabolitů
Identifikované metabolity byly zkoumány na jejich relativní kvantifikaci, která byla vypočtena na základě střední plochy píku signálů po spojení LH-NMR spekter.
3.13. Statistická analýza
Všechny výsledky šesti opakování byly vyjádřeny jako průměr ± standardní odchylka. Pro měření aktivit vychytávání radikálů, inhibice aktivit elastázy a kolagenázy a relativní kvantifikaci metabolitů byly provedeny statistické analýzy s použitím Minitab 16 (verze 16, Minitab Inc., State College, PA, USA). Pro zkoumání signifikantních rozdílů mezi průměry s p. 2 byly použity analýzy rozptylu (ANOVA).<0.05 considered="" as="" significantly="" different.="" principal="" component="" analysis="" (pca)="" and="" partial="" least="" square="" (pls)="" from="" the="" multivariate="" data="" analysis="" (mvda),="" were="" implemented="" using="" simca-p="" software(v.="" 13.0,="" umetrics,="" umeå,="" sweden)using="" the="" pareto="" scaling="" method="" after="" the="" binning="" of="" nmr="" spectra="" was="" completed.="" the="" correlation="" between="" metabolites="" components="" and="" ics0="" values="" for="" dpph="" radical="" scavenging="" activity="" was="" converted="" to="" 1/ic5so="" in="" order="" to="" acquire="" the="" same="" trend="" as="" the="" functional="" properties="">
4. závěr
Aplikace H-NMR analýz ve spojení s MVDA byla úspěšná při zkoumání variací v metabolitech vybraných bylin. Graf PCA skóre ukázal zřetelnou separaci bylin podle jejich shluků. Tato studie odhalila, že P. minus měl nejvyšší účinek pohlcování radikálů prostřednictvím testů DPPH a ABTS a vykazoval nejvyšší anti-agingové aktivity. Dva biploty analýzy PLS dále potvrdily tento výsledek, protože byla nalezena silná asociace mezi metabolity identifikovanými v P. minus a testovanými biologickými aktivitami. Mezi aktivní metabolity, o kterých se předpokládá, že přispívají k aktivitám pohlcujícím radikály a vlastnostem proti stárnutí P.minus, patří kvercetin, kvercetin-3-O-rhamnosid, deriváty myricetinu, katechin, isorhamnetin, astragalin a apigenin. Lze tedy předpokládat, že tyto metabolity byly zodpovědné za silný účinek vychytávání radikálů a vysoké anti-aging vlastnosti P. minus. Tyto metabolity byly převážně ze skupiny flavonoidů, zejména flavonoly. Proto lze navrhnout, že metabolity z P. minus by mohly být slibným eradikátorem volných radikálů a inhibitorem enzymů stárnutí, které lze použít pro oddálení příznaků stárnutí a pro léčbu chronických onemocnění spojených se stárnutím. Tato zjištění pomohou stanovit účinnost P. minus jako potenciálního přírodního zdroje látek proti stárnutí a jako přirozeného eradikátoru volných radikálů.
Tento článek je převzat z Molecules 2019, 24, 3208; doi:10.3390/molecules24173208 www.mdpi.com/journal/molecules


