Neuroprotektivní účinky čtyř fenylethanoidních glykosidů na H2O2-indukovaná apoptóza na buňkách PC12 prostřednictvím dráhy Nrf2/ARE
Mar 04, 2022
Kontakt: Audrey Hu Whatsapp/hp: 0086 13880143964 E-mail:audrey.hu@wecistanche.com
Maiquan Li 1, Tao Xu 1, Fei Zhou 1, Mengmeng Wang 1, Huaxin Song 1, Xing Xiao a Baiyi Lu 1,*
1. Úvod
Oxidační stres, což je nerovnováha antioxidační homeostázy, vyvolává peroxidaci lipidů, poškození proteinů a DNA, stárnutí buněk a buněčnou smrt. Tento proces pravděpodobně přispívá k několika neurodegenerativním poruchám, jako je Alzheimerova choroba (AD), Parkinsonova choroba (PD) a ischemie/reperfuze [1]. O peroxidu vodíku (H2O2), který je jednou z hlavních reaktivních forem kyslíku (ROS), je známo, že způsobuje peroxidaci lipidů a poškození DNA [2]. Navíc je H2O2 endogenním zdrojem volných hydroxylových radikálů, které přispívají k úrovni pozadí buněčného oxidačního stresu [3,4]. Terapeutické strategie pro prevenci apoptózy vyvolané oxidativním stresem tedy mohou mít potenciál při léčbě neurodegenerativních onemocnění.
Nukleární faktor erytroidní 2-faktor 2 (Nrf2) je transkripční faktor, který je silně spojen s oxidačním stresem. Aktivace Nrf2 indukuje transkripci mnoha antioxidačních a detoxikačních genů, včetně hemoxygenázy-1 (HO-1), NAD(P)H chinonoxidoreduktázy 1, protizánětlivé [13] a imunomodulační [14 ] bioaktivity. Osmanthusfragrans je běžnou složkou několika asijských potravin a dlouho se konzumuje. Již dříve jsme ukázali, že extrakty z květů O. fragrans zlepšily prostorové učení a paměť, inhibovaly oxidační poškození a vykazovaly neuroprotektivní aktivity při stárnutí vyvolaném d-galaktózou na myším modelu ICR [15]. Salidrosid, akteosid a isoakteosid jsou hlavní odpovědí PhG na antioxidační aktivity extraktů z květů O.fragrans [16].
Studie neuroprotektivního účinku PhG přinesly žádoucí výsledky. Salidrosid významně snížil buněčnou apoptózu buněk PC12, které byly exponovány v MPP plus [17,18]. Akteosid také zmírnil apoptózu indukovanou MPP plus a oxidační stres v buňkách PC12 [19] a poškození buněk SH-SY5Y indukované Ap25-35- [20]. Echinakosid byl zkoumán na apoptóze indukované tumor nekrotizujícím faktorem-a (TNFa) v buňkách SH-SY5Y [21], dopaminergní toxicitě indukované MPTP u myší [22], primárních kulturách krysích kortikálních buněk poškozených glutamátem [23] a { {19}}Poškození buněk PC12 indukované OHDA [24]. Výsledky ukázaly, že PhG vykazovaly cytoprotektivní účinek a jsou potenciálními činidly pro léčbu neurodegenerativních onemocnění. Studie ukázaly, že antioxidační vlastnosti PhGs jsou základem mnoha dalších bioaktivit těchto sloučenin [25]. Nicméně jen málo studií zkoumalo molekulární mechanismus PhG proti oxidační toxicitě.
V naší studii jsme vybrali čtyři typické PhG takto: salidrosid (fenylethanoidní monosacharidy), akteosid (fenylethanoidní disacharidy), isoakteosid (fenylethanoidní disacharidy) a echinakosid (fenylethanoidní trisacharidy). Použili jsme model neuronální smrti s použitím diferencovaných buněk PC12 [26] ke zkoumání ochranného účinku a molekulárního mechanismu PhGs na H2O2-indukovaný buněčný model PC12. Prokázali jsme, že PhGs aktivovaly dráhu Nrf2/ARE vazbou na Kelch-like ECH-asociovaný protein 1 (Keap1). Tento proces upreguloval antioxidační enzymy a zvýšil odolnost buněk PC12 vůči oxidativnímu stresu.
Léčba neurodegenerativních onemocnění:PhGs z cistanche
2. Výsledky
2.1. PhGs suprimovaná H2O2-cytotoxicita indukovaná v buňkách PC12
Byly testovány cytotoxické účinky H2O2 a PhGs (0.1,1,5 a 10卩g/ml) na buňky PC12. Výsledky ukázaly, že H2O2 indukoval ztrátu životaschopnosti buněk PC12 způsobem závislým na koncentraci a času (obrázek 1A). Vystavení buněk PC12 200 H2O2 po dobu 2 hodin vedlo k životaschopnosti buněk 57,4 procenta. Předběžné ošetření buněk PhGs při 0.1, 1, 5 a 10 昭/ml nemělo žádný vliv na životaschopnost buněk (obrázek 1B) a výrazně chránilo buňky PC12 před poškozením vyvolaným H2O2- zlepšením životaschopnost buněk jako 9.549-22 0,141 procenta, 12.{34}},289 procenta, 1.470-9,289 procenta a 3.411-11,441 procenta, v tomto pořadí ( Obrázek 1C). Předběžné ošetření salidrosidem (0,1 ^g/ml), isoakteosidem (0,1, 1, 5 a 10 ug/ml), echinakosidem (0,1, 1 a 5 ug/ml) však neukázalo žádný významný rozdíl u buněk indukovaných HzOz zranění. Předběžné ošetření buněk PhGs také zlepšilo morfologické vlastnosti indukované H2O2 (obrázek 1D).

Obrázek 1.PhGs potlačovaly H2O2-indukovanou cytotoxicitu v buňkách PC12. Životaschopnost buněk byla detekována MTT testem. Cytotoxický účinek H2O2 (A) a PhGs (B) v různých koncentracích na buňky PC12. (C) PhGs zeslabily H2O2-indukované snížení životaschopnosti buněk. Buňky PC12 byly inkubovány s PhGs (0.1 a 10 mg/ml) po dobu 24 hodin a poté inkubovány s 200 pM H2O2 po dobu dalších 2 h poté, co byly PhG odstraněny. (D) Morfologické pozorování. Buňky po léčbě byly pozorovány mikroskopem s fázovým kontrastem (x100), CK: normální skupina, H2O2: skupina léčená H2O2, HL: skupina léčená nízkou dávkou salidrosidu, HH: skupina léčená vysokou dávkou salidrosidu, ML: skupina léčená nízkou dávkou akteosidu, MH: skupina léčená vysokými dávkami akteosidu, IL: skupina léčená nízkou dávkou isoakteosidu, IH: skupina léčená vysokou dávkou isoakteosidu, SL: skupina léčená nízkou dávkou echinakosidu, SH: skupina léčená vysokou dávkou echinakosidu. ** p < 0,01="" oproti="" neléčené="" skupině;="" #="" p="">< 0,05="" oproti="" skupině="" léčené="" h202;="" ##="" p="">< 0,01,="" oproti="" skupině="" léčené="">
2.2. PhGs potlačená H2O2-indukovaná intracelulární akumulace ROS, peroxidace lipidů (MDA) a zvýšená aktivita superoxiddismutázy (SOD) v buňkách PC12
Vystavení buněk PC12 200 pM H2O2 po dobu 2 hodin zvýšilo hladiny ROS, obsah MDA a snížilo aktivitu SOD (obrázek 2). Předběžná léčba PhGs snížila hladinu ROS, salidrosidu a akteosidu a vysoká dávka předléčby isoakteosidem a echinakosidu významně snížila hladinu ROS (p < 0,01).="" předběžné="" ošetření="" salidrosidem="" nevykazovalo="" žádný="" účinek="" na="" obsah="" mda,="" ale="" předléčení="" akteosidem="" významně="" zeslabilo="" obsah="" mda="" (p="">< 0,05).="" předběžné="" ošetření="" isoakteosidy="" a="" echinakosidy="" významně="" zeslabilo="" obsah="" mda="" na="" vyšší="">
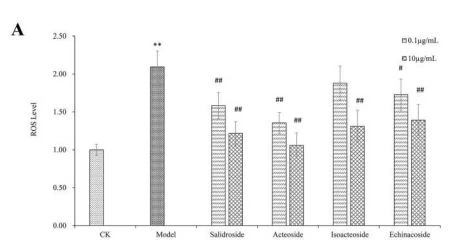
Obrázek 2PhG blokovaly akumulaci ROS a MDA a zvyšovaly aktivity SOD v buňkách PC12. Buňky PC12 byly inkubovány s PhGs (0.1 a 10 4g/ml) po dobu 24 hodin a poté inkubovány s 200 |^M H2O2 další 2 hodiny po odstranění PhG. (A) PhG blokovaly akumulaci ROS a MDA. (B) PhG blokovaly akumulaci MDA. (C) PhGs zvýšily aktivity SOD. CK: normální skupina, Model: skupina léčená H2O2, Salidroside: skupina léčená salidrosidem, Acteosid: skupina léčená akteosidy, Isoacteosid: skupina léčená isoakteosidy, Echinakosid: skupina léčená echinakosidem. ** p < 0,01="" oproti="" neléčené="" skupině;="" #="" p="">< 0,05,="" versus="" skupina="" léčená="" h202,="" ##="" p="">< 0,01,="" versus="" skupina="" léčená="">
2.3.PhGs reverzní H2O2-indukovaná apoptóza v buňkách PC12
Ošetření H2O2 (200 |1M) po dobu 2 hodin významně zvýšilo apoptózu v buňkách PC12 s celkovou mírou apoptózy až 16,02 procent (obrázek 3). Předběžné ošetření PhGs (0,1 a 10 µg/ml) po dobu 24 hodin však snížilo rychlost apoptózy způsobem závislým na koncentraci (p < 0,01).="" salidrosid,="" akteosid,="" isoakteosid="" a="" echinakosid="" výrazně="" snížily="" procento="" buněčné="" apoptózy="" o="" 4.750-6,627="" procent="" ,="" 4.413-5,800="" procent="" ,="" 6.593-10,047="" procent="" a="" 1.{26}="" 0,510="" procent,="">
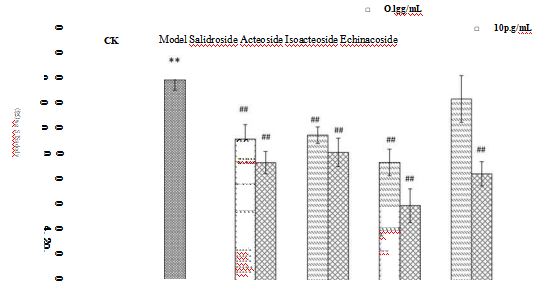
Obrázek 3. PhGs zvrátily H2O2-indukovanou apoptózu v buňkách PC12. Buňky PC12 byly inkubovány s PhGs (0.1 a 10 卩g/ml) po dobu 24 hodin a poté inkubovány s 200 pM H2O2 další 2 hodiny po PhG byly odstraněny. Poté byla měřena apoptóza průtokovou cytometrií s použitím fluorescenční sondy PI/FITC. CK: normální skupina, Model: skupina léčená H2O2, Salidroside: skupina léčená salidrosidem, Acteosid: skupina léčená akteosidy, Isoacteosid: skupina léčená isoakteosidy, Echinakosid: skupina léčená echinakosidem. ** p < 0,01="" oproti="" neléčené="" skupině;="" ##="" p="">< 0,01,="" oproti="" skupině="" léčené="">
2.4. PhGs Reverse H2O2-indukovaná downregulace proteinové exprese HO-1, NQO1, GCLC a GCLM
HO{{0}}, NQO1 a glutamát-cysteinligáza (GCL) jsou důležité buněčné antioxidační enzymy a HO-1, NQO1 a katalytické nebo modifikované podjednotky GCL (GCLC nebo GCLM) jsou Nrf2-regulované downstream geny [27]. Po léčbě byla pozorována proteinová exprese HO-1, NQO1, GCLC a GCLM. Byl nalezen zřejmý rozdíl mezi proteinovou expresí HO-1 a NQO1 s nebo bez H2O2 (obrázek 6A-C) (p < 0.01).="" phgs="" (0.1="" a="" 10="" p^g/ml)="" zvrátily="" h2o2-indukovanou="" downregulaci="" proteinové="" exprese="" ho-1="" (kromě="" salidrosidu="" na="" {{32}="" },1="" pg/ml),="" nqo1="" (kromě="" akteosidu="" při="" 0,1="" pg/ml)="" (p="">< {{40}}.01).="" h2o2="" také="" snižovala="" expresi="" proteinů="" gclc="" a="" gclm="" (p="">< 0.05)="" (obrázek="" 6a,d,e).="" phgs="" (0,1="" a="" 10="" pg/ml)="" zvrátily="" h2o2-indukovanou="" downregulaci="" proteinové="" exprese="" gclc="" (kromě="" echinakosidu="" v="" 0,1="" pg/ml)="" (p="">< 0,01)="" a="" gclm="" (kromě="" salidrosidu="" v="" 0,1="" pg/ml)="" (p="">< 0,01).="" poté="" byly="" chemické="" inhibitory="" ho-1="" použity="" k="" dalšímu="" hodnocení="" role="" antioxidačních="" enzymů="" při="" regulaci="" ochrany="" phgs="" proti="" cytotoxicitě="" vyvolané="" h2o2-.="" phgs="" (0,1="" a="" 10="" pg/ml)="" zabránily="" h2o2-indukované="" cytotoxicitě,="" ale="" takový="" ochranný="" účinek="" byl="" zvrácen="" inhibitorem="" ho-1="" znpp="" (p="">< 0,01)="" při="" 20="" pm="" (obrázek="" 6f,="" p="">< 0,01)="">
2.5. Keap1 Expression and Molecular Docking Analysis
Za fyziologických podmínek Keap1 působí jako represorový protein Nrf2 vazbou na doménu Neh2 Nrf2 a zacílením Nrf2 na E3 ubikvitin ligázu založenou na Cul3- pro ubikvitinaci a následnou degradaci proteazomem 26S [28]. Vazebná kapacita ke Keap1 PhGs byla hodnocena analýzou molekulárního dokování, aby se prozkoumal mechanismus jejich antioxidačního účinku.
Antioxidační účinek: CistanchePhGs
3. Diskuse
Zkoumali jsme neuroprotekci PhGs na H2O2 indukovanou cytotoxicitu v buňkách PC12. Výsledky ukazují, že předléčení PhGs významně potlačilo HzOz-indukovanou cytotoxicitu, zeslabilo intracelulární hladinu ROS, zlepšilo hladinu intracelulárních antioxidačních enzymů a nakonec zvrátilo H2O2-indukovanou cytotoxicitu v buňkách PC12. Kromě toho PhG zvýšily transkripční aktivaci Nrf2, zvrátily HzOz-indukovanou downregulaci proteinové exprese HO-1, NQO1, GCLC a GCLM. Kromě toho PhGs vykazovaly potenciální interakci s vazebným místem Nrf2 v proteinu Keap1.
Při poškození buněk PC12 vyvolaném H2O2- zvýšila peroxidace lipidů, což se týká oxidativní degradace lipidů, propustnost membrán, což vedlo k poškození buněk [29]. Tvorba MDA je široce používána jako index peroxidace lipidů [30]. H2O2 zvýšila produkci ROS a vyčerpala antioxidační obranné enzymy, jako je SOD, kataláza a GPx. Tento proces vede k oxidativnímu stresu [31], který hraje klíčovou roli v příčině a progresi většiny neurodegenerativních poruch. V souladu s předchozími studiemi jsme pozorovali zvýšenou hladinu ROS, snížené intracelulární antioxidační enzymy a zvýšenou apoptózu buněk PC12 po léčbě H2O2. Předběžné ošetření PhGs významně zmírnilo HzOz-indukované zvýšení intracelulárního ROS, zlepšilo intracelulární antioxidační enzymy a nakonec zvrátilo HzOz-indukovanou cytotoxicitu v buňkách PC12.
Kuang a kol. [32] uvedli, že echinakosid prokázal významný neuroprotektivní účinek na H2O2-indukovanou cytotoxicitu v buňkách PC12 prostřednictvím mitochondriální apoptotické dráhy. V této studii jsme zjistili, že echinakosid, salidrosid, akteosid a isoakteosid vykazovaly neuroprotektivní účinky zvýšením antioxidační aktivity buněk PC12, protože zvýšily transkripční aktivaci Nrf2 a upregulovaly downstream proteinovou expresi HO-1, NQO1, GCLC a GCLM. Četné studie jasně prokázaly, že aktivace cílových genů Nrf2, zejména HO-1, v astrocytech a neuronech silně chrání před zánětem, oxidačním poškozením a buněčnou smrtí. Uvádí se, že HO-1 systém je velmi aktivní v centrálním nervovém systému a jeho modulace zřejmě hraje klíčovou roli v patogenezi neurodegenerativních poruch [33]. Nedávné studie také objasnily roli Nrf2 v progresi a riziku PD [9] a Keap1 jako účinného cíle pro reaktivaci Nrf2 u AD [34]. Výsledky podporují nové důkazy pro Nrf2 jako terapeutický cíl u neurodegenerativních onemocnění.
Molekulární dokovací analýza ukázala, že PhG se mohly vázat na Keap1 s následujícími vazebnými kapacitami: echinakosid > isoakteosid > akteosid > salidrosid. V souladu s těmito výsledky vedlo předběžné ošetření PhGs k jaderné translokaci Nrf2 s následující expresí Nrf2 v jádře: echinakosid > isoakteosid * akteosid > salidrosid. Předpokládali jsme, že počet glykosidů ovlivnil možný způsob vazby PhGs a Keap1 a způsob vazby dále způsobil uvolnění Nrf2 z Keap1. Tento proces vedl k aktivaci Nrf2 a následných genů a nakonec chrání buňky PC12 před oxidačním stresem vyvolaným H202 -.
Neuroprotektivní účinky cistanchePhGs
4. Materiály a metody
4.1. Chemické sloučeniny a činidla
Salidrosid (č. CAS {{0}}), akteosid (č. CAS 61276-17-3), isoakteosid (č. CAS 61303-13-7) a echinakosid (č. CAS {{3} }) byly zakoupeny od YYuanye Biotechnology Company (Shanghai, Čína). PhGs byly rozpuštěny v PBS za vzniku 10 mg/ml zásobního roztoku, který byl skladován při -20 stupni. H202 byl zakoupen od Aladdin® (Shanghai, Čína). Médium RPMI-1640 a fetální bovinní sérum byly zakoupeny od Hyclone (Logan, UT, USA) a 0,5% trypsin EDTA, penicilin a streptomycin byly zakoupeny od Keyi (Hangzhou, Čína). MDA, diagnostické soupravy SOD, MTT a DCFH-DA byly zakoupeny od Beyotime Institute of Biotechnology (Nanjing, Jiangsu, Čína). Sada pro dvojité barvení Annexin V-FITC/PI byla zakoupena od Solarbio Life Sciences (Peking, Čína). Protilátky proti Nrf2, Histon H3, Keap1, HO-1, NQO1, GCLC, GCLM a p-aktin, IgG proti myšímu křenovému peroxidu (HRP) a proti králičí HRP-IgG byly zakoupeny od společnosti Abcam (Londýn, Velká Británie). Inhibitory HO-1 a ZnPP byly zakoupeny od Sigma Chemical Co. (St. Louis, MO, USA). RNAiso Plus, reagenční sada PrimeScript™RT s gDNA Eraser a SYBR® Premix Ex Taq™ II byly zakoupeny od společnosti Takara (Shiga, Japonsko). Transfekční činidlo Lipofectamine® RNAiMAX bylo zakoupeno od Thermo Fisher Scientific (Waltham, UK). Nrf2 siRNA sekvence byly následující: forward, CCGAAUUACAGUGUCUUAA; a zpět, UUAAGACACUGUAAUUCGG. Mezitím byly kontrolní sekvence siRNA následující: forward, UUCUCCGAACGUGUCACGU; a zpět, ACGUGACACGUUCGGAGAA.
4.2. Buněčná kultura
Myší adrenální feochromocytomová linie (PC12 buňky) byla získána z Institutu biochemie a buněčné biologie, SIBS, (CAS, Shanghai, Čína). Buňky byly udržovány v RPMI-1640 (Hyclone) obsahujícím 10 procent fetálního bovinního séra (Hyclone), 100 U/ml penicilinu a 0,1 mg/ml streptomycinu při 37 stupních s 5 procenty CO2. Médium se měnilo každý druhý den.
4.3. Test buněčné životaschopnosti
Buňky PC12 byly nasazeny na 96-jamkové destičky v množství 2 x 10⁴ buněk/jamku. Po připojení byly buňky preinkubovány s inhibitorem nebo bez něj po dobu 20 minut, inkubovány s nebo bez PhG po dobu 24 hodin a poté inkubovány s H202 další 2 hodiny poté, co byly PhG odstraněny. Po inkubaci byly buňky ošetřeny 5 mg/ml MTT po dobu 4 hodin při 37 stupních a média byla opatrně odstraněna. Krystaly formazanu, které se vytvořily přeživšími buňkami, byly rozpuštěny ve 150 r DMSO za vzniku modré barvy [35] a absorbance byla měřena při 570 nm na čtečce destiček. Kontroly používaly stejnou koncentraci média se samotným DMSO. Životaschopnost buněk byla normalizována jako procento kontroly.
Koncentrace PhGs (0.1,1,5 a 10 Rg/ml) byly zvoleny v závislosti na analýze cytotoxicity PhG a uváděném cytoprotektivním účinku echinakosidu [32]. Podle zprávy nebyl prokázán žádný cytotoxický účinek pod 10 Rg/ml a echinakosid vykazoval cytoprotektivní účinek v modelu buněk poškozených HzOz.
4.4. Test apoptózy
Apoptóza byla detekována soupravou pro dvojité barvení Annexin V-FITC/PI (Solarbio). Buňky PC12 byly nasazeny na 6-jamkové destičky v množství 2 x 10⁵ buněk/jamku. Po připojení byly buňky ošetřeny PhGs (0,1 a 10 Rg/ml) po dobu 24 hodin a inkubovány s H202 další 2 hodiny poté, co byly PhG odstraněny. Po inkubaci byly buňky promyty studeným PBS, centrifugovány dvakrát při 1500 otáčkách za minutu po dobu 10 minut a resuspendovány v 500 ul vazebného pufru. Annexin V značený FITC (5 rL) a propidium jodid.
Zkratky
GCLC glutamát-cystein ligáza-katalytická podjednotka
GCLM glutamát-cystein ligáza-katalytický modifikátor podjednotka
H2O2 peroxid vodíku
HO-1 hemoxygenáza 1
Keap1 Kelch ECH asociační protein 1
NQO1 NAD(P)H chinonoxidoreduktáza 1
Nrf2 jaderný faktor erytroidní 2-faktor 2 související
PhGs salidrosid, akteosid, isoakteosid a echinakosid
ROS reaktivní formy kyslíku
ZnPP protoporfyrin zinku
Extrakt z cistanche deserticola: PHG z cistanche
Reference
1. Slunce, AY; Chen, YM Oxidační stres a neurodegenerativní poruchy. J. Biomed. Sci. 1998, 5, 401-414. [CrossRef] [PubMed]
2. Maheshwari, A.; Micro, MM; Aggarwal, A.; Sharma, RK; Nandan, D. Dráhy zapojené do apoptózy zárodečných buněk varlat indukované H2O2 in vitro. FEBS J. 2009, 276, 870-881. [CrossRef] [PubMed]
3. Halliwell, B. Reaktivní formy kyslíku a centrální nervový systém. J. Neurochem. 1992, 59, 1609-1623. [CrossRef] [PubMed]
4. Richardson, JS; Subbarao, KV; Ang, LC O možné úloze železem indukované peroxidace volných radikálů v nervové degeneraci u Alzheimerovy choroby. Ann. NY Acad. Sci. 1992, 648, 326-327. [CrossRef] [PubMed]
5. Zhang, DD Mechanistické studie signální dráhy Nrf2-Keap1. Drug Metab. Rev. 2006, 38, 769-789. [CrossRef] [PubMed]
6. Itoh, K.; Tong, KI; Yamamoto, M. Molekulární mechanismus aktivující dráhu Nrf2-Keap1 v regulaci adaptivní odpovědi na elektrofily. Volný Radic. Biol. Med. 2004, 36, 1208-1213. [CrossRef] [PubMed]
7. Kong, AN; Owuor, E.; Yu, R.; Hebbar, V.; Chen, C.; Hu, R.; Mandlekar, S. Indukce xenobiotických enzymů mapovou kinázovou cestou a antioxidačním nebo elektrofilním responzivním prvkem (ARE/EpRE). Drug Metab. Rev. 2001, 33, 255-271. [CrossRef] [PubMed]
8. Buendia, I.; Michalská, P.; Navarro, E.; Gameiro, I.; Egea, J.; Leon, R. Nrf2-dráha ARE: Nový cíl proti oxidativnímu stresu a neurozánětům u neurodegenerativních onemocnění. Pharmacol. Ther. 2016, 157, 84-104. [CrossRef] [PubMed]
9. Skibinski, G.; Hwang, V; Ando, DM; Daub, A.; Lee, AK; Ravisankar, A.; Modan, S.; Finucan, MM; Shabby, BA; Finkbeiner, S. Nrf2 zmírňuje LRRK2- a neurodegeneraci indukovanou a-synukleinem modulací proteostázy. Proč. Natl. Akad. Sci. USA 2016, 114, 1165-1170. [CrossRef] [PubMed]
10. Jimenez, C.; Riguera, R. Fenylethanoidní glykosidy v rostlinách: Struktura a biologická aktivita. Nat. Prod. Rep. 1994, 11, 591-606. [CrossRef] [PubMed]
11. Georgiev, M.; Alipieva, K.; Orhan, I.; Abrashev, R.; Denev, P.; Angelova, M. Antioxidační a cholinesterázové inhibiční aktivity Verbascum xanthophoeniceum Griseb. a jeho fenylethanoidní glykosidy. Food Chem. 2011, 128, 100-105. [CrossRef] [PubMed]
12. Li, N.; Wang, J.; Ma, J.; Gu, Z.; Jiang, C.; Yu, L.; Fu, X. Neuroprotektivní účinkyCistanches HerbaTerapie pacientů se středně těžkou Alzheimerovou chorobou. Doplněk založený na důkazech. Alternativní. Med. 2015, 2015, 103985. [CrossRef] [PubMed]
13. Liu, YL; On, WJ; Mo, L.; Shi, MF; Zhu, YY; Pan, S.; Li, XR; Xu, QM; Yang, SL Antimikrobiální, protizánětlivé aktivity a toxikologie fenylethanoidových glykosidů od Monochasma savatieri Franch. bývalý Maxim. J. Ethnopharmacol. 2013 149, 431-437. [CrossRef] [PubMed]
14. Dong, Q.; Yao, J.; Fang, JN; Ding, K. Strukturní charakterizace a imunologická aktivita dvou studenou vodou extrahovatelných polysacharidů zCistanche deserticola YC Ma. Carbohydr. Res. 2007, 342,1343-1349. [CrossRef] [PubMed]
15. Xiong, L.; Mao, S.; Lu, B.; Yang, J.; Zhou, F.; Hu, Y.; Jiang, Y.; Shen, C.; Zhao, Y. Osmanthusfragrans květový extrakt a akteosid chrání před stárnutím vyvolaným d-galaktózou v modelu myši ICR. J. Med. Jídlo 2016, 19, 54-61. [CrossRef] [PubMed]
16. Jiang, Y.; Mao, S.; Huang, W.; Lu, B.; Cai, Z.; Zhou, F.; Li, M.; Lou, T.; Zhao, Y. Profily fenylethanoidních glykosidů a antioxidační aktivity Osmanthusfragrans Lour. Květiny pomocí UPLC/PDA/MS a modelu simulovaného trávení. J. Agric. Food Chem. 2016, 64, 2459-2466. [CrossRef] [PubMed]
17. Li, X.; Ano, X.; Li, X.; Sun, X.; Liang, Q.; Tao, L.; Kang, X.; Chen, J. Salidroside chrání před apoptózou indukovanou MPP plus v buňkách PC12 inhibicí dráhy NO. Brain Res. 2011, 1382, 9-18. [CrossRef] [PubMed]
18. Zhang, L.; Ding, W.; Sun, H.; Zhou, Q.; Huang, J.; Li, X.; Xie, Y.; Chen, J. Salidroside chrání buňky PC12 před apoptózou indukovanou MPP plus prostřednictvím aktivace dráhy PI3K/Akt. Food Chem. Toxicol. 2012, 50, 2591-2597. [CrossRef] [PubMed]
19. Sheng, GQ; Zhang, JR; Pu, XP; Ma, J.; Li, CL Ochranný účinek verbascosidu na neurotoxicitu vyvolanou 1-methyl-4- fenylpyridiniovými ionty u buněk PC12. Eur. J. Pharmacol. 2002, 451, 119-124. [CrossRef]
20. Wang, H.; Xu, Y.; Yan, J.; Zhao, X.; Sun, X.; Zhang, Y.; Guo, J.; Zhu, C. Akteosid chrání buňky lidského neuroblastomu SH-SY5Y před poškozením buněk vyvolaným beta-amyloidem. Brain Res. 2009, 1283, 139-147. [CrossRef] [PubMed]
21. Min, D.; Jin, YZ; Yong, J.; Zheng, BL; Yao, HW Echinacoside zachraňuje neuronální buňky SHSY5Y před apoptózou vyvolanou TNFa. Brada. Pharmacol. Býk. 2005, 505,11-18.
22. Zhao, Q.; Gao, JP; Li, WW; Cai, DF Neurotrofické a neurozáchranné účinky echinakosidu u subakutního MPTP myšího modelu Parkinsonovy choroby. Brain Res. 2010, 1346, 224-236. [CrossRef] [PubMed]
23. Koo, KA; Sung, SH; Park, JH; Kim, SH; Lee, KY; Kim, YC In vitro neuroprotektivní aktivity fenylethanoidních glykosidů z Callicarpa dichotoma. Planta Med. 2005, 71, 778-780. [CrossRef] [PubMed]
24. Liu, YG; Li, X.; Xiong, C.; Yu, B.; Pu, X.; Ano, XS Syntetické deriváty fenylethanoidových glykosidů jako potenciální neuroprotektivní činidla. Eur. J. Med. Chem. 2015, 95, 313-323. [CrossRef] [PubMed]
25. Fu, G.; Pang, H.; Wong, YH Přirozeně se vyskytující fenylethanoidové glykosidy: Potenciální vodítka pro nová terapeutika. Curr. Med. Chem. 2008, 15, 2592-2613. [CrossRef] [PubMed]
26. Greene, LA; Tischler, AS Založení noradrenergní klonální linie buněk krysího adrenálního feochromocytomu, které reagují na nervový růstový faktor. Proč. Natl. Akad. Sci. USA 1976, 73, 2424-2428. [CrossRef] [PubMed]
27. Liang, QN; Sheng, YC; Jiang, P.; Ji, LL; Xia, YY; Min, Y.; Wang, ZT Rozdíl antioxidačního systému glutathionu v játrech nově odstavených a mladých myší a jeho zapojení do hepatotoxicity vyvolané izolinem. Oblouk. Toxicol. 2011, 85, 1267-1279. [CrossRef] [PubMed]
28. Kobayashi, A.; Kang, M.; Okawa, H.; Ohtsuji, M.; Zenke, Y; Chiba, T.; Igarashi, K.; Yamamoto, M. Senzor oxidativního stresu Keap1 funguje jako adaptér pro Cul{2}}založenou E3 ligázu k regulaci proteasomální degradace Nrf2. Mol. Buňka. Biol. 2004, 24, 7130-7139. [CrossRef] [PubMed]
29. Cornelius, C.; Crupi, R.; Calabrese, V; Graziano, A.; Milone, P.; Pennisi, G.; Radak, Z.; Calabrese, EJ; Cuzzocrea, S. Traumatické poranění mozku: Oxidační stres a neuroprotekce. Antioxid. Redoxní signál. 2013, 19, 836-853. [CrossRef] [PubMed]
30. Hou, Z.; Luo, W.; Sun, X.; Hao, S.; Zhang, Y.; Xu, F.; Wang, Z.; Liu, B. Solný roztok bohatý na vodík chrání před oxidačním poškozením a kognitivními deficity po mírném traumatickém poranění mozku. Brain Res. Býk. 2012, 88, 560-565. [CrossRef] [PubMed]
31. Ansari, MA; Roberts, KN; Scheff, SW Časový průběh oxidačního stresu vyvolaného zhmožděním a synaptických proteinů v kůře u potkaního modelu TBI. J. Neurotrauma 2008, 25, 513-526. [CrossRef] [PubMed]
32. Kuang, R.; Sun, Y.; Yuan, W.; Lei, L.; Zheng, X. Ochranné účinky echinakosidu, jednoho z fenylethanoidních glykosidů, na H2O2-indukovanou cytotoxicitu v buňkách PC12. Planta Med. 2009, 75, 1499-1504. [CrossRef] [PubMed]
33. Scapagnini, G.; Vasto, S.; Abraham, NG; Caruso, C.; Zella, D.; Fabio, G. Modulace dráhy Nrf2/ARE potravinovými polyfenoly: Nutriční neuroprotektivní strategie pro kognitivní a neurodegenerativní poruchy. Mol. Neurobiol. 2011, 44, 192-201. [CrossRef] [PubMed]
34. Kerr, F.; Sofolaadesakin, O.; Ivanov, DK; Gatliff, J.; Gomez, PB; Bertrand, HC; Martinez, P.; Callard, R.; Snoeren, I.; Cochem, HM Direct Keap1-Narušení Nrf2 jako potenciální terapeutický cíl pro Alzheimerovu chorobu. PLoS Genet. 2017, 13, e1006593. [CrossRef] [PubMed]
35. Hansen, MB; Nielsen, SE; Berg, K. Přezkoumání a další vývoj přesné a rychlé barvicí metody pro měření buněčného růstu/zabíjení buněk. J. Immunol. Methods 1989, 119, 203-210. [CrossRef]
36. Press, C. Virtuální screening při zjišťování léčiv; Crc Press: Boca Raton, FL, USA, 2005.
37. Muegge, I.; Martin, YC; Hajduk, PJ; Fesik, SW Hodnocení PMF skóre při dokování slabých ligandů k proteinu vázajícímu FK506. J. Med. Chem. 1999, 42, 2498-2503. [CrossRef] [PubMed]
38. Kuntz, ID; Blaney, JM; Oatley, SJ; Langridge, R.; Ferrin, TE Geometrický přístup k interakcím makromolekula-ligand. J. Mol. Biol. 1982,161, 269-288. [CrossRef]
39. MD, E.; Murray, CW; Auton, TR; Paolini, GV; Mee, RP Empirické skórovací funkce: I. Vývoj rychlé empirické skórovací funkce pro odhad vazebné afinity ligandů v receptorových komplexech. J. Computing.-Aided Mol. Des. 1997, 11, 425-445.
© 2018 od autorů. Držitel licence MDPI, Basilej, Švýcarsko. Tento článek je článek s otevřeným přístupem distribuovaný za podmínek licence Creative Commons Attribution (CC BY) (http:ZZcreativecommons.org/licenses/byZ4.0Z).