Molekulární detekce fází zrání ve vyvíjející se ledvině
Feb 20, 2022
ABSTRAKTNÍNedávné pokroky v biologii kmenových buněk umožnily generování ledvinaorganoidy in vitro a další zrání těchto organoidů je pozorováno po experimentální transplantaci. Současné organoidy však zůstávají nezralé a jejich přesná stádia zrání je obtížné určit kvůli omezeným informacím o genových expresích závislých na vývojovém stádiu vledvinain vivo. Abychom stanovili relevantní molekulární souřadnice, provedli jsme jednobuněčné sekvenování RNA (scRNA-seq) při vývojiledvinyv různých fázích myši. Výběrem genů, které vykazovaly upregulaci při narození ve srovnání s embryonálním dnem 15.5, stejně jako expresí specifickou pro buněčnou linii, jsme vytvořili seznamy genů korelující s vývojovými stádii v jednotlivých buněčných liniích. Aplikace těchto seznamů na transplantované embryoledviny odhalili, že většina typů buněk, kromě sběrných kanálků, vykazovala podobné zrání jakoledvinyv neonatálním stádiu in vivo, odhalující nesynchronní zrání napříč buněčnými liniemi. Naše data scRNA-seq tedy mohou sloužit jako užitečné molekulární souřadnice pro posouzení zrání vývojeledvinya nakonec zledvinaorganoidy.
klíčová slova:Vývoj ledvin, sekvenování jednobuněčné RNA, zrání, hybridizace in situ, ledviny
ÚvodTheledvinaje odvozen od nejméně dvou typů prekurzorů: progenitorů nefronů a ureterických pupenů (Costantini a Kopan, 2010). Progenitory nefronů poskytují tonefrony, včetně glomerulárních podocytů, proximálních tubulů, Henleových kliček (LOH) a distálních tubulů, zatímco pupen ureteru se rozvětvuje a tvoří sběrné kanálky a močovod (Kobayashietal., 2008) (Maroseetal., 2008 zarovnaná složka s přídavným usazeninovým kanálem s formovanou složkou). tok. Progenitory nefronů a ureterický pupen zahajují své interakce kolem embryonálního dne (E) 11,5 u myší. V E15,5 jsou specifikovány celkové segmenty nefronů, ale z progenitorů nefronů se nadále generují nové nefrony. Po glomerulární vaskularizaci začíná proudit moč v E16,5–E17,5 (Rasouly a Lu, 2013). Mezitím vnitřní (dřeňová) oblastledvinaprodlužuje, odrážející prodloužení LOH a sběrných kanálků. Tento vývoj medulární oblasti pokračuje po dni narození (P0), zatímco progenitory nefronů se přestanou samoobnovovat a zmizí během několika dnů po narození (Hartmanet al., 2007) (Rumballe et al., 2011) ( Volovelsky et al., 2018).

Nedávné pokroky v biologii kmenových buněk umožnily generováníledvinaorganoidy in vitro (Morizane et al., 2015; Taguchi et al., 2014; Takasato et al., 2015). Dříve jsme vytvořililedvinaorganoidy z pluripotentních kmenových buněk: myší embryonální kmenové buňky (ESC) a lidské indukované pluripotentní kmenové buňky (iPSC) (Taguchietal., 2014). Nicméně začíná být jasné, že organoidy in vitro zůstávají v nezralých stádiích, což odpovídáledvinypřibližně E14,5–E15,5 u myší a 10–14 týdnů těhotenství u lidí (TaguchiandNishinakamura, 2017; Takasatoet al., 2015; Wu et al., 2018). My a další jsme také vyvinuli metody experimentální transplantaceledvinaorganoidy do imunodeficientních myší, což umožňuje vaskularizaci organoidů a připojení k cirkulaci hostitele (Bantounas et al., 2018; Sharmin et al., 2016; Subramanian et al., 2019; Tanigawa et al., 2018; van den Berg et al., 2018). Po transplantaci získávají glomerulární podocyty v organoidech zralejší morfologické rysy související s filtrační funkcí, pravděpodobně způsobené přísunem kyslíku a/nebo interakcí s vaskulárními endoteliálními buňkami. Zatímco přesné mechanismy zůstávají nevyřešeny, transplantace se často používá k indukci zrání organoidů v výzkumný obor biologie kmenových buněk.
Přes tyto pokroky je přesné určení stádií zrání obtížné kvůli nedostatku molekulárních souřadnic, tj. komplexních informací o genové expresi závislé na stádiu vývoje.ledvina.V současné době nejsou tyto souřadnice dostupné ani pro embryonální myšiledvinyin vivo. Tato situace do značné míry vzniká kvůli rostoucímu počtu typů buněk běhemledvinavývoj, přičemž každý buněčný typ obsahuje malé množství buněk. Konvenční analýzy genové exprese, které vyžadují velké množství homogenních buněk, nejsou vhodné pro heterogenní zráníledviny.Databáze GUDMAP (www.gudmap.org) shromáždila velké množství analýz genové exprese ve vývojiledvinavčetně některých celkemledvinya některé v vytříděných nebo mikrodisekovaných buňkách (McMahon et al., 2008). Nicméně, dokonce i
posledně jmenované analýzy často obsahují buňky z více fází, a proto data nejsou přímo použitelná pro analýzy zrání. Analýza sekvenování jednobuněčné RNA (scRNA-seq) umožnila zkoumání genových expresí v komplikovaných a heterogenních orgánech, včetněledvinaa některá z těchto dat byla uložena v databázi GUDMAP (Adam et al., 2017a; Combes et al., 2019a, 2019b; Lindstr€ om et al., 2018; Magella et al., 2017; Ransick et al. , 2019; Wanget al., 2018; Wu et al., 2018). Většina z těchto předchozích studií však analyzovala embryonální nebo dospěléledvinyv jediném časovém bodě nebo ve srovnání
vivoledvinys in vitroledvinaorganoidy. Zabývalo se tedy jen málo studiíledvinadozrávání od poloviny gestace do porodu pro omezený buněčný typ (Chen et al., 2015). Stanovit molekulární souřadnice proledvinamaturaci v této studii jsme provedli scRNA-seq na vyvíjející se myšiledvinyv různých stádiích a vybrané geny závislé na zrání. Dále jsme hodnotili stav zrání transplantovaných embryonálních ledvin porovnáním dat RNA-seq a expresí genů závislých na zrání. Naše data RNA-seq a vybrané seznamy genů budou sloužit jako referenční nástroje pro dozrávání vývojeledvinya nakonec zledvinaorganoidy.
Výsledek
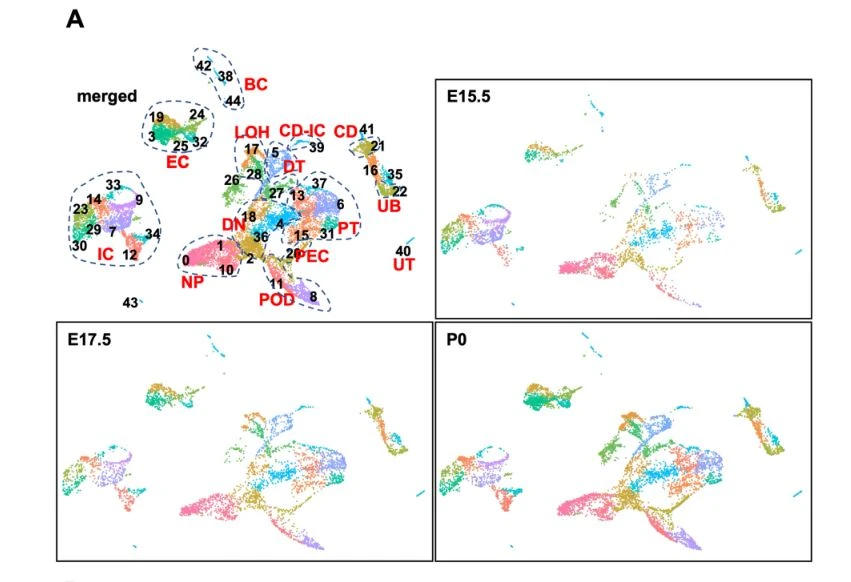
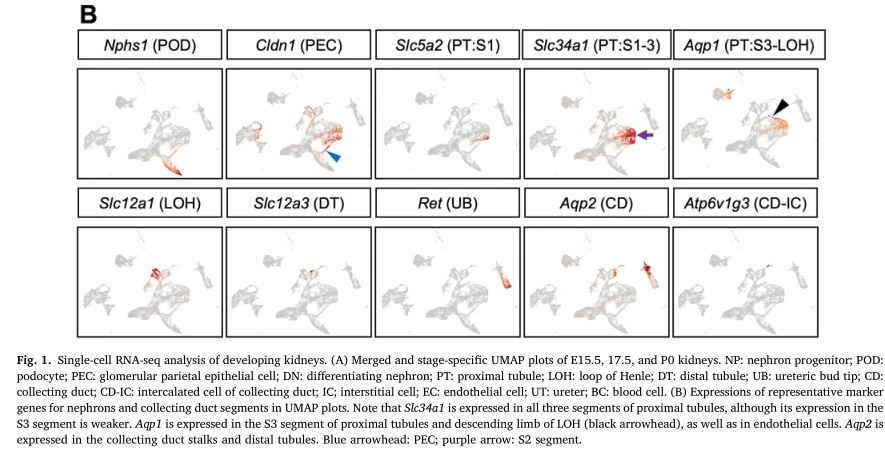
scRNA-seq analýza vyvíjejících se ledvinProvedli jsme scRNA-seq na vyvíjející se myšiledvinyve třech různých fázích: E15.5, E17.5 a P0. Byla získána vysoce kvalitní data se středními hodnotami 4 493, 2 36 0 a 2 467 genů na buňku. Po analýze dat pomocí Seurat v3.1.1 (Butler et al., 20}18; Stuart et al., 2019a) byly buňky klasifikovány do 45 shluků s větším počtem pevných shluků v P0 než na E15,5 (obr. 1A). Identifikovali jsme buněčné typy pro většinu shluků pomocí markerů specifických pro buněčný typ: progenitory nefronů (Six2þ, shluky 0, 1 a 10), glomerulární podocyty (Nphs1þ, shluky 8 a 11), glomerulární parietální epiteliální buňky (Claudin 1 (Cldn1 )þ, shluk 20), proximální tubuly (segment S1: rodina nosičů rozpuštěných látek (Slc) 5a2þ, shluky 15 a 31; segment S2: Slc5a2?/Slc34a1þ, shluky 13 a 6; segment S3: Aquaporin 1 (Aqp331)þ (Lee et al., 2015; Ransick et al., 2019), shluk 37), LOH (tenká sestupná končetina: Aqp1þ/Slc39a8þ (Lee a kol., 2015; Ransick a kol., 2019), shluk 27; tlustá vzestupná končetina: Uromodulin (Umod)þ/Slc12a1þ, shluky 28 a 17), distální tubuly (Slc12a3þ, shluk 5), hroty ureterických pupenů (Retþ, shluky 22 a 35) a stonky sběrných kanálků (Aqp2þ, shluky 16, 41) (obr. 1B, obr. S1A). Interkalované buňky vytvořily shluk, který byl oddělen od shluků sběrných kanálků (Atp6v1g3þ, shluk 39) (obr. 1B). Intersticiální buňky byly klasifikovány do více shluků (7, 9, 12, 14, 23, 29, 30, 33 a 34), z nichž shluky 9/33, 12 a 34 mohou představovat stromální progenitory (Foxd1þ (Kobayashi et al. , 2014)), mezangiální buňky (Nt5eþ), respektive buňky produkující renin (Ren1þ) (obr. S1B). Shluky endotelových buněk (Pecam1þ, shluky 3, 19, 24, 25 a 32) obsahovaly buňky Ehd3þ (shluk 32, obr. S1C), které pravděpodobně představovaly glomerulární endoteliální buňky (Patrakka et al., 2007). Seurat v3.1.1, který využívá integrační kotvy ke shlukování nejbližších sousedů (Stuartet al., 2019b), tedy úspěšně kategorizoval četné typy buněk vledvinyv různých vývojových fázích.
Časové změny exprese transkripčních faktorů a vývojových signálních aktivit běhemledvinazrání
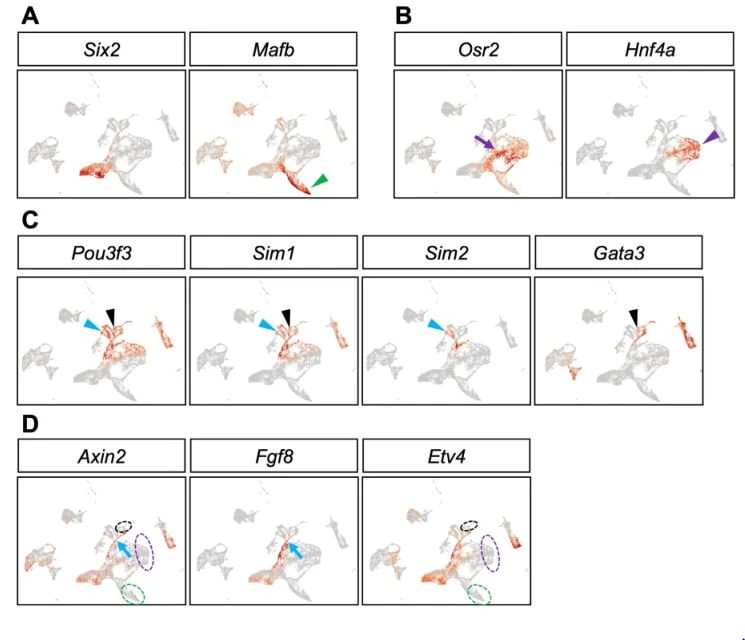
Progenitory nefronů byly klasifikovány do tří shluků (obr. S1D): shluk 0 obsahující Six2þ/Cited1þ naivní buňky, shluk 10 obsahující Six2þ/Cited1þ/Top2a þ proliferující naivní buňky a shluk 1 obsahující Six2þ/Cited{10} }/Wnt4þ primované buňky (Boyle et al., 2008; Kobayashiet al., 2008; Self et al., 2006). Během specifikace segmentu nefronů populace progenitorů nefronů nejprve vytvořila větev Mafb þ podocytů,
které se nakonec diferencovaly na Nphs1þ podocyty (obr. 1B a 2A). Větve pro proximální tubuly a LOH/distální tubuly se tvořily odděleně od větve podocytů. Prekurzorové buňky pro proximaltubuly
exprimoval geny transkripčního faktoru Osr2 a poté Hnf4a (obr. 2B), z nichž druhý reguluje geny závislé na zrání v proximálních tubulech (Deacon a kol., 2019; Marable a kol., 2018, 2020; Martovetsky
a kol., 2013). Běžné prekurzorové buňky pro LOH/distální tubuly exprimovaly jak Pou3f3 (Nakai et al., 2003), tak Sim1, s následnou expresí Sim2 a Gata3 po specifikaci LOH a distálních tubulů, v daném pořadí (obr. 2C). Tfap2b, nedávno hlášený jako důležitý pro vývoj distálního nefronu (Marneros, 2020), byl také detekován v LOH a distálních tubulech (obr. S1E). K časovým posunům v expresi transkripčních faktorů tedy dochází v jednotlivých segmentech nefronů běhemledvinadozrávání a shluky na periferních koncích větví (shluky 5, 6, 8, 17, 31 a 37) představují nejzralejší stádium v každé linii.

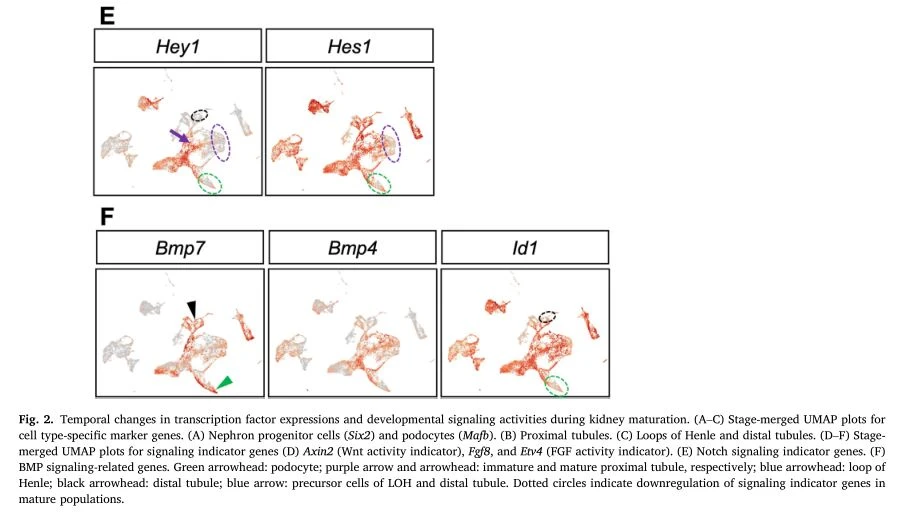
Z hlediska vývojových signálů byl indikátor aktivity signální dráhy WNT, Axin2, detekován především ve vyvíjejících se distálních tubulech, jak již bylo dříve publikováno (Jho et al., 2002). Fgf8 a Etv4, an
indikátor signalizační aktivity FGF (Maoetal., 2009) byl skutečně exprimován ve vyvíjejících se distálních tubulech, ale omezen na nezralé stadium. Naproti tomu Bmp7 (Oxburgh et al., 2005) byl exprimován v distálních tubulech v nezralých i zralých stádiích, stejně jako v podocytech, zatímco Bmp4 (Miyazaki et al., 2000) byl detekován hlavně v proximálních tubulech. Také jsme zaznamenali, že aktivity hlavních signálních cest byly oslabeny
regulovány ve zralých buňkách ve většině segmentů nefronů. Například Axin2 (indikátor signálu WNT) a Etv4 (indikátor signálu FGF) byly nepřítomné ve zralých podocytech a proximálních a distálních tubulech (obr. 2D). Stejná tendence byla pozorována pro Hey1 (signalizační indikátor Notch), zatímco Hes1 byl pouze downregulován v podocytech a proximálních tubulech (obr. 2E). Indikátor signalizace BMP, Id1 (Korchynskyi a Ten Dijke, 2002; L? opez-Rovira et al., 2002), byl snížen ve zralých podocytech a distálních tubulech (obr. 2F). V průběhu je tedy pozorována aktivace vývojové signalizace specifická pro segment nefronů, následovaná downregulacíledvinazrání.
Seznamy genů závislých na vývojovém stádiu pro jednotlivé buněčné linie
Naše scRNA-seq analýza ukázala, že UMAP klastry vyjadřující některé zavedené diferenciační markery s omezenou linií byly již přítomny v E15.5 (obr. 1B). Abychom identifikovali geny závislé na stádiu pro jednotlivé nefronsegmenty, nejprve jsme porovnali genové exprese mezi E15.5 a P0 v nejvyspělejších shlucích každé linie a zachytili jsme geny, které byly významně upregulovány nebo downregulovány na P0 ve srovnání s E15. 5. Zjistili jsme však, že tyto seznamy zahrnovaly geny spojené s buněčným stresem, jako jsou proteiny tepelného šoku, geny rodiny Jun/Fos a geny Gadd45 (Adam et al., 2017a), které mohou být vyvolány drsnější procesy buněčné disociace používané pro P0ledviny. Because these genes were ubiquitously expressed, it was difficult to discriminate them from maturation-dependent genes that were ubiquitously expressed. Thus, we decided to select cell-type specific genes and picked up the upregulated or downregulated genes in the corresponding clusters between the two stages. Most of the upregulated genes at P0 showed consistent results in UMAP plots, while the downregulated genes showed less prominent differences between the two stages. In addition, the downregulated genes were detected in more immature cell clusters at P0, reflecting the repetitive differentiation processes from nephron progenitors. Therefore, we decided to focus on the upregulated genes (fold change, >2.5) a kurátoroval každý kandidátní gen pro jeho časoprostorovou expresi na základě grafů UMAP. Houslové grafy nakonec vybraných genů ukázaly jejich stádium závislé exprese v jednotlivých věkových skupinách buněčných linií (obr. 3A, obr. S2, S3, S4A, tabulka S1). Bodové grafy potvrdily jejich exprese specifické pro buněčný typ (obr. 3B), ačkoli mnoho genů vybraných pro segment S2 proximálních tubulů bylo také exprimováno v segmentech S1 a S3. Tyto seznamy vybraných genů zahrnovaly alfa3 řetězec kolagenu typu 4 (Col4a3) a Semaforin (Sema) 3g pro podocyty, Slc5a12 (laktátový transportér) a Cytochrom P450 (Cyp) 27b1 (alfa hydroxyláza vitaminu D) pro proximální tubuly, Umod a Promod receptor 3 (Ptger3) pro LOH, Aqp2 a Aqp3 pro sběrné vývody a Lipokalin2 (Lcn2) pro špičky ureterických pupenů. Většina genů již byla upregulována v E17.5


a vykazovaly srovnatelné úrovně exprese jako u P0, což naznačuje, že mezi E15.5 a E17.5 může dojít k podstatnému zrání. Detekovali jsme pouze několik genů pro distální tubuly (tabulka S1), protože většina upregulovaných genů v této buněčné linii byla také exprimována ve sběrných kanálcích. Dohromady, scRNA-seq analýza vývojeledvinyve více fázích zrání umožnily identifikaci genů závislých na stadiu a liniově specifických genů ve většině segmentů nefronů.
Histologické ověření stadiově závislých genových expresí reprezentativních genů
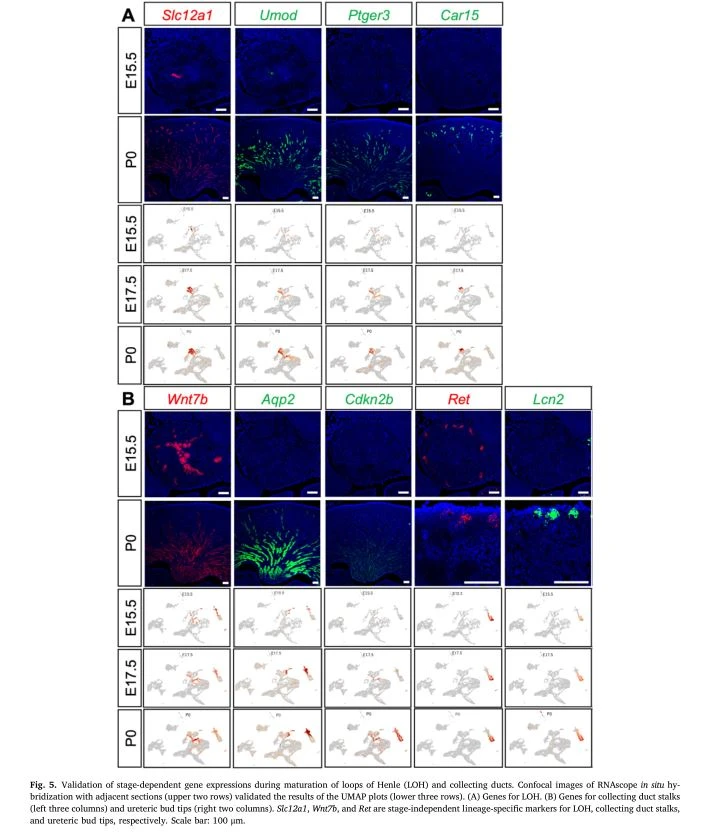
Pro potvrzení platnosti seznamů genů histologickým vyšetřením jsme stanovili exprese vybraných genů v E15.5 a P0ledvinykonvenční hybridizací in situ na bázi digoxigeninu nebo vysoce citlivou technologií RNAscope (Wang et al., 2012). Protože hybridizace in situ, a zejména technologie RNAscope, zahrnuje rozsáhlou amplifikaci signálu, je nepravděpodobné, že se podaří detekovat jemné rozdíly v hladinách genové exprese. Vybrali jsme tedy geny, které vykazovaly minimální expresi v E15.5 a byly omezeny na jednu linii v P0 v grafech UMAP. Takové geny by byly také užitečné pro nákladově efektivní hodnocení stádií zrání pomocí histologických řezů. V podocytech byly všechny čtyři zkoumané geny (Col4a3, Sema3g, Htra1, Clic3) snadno detekovány na P0 a jejich úrovně exprese na E15.5 byly nižší než na P0 (obr. 4A ). Naproti tomu Nphs1 vykazoval srovnatelnou expresi ve dvou fázích (obr. 4A). V proximálních tubulech tři geny (Slc5a12, Cyp27b1, Kap) vykazovaly slabé nebo minimální signály v E15.5 a silnou expresi v P0 (obr. 4B), zatímco Slc34a1 vykazoval srovnatelnou expresi v obou fázích (obr. 4B). Exprese tří genů závislé na stádiu byly ověřeny v LOH (Umod, Ptger3, Car15), na rozdíl od relativně konstantní exprese Slc12a1 (obr. 5A). Také jsme provedli in situ hybridizaci pro tři geny (Aqp2, Cdkn2b, Lcn2) ve sběrných kanálcích a potvrdili jejich stádium-dependentní expresi (obr. 5B). Mezi nimi byly Aqp2 a Cdkn2b exprimovány ve stopkách sběrných kanálků, zatímco Lcn2 byl detekován v ureterických špičkách. Naproti tomu Retand Wnt7b vykazoval relativně konstantní hladiny exprese (obr. 5B). Údaje o hybridizaci in situ byly konzistentní s grafy UMAP, což podpořilo spolehlivost našich dat scRNA-seq.
Histologické ověření stadiově závislých genových expresí reprezentativních genů
Pro potvrzení platnosti seznamů genů histologickým vyšetřením jsme stanovili exprese vybraných genů v E15.5 a P0ledvinykonvenční hybridizací in situ na bázi digoxigeninu nebo vysoce citlivou technologií RNAscope (Wang et al., 2012). Protože hybridizace in situ, a zejména technologie RNAscope, zahrnuje rozsáhlou amplifikaci signálu, je nepravděpodobné, že se podaří detekovat jemné rozdíly v hladinách genové exprese. Vybrali jsme tedy geny, které vykazovaly minimální expresi v E15.5 a byly omezeny na jednu linii v P0 v grafech UMAP. Takové geny by byly také užitečné pro nákladově efektivní hodnocení stádií zrání pomocí histologických řezů. V podocytech byly všechny čtyři zkoumané geny (Col4a3, Sema3g, Htra1, Clic3) snadno detekovány na P0 a jejich úrovně exprese na E15.5 byly nižší než na P0 (obr. 4A ). Naproti tomu Nphs1 vykazoval srovnatelnou expresi ve dvou fázích (obr. 4A). V proximálních tubulech tři geny (Slc5a12, Cyp27b1, Kap) vykazovaly slabé nebo minimální signály v E15.5 a silnou expresi v P0 (obr. 4B), zatímco Slc34a1 vykazoval srovnatelnou expresi v obou fázích (obr. 4B). Exprese tří genů závislé na stádiu byly ověřeny v LOH (Umod, Ptger3, Car15), na rozdíl od relativně konstantní exprese Slc12a1 (obr. 5A). Také jsme provedli in situ hybridizaci pro tři geny (Aqp2, Cdkn2b, Lcn2) ve sběrných kanálcích a potvrdili jejich stádium-dependentní expresi (obr. 5B). Mezi nimi byly Aqp2 a Cdkn2b exprimovány ve stopkách sběrných kanálků, zatímco Lcn2 byl detekován v ureterických špičkách. Naproti tomu Retand Wnt7b vykazoval relativně konstantní hladiny exprese (obr. 5B). Údaje o hybridizaci in situ byly konzistentní s grafy UMAP, což podpořilo spolehlivost našich dat scRNA-seq.
Transplantované embryonální ledviny vykazují zrání blízké novorozeneckému stádiu
Chcete-li zjistit, zda transplantovanéledvinysledovali proces fyziologického zrání, provedli jsme transplantační experimenty s použitím embryonálních myšíledvinyjako dárcovské tkáně. Kvůli transplantaci
izolovaný embryonálníledvinyzpůsobil hydronefrózu pravděpodobně vyplývající z nesprávného připojení močových cest (obr. S5A), použili jsme dříve uvedený protokol, který potenciálně zachovává neporušený průtok moči (Yokote et al., 2015). Za tímto účelem jsme transplantovali E12.5ledvinyspojené s kloakou, prekurzorem močového měchýře, do tuku nadvarlete dospělých hostitelských myší (obr. 6A). Při sklizni 12 dnů po transplantaciledvinyzvětšila velikost (3,29 ? 0,35 mm 2 vs. 0,23 ? 0.02 mm 2, n¼ 3, p < 0,05) a moč byla detekována v močovém měchýři (obr. 6A), což naznačuje, že močový tok přes močový měchýřledvina-připojení močového měchýře bylo zachováno. Histologická analýza ukázala, že ledvinová dřeň byla vytvořena s kortikomedulárním vzorováním (obr. 6A). Barvení markerů specifických pro buněčný typ ukázalo, že celková distribuce LTL + proximálních tubulů, SLC12A1 + LOH a KRT8 + ureterických pupenů byla zachována (obr. 6B) a že glomeruly s podocyty NPHS1 byly vaskularizovány pomocí PECAM1 endoteliálních buněk (obr. S5B). , který je zřídka pozorován během in vitro kultivace embryonálních ledvin (Halt et al., 2016). Dále jsme provedli scRNA-seq analýzu transplantovaných embryíledvinya porovnali data s daty získanými z embryonálních ledvin in vivo. UMAP grafy transplantovaných ledvin vykazovaly podobné vzory shluků jako u neonatálních ledvin in vivo (obr. 6C), ale shluky představující progenitory nefronů a špičky ureterických pupenů v transplantovaných ledvinách chyběly (obr. 6C, obr. S5C a D). Ačkoli důvod tohoto neočekávaného vyčerpání nefrogenní niky zůstává neznámý, může vysvětlovat menší velikost transplantovaných ledvin ve srovnání s ledvinami in vivo, jak diskutujeme v pozdější části. Nicméně ostatní buněčné populace byly seskupeny do podobných vzorů jako v ledvinách v neonatálním stádiu (obr. 6C). Hladiny exprese většiny genů závislých na zrání v podocytech a proximálních tubulech v transplantovaných ledvinách byly srovnatelné s hladinami v P0 ledvinách (obr. 6D, obr. S6, tabulka S2). Nicméně, mnoho genů ve sběrných kanálcích bylo exprimováno na nižších úrovních než ty v P{{10}} ledvinách, včetně Cdkn2b (obr. 6D, obr. S6, tabulka S2). Naproti tomu exprese Aqp2 a Aqp3 byly relativně udržovány na srovnatelných úrovních jako v P0 ledvinách (obr. 6D). Kromě toho Wnt9b a Hoxd3, které byly downregulovány na P0 in vivo, zůstaly v transplantovaných ledvinách vysoké (obr. S4A), takže sběrné kanálky v transplantovaných ledvinách byly pravděpodobně nezralejší než ledviny při P0. Podobná tendence, i když v menší míře, byla pozorována u LOH (obr. 6D, obr. S6). Tyto výsledky naznačují, že zrání nemusí nutně probíhat synchronně napříč všemi buněčnými liniemi.
DiskuseZrání orgánů je jedním z nejdůležitějších aspektů vývojové mentální biologie. V biologii kmenových buněk se transplantace často využívá k indukci zrání pluripotentních organoidů odvozených z kmenových buněk, včetněledvinaorganoidy. Přesné stanovení fází zrání je však obtížné kvůli nedostatku molekulárních souřadnic pro zrání. Provedli jsme tedy scRNA-seq analýzu embryonálních myšíledvinyv různých vývojových stádiích, což umožnilo identifikaci genů, které vykazovaly expresi závislou na stádiu ve zrání embryíledviny. Aplikací těchto informací na data scRNA-seq v transplantovaných embryonálních ledvinách jsme dále zjistili, že proces zrání po transplantaci probíhal blízko novorozeneckému stádiu, ale nesynchronně napříč buněčnými liniemi. Na rozdíl od hromadného sekvenování byla scRNA-seq schopna vyhodnotit genové exprese v nejzralejších frakcích každé buněčné linie, což umožnilo přesné srovnání s odpovídajícími subpopulacemi ve vyvíjejících se ledvinách i v transplantovaných ledvinách.ledvinas. Bylo prokázáno, že vybrané seznamy genů pro exprese závislé na stádiu fungují jako molekulární souřadnice pro hodnocení stádií zrání jednotlivých linií. Přidání sekvenčních dat scRNA v postnatálních ledvinách v různých stádiích a ledvinách dospělých by vytvořilo další užitečné zdroje pro hodnocení zrání.
Abychom zjistili, zda lze podobných výsledků dosáhnout pomocí již existujících datových souborů, znovu jsme analyzovali publikovaná data scRNA-seq v E14.5 a P1ledviny(Adam et al., 2017a; Magella et al., 2017). Grafy UMAP však ukázaly, že shluky představující zralé populace většiny buněčných typů v P1 chyběly v datech E14.5 (obr. S7A a B), což nám bránilo v porovnání genové exprese v
odpovídající shluky mezi dvěma stupni. Jedinou výjimkou byly špičky ureterických pupenů. Ret þ klastry byly zjištěny v obou fázích, a Lcn2 byl upregulated na P1 (obr. S7C), v souladu s našimi výsledky. Preexistující údaje tedy měly omezené použití, což zdůrazňovalo důležitost dat scRNA-seq a seznamů genů v této studii. Ukázali jsme, že podocyty a proximální tubuly u transplantovanýchledvinydozrály blízko novorozeneckému stádiu, zatímco sběrné kanálky zůstaly relativně nezralé. Základní důvody pro zhoršení zrání sběrných kanálků zbývá objasnit. Jedním z možných důvodů může být snížení fyzické síly vyvolané prouděním moči, protože sběrné kanálky jsou umístěny nejdále po proudu v močovém traktu. Transplantovali jsme embryonálníledvinys kloakou, s cílem lepšího zachování průtoku moči ve srovnání s konvenční transplantací izolovaných ledvin (obr. S5). Zůstává však možné, že průtok moči nebyl dostatečný k podpoře zrání spodní části segmentů nefronů. Alternativně mohou sběrné kanály již utrpět mechanické poškození způsobené zpětným tokem z močového měchýře, ačkoli zjevná hydroureter nebo hydroefróza nebyla v době analýzy pozorována. Následné spojení močového měchýře z dárce s hostitelským močovodem bylo


Obr. 6. Zrání transplantovanýchledvinyv blízkosti novorozeneckého stádia. (A) Pohled na celou montáž E12.5ledvinas kloakou před transplantací (den 0). Celkový pohled a histologická analýza s hematoxylinem a eozinovým barvením transplantované ledviny s močovým měchýřem odebraným 12. den po transplantaci. Červená šipka: přítomnost moči v močovém měchýři. Měřítko: 500 μm. (B) Imunobarveníledvina12. den po transplantaci markery pro proximální tubuly (LTL: zelená), Henleho kličky (SLC12A1: červená) a sběrné kanálky (KRT8: šedá). Měřítko: 200 μm. (C) UMAP grafy embryonálních ledvin in vivo (E15.5 a PO) a transplantovaných embryonálních ledvin (den 12 po transplantaci). Šipka: progenitor nefronu (NP); hrot šípu: hrot ureterického pupenu (UB). POD: podocyt; PEC: glomerulární parietální epiteliální buňka; DN: diferenciační nefron; PT: proximální tubulus; LOH: Henleho smyčka; DT: distální tubulus; CD: sběrné potrubí; CD-IC: interkalovaná buňka sběrného kanálku; IC; intersticiální buňka; EC: endoteliální buňka; UT: močovod; BC: krvinka. (D) Houslové grafy genů závislých na stádiu u transplantovanýchledvinyve srovnání s embryonálními ledvinami in vivo (E15.5 a P0).
uvedl, že inhibuje hydronefrózu a napomáhá dalšímu vývoji (Yokote et al., 2015), takže by bylo informativní analyzovat exprese našich genů maturačních markerů v takových transplantacích. I když jsou zapotřebí další studie, naše seznamy genů se ukázaly jako užitečné pro posouzení stavu zrání jednotlivých linií ve vývojiledvinystejně jako u transplantovanýchledviny. Naše RNA-seq data budou také sloužit jako užitečné souřadnice pro posouzení stavu zráníledvinaorganoidy odvozené z pluripotentních kmenových buněk. Současné ledvinové organoidy představují ty v embryonálních stádiích (Taguchi a Nishinakamura, 2017; Takasato et al., 2015; Wu et al., 2018) a další zrání je nutné pro modelování onemocnění a případně pro generování transplantovatelných ledvin. V současnosti je k dispozici jen málo metod pro měření fází zrání organoidů, kromě morfologických analýz. Naše výsledky tedy poslouží jako základ pro molekulární detekci zrání organoidů. Zatímco konvenčníledvinaorganoidy se skládají hlavně z nefronů (glomeruly aledvinovétubulů), nedávno jsme zaznamenali generování struktur ledvin vyššího řádu, zahrnujících větvené ureterické pupeny s nefrony distribuovanými kolem špiček ureterických pupenů (Taguchi a Nishinakamura, 2017). Dosáhli jsme toho kombinací myších ESC odvozených progenitorů nefronů a ureterických pupenů s embryonálními stromálními progenitory a mělo by být teoreticky možné v blízké budoucnosti vytvořit organotypickéledvinastruktur pouze z myších ESC a případně z lidských iPSC. Dalším krokem by tedy byla transplantace organoidů pro další zrání. Naše data scRNA-seq poslouží jako užitečné referenční nástroje pro posouzení stádií zrání transplantovaných organoidů.
Vyčerpání nefrogenní niky u transplantovanýchledvinybyl nečekaný. Ačkoli to není hlavní rozsah této studie zaměřené na zrání, toto vyčerpání může vysvětlit menší velikost transplantovaných ledvin ve srovnání s ledvinami in vivo. Progenitory nefronů u myší pokračují ve vzniku vznikajících nefronů až několik dní po narození (Hartman a kol., 2007; Rumballe a kol., 2011; Volovelsky
et al., 2018) a předčasná deplece progenitorů nefronů vede k ledvinám menší velikosti (Kanda et al., 2014; Self et al., 2006). Zbývá určit, které udržovací faktory u transplantovaných chybíledvinya zda je primární příčinou tohoto jevu ztráta progenitorů nefronů nebo špiček ureterických pupenů. Řešení těchto záhad nakonec povede k růstu transplantovanýchledvinaorganoidy k a
srovnatelná velikost sledvinyin vivo. Celkově vzato jsme prokázali, že naše data a seznamy genů scRNA-seq mohou sloužit jako molekulární základy pro posouzení stádií zrání embryonálních a transplantovaných ledvin a byly by použitelné pro organoidy ledvin odvozené z iPSC. Přestože jsme se v této studii zaměřili na vývoj a zrání nefronů, podrobné analýzy dalších linií, jako jsou stromální a endoteliální buňky, pomocí našich dat scRNA-seq poskytnou více vhledů doledvinazrání.
Materiály a metody
scRNA-seq analýzyLedviny byly disociovány protokolem modifikovaným z dříve popsané metody (Tanigawa et al., 20}16) a použity pro analýzy scRNA-seq. C57BL/6N myši (CLEA Japan Inc.) byly použity pro E15.5 a E17.5 analýzy a FoxdlGFPCreER; tdTomato a Tbx18MerCreMer: Pro analýzy P0 byly použity myši tdTomato na smíšeném genetickém pozadí C57BL/6N a ICR (Grisanti et al., 2013; Kobayashi et al., 2014). Šestledvinypři E15,5 byly štěpeny po dobu 10 min v 0,25% trypsinu/EDTA. E17.5 a P0 samiceledviny were minced roughly with forceps, digested with dissociation buffer comprising 2 mg/ml collagenase (Sigma; Cat# 9407), 2.4 U/ml dispase (Gibco; Cat# 17105-041), 2 mM CaCl 2 (Wako; Cat# 031–00435), 50 μ g/ml DNase I (Sigma; Cat# 11284932001), and 10% fetal calf serum (FCS) (Sigma; Cat# 172012) in Dulbecco's modified Eagle's medium (DMEM) (Sigma; Cat# D5796) for 15 min at 37? C, washed with phosphate-buffered saline (PBS), and treated with 0.25% trypsin/EDTA for 10 min. Trypsin was inactivated by addition of DMEM/10%FCS containing50 μ g/mlDNaseI,andthecells werewashed with HEPES-buffered saline solution (Thermo; Cat# 14185-052) containing 2% FCS, 50 μ g/ml DNase I, 1 mM CaCl 2 , and 0.035% NaHCO 3 (Wako; Cat# 191–01305). Cells were resuspended in 0.04% BSA/PBS, filtered through a 40- μ m-pore strainer (Falcon; Cat# 352340), and evaluated for their cell number and viability (>90 procent ) pomocí automatického počítadla buněk Countess (Thermo; Cat# C10227). Celkem 5000 disociovaných buněk, každá z E15.5 a E17.5, a dva vzorky (5000 buněk na vzorek) z P0 byly aplikovány na Chromium Controller (10x Genomics) . Sada Chromium Single Cell 3 0 Library & Gel Beads Kit v2 (10x Genomics) byla použita ke generování knihoven cDNA aktivovaných oligo-dT, které byly poté sekvenovány pomocí Illumina HiSeq 3000 (14 000 čtení pro E15.5; 7 000 čtení pro E17.5; 14 000 čtení pro P0). Hodnoty RNA báze Q30 (Q-skóre udávající kvalitu sekvenování) vzorků byly 86,2 procenta pro E15.5, 63,8 procenta pro E17.5 a 93,6 procenta pro P0.
Nezpracovaná sekvenční data byla zpracována pomocí příkazu cell ranger count z Cell Ranger (verze 3.0.2; 10x Genomics), aby se vygenerovaly početní tabulky jedinečných molekulárních identifikátorů (UMI) pro každý gen. na buňku. Nejprve jsme integrovali dva vzorky P0 pomocí příkazu cell ranger aggr z Cell Ranger, abychom vygenerovali jeden kombinovaný vzorek P0. V tomto okamžiku jsme získali 4 158, 5 551 a 10 810 buněk pro vzorky E15.5, E17.5 a P0 se čtením média 4 493, 2 360 a 2 467 genů na buňku. Tyto tři individuálně generované datové sady byly integrovány pomocí příkazu cell ranger aggr. Všechny následné analýzy byly provedeny ve statistickém programovacím jazyce R (R Core Team, 2018). Balíček Seurat (verze 3.1.1) byl použit pro analýzy včetně kontroly kvality, normalizace dat, škálování dat a vizualizace (Butler et al., 2018) (Stuart et al., 2019a). Pro kontrolu kvality buňky, které exprimovaly<200 genes,="">8000 genes (possibly representing doublets), or >20 procenta mitochondriálních genů byla odfiltrována. Konečný soubor dat obsahoval 20 672 genů a 3 441, 4 592 a 8 161 buněk ve vzorcích E15.5, E17.5 a PO (celkem: 16 194 buněk). Pro redukci rozměru byla použita analýza hlavních komponent s hodnotou rozměru 74 určenou funkcí JackStrawPlot (Chung a Storey, 2015). Top 2000 vysoce variabilních genů bylo vybráno funkcí FindVariableFeatures a použito spolu s rozměrovými informacemi pro shlukování. Segmentace shluků byla provedena s použitím hodnoty rozlišení 2,4. Příkaz FindClusters vygeneroval celkem 45 shluků, které bylo možné snadno odlišit markerovými geny specifickými pro clustery získanými pomocí funkce Find Markers balíčku Seurat. Cluster26 se pravděpodobně skládal z umírajících buněk, které unikly z parametrů filtrování, protože nevykazoval žádné specifické markerové geny, nízké mitochondriální geny a relativně nízký počet funkcí. Grafy UMAP (Uniform Manifold Approximation and Projection for Dimension Reduction) byly vytvořeny pomocí balíčku uwot (Becht et al., 2019). Získané souřadnice UMAP, souřadnice klastru Seurat a klastrově specifické markery byly exportovány jako soubory csv pro konfirmační analýzu pomocí softwaru Loupe Cell Browser (10x Genomics). Data scRNA-seq byla uložena v Národním centru pro biotechnologickou informační genovou expresi Omnibus (GSE149134).
Výběr kandidátů genů závislých na vývojovém stádiu
Abychom vybrali kandidáty genů závislých na vývojovém stádiu v každém shluku, použili jsme funkci FindMarkers k zachycení genů, které byly upregulovány na P0 ve srovnání s E15.5 (např. porovnání mezi shluky
8 at P0 and cluster 8 at E15.5 for podocytes). Subsequently, we utilized the AverageExpression function to add the average gene expression data for each cluster at each stage for stage-dependent comparisons (log-fold change >1 a p-hodnota<0.05). to="" determine="" segment-specific="" genes,="" we="" compared="" the="" target="" cluster="" with="" all="" other="" clusters="" at="" p0="" and="" selected="" the="" genes="" with="" low="" p-values="" (p="" <="" 0.05)="" and="" low="" expression="" rates="" in="" other="" clusters="" (pct2=""><0.11). after="" selecting="" the="" overlapping="" genes,="" we="" verified="" them="" in="" umap="" plots="" to="" finalize="" the="" lineage-specific="" stage-dependent="">

Imunohistochemická analýzaParafinové řezy byly podrobeny získání antigenu v citrátovém pufru, promyty třikrát PBS a blokovány inkubací s 1% BSA v PBS po dobu 1 hodiny při teplotě místnosti. Řezy byly poté inkubovány přes noc s primárními protilátkami při 4 °C. C, následovala inkubace se sekundárními protilátkami konjugovanými s barvivy Alexa Fluor po dobu 90 minut při teplotě místnosti. Jádra byla obarvena 4,6-diamidino-2-fenylindolem (Roche; kat. č. 10236276001). Byly použity následující primární protilátky: biotinylované LTL (Vector Laboratories; B-1325), králičí anti-SLC12A1 (StressMarq Bioscience; SPC-401D), potkaní anti-KRT8 (Develop-mental Studies Hybridoma Bank, University of Iowa; Troma-I), morčecí anti-NPHS1 (Progen; GP-N2); a králičí anti-CD31 (Abcam; ab28364). Fluorescenční snímky byly zachyceny konfokálním mikroskopem LSM780 (Carl Zeiss) nebo konfokálním mikroskopem FV3000 (Olympus).
In situ hybridizaceAnalýza RNAscope 10% formalínem fixovaných parafinových řezů byla provedena pomocí RNAscope Multiplex Fluorescent Reagent Kit v2 (ADC; kat. č. 323100). Amplifikace signálu byla provedena pomocí TSA plus fluoroforů (Thermo Fisher Scientific). Podrobnosti o sondách RNAscope jsou uvedeny v tabulce S3. In situ hybridizace Kap na bázi digoxigeninu byla provedena, jak je popsáno (Kaku et al., 2013) pomocí automatizovaného Discovery System (Roche), podle protokolů výrobce. Kap sonda byla klonována pomocí PCR za použití specifických primerů (tabulka S3) a značena digoxigeninem za použití RNA polymerázy. Pro každou sondu byly vyšetřeny dva až tři vzorky v každém embryonálním stádiu a vykazovaly konzistentní výsledky.
Transplantace myších embryonálních ledvinBřezí samice myší C57BL/6N (E12.5) a dospělí samci myší (8–12 týdnů) byli zakoupeni od společnosti CLEA Japan Inc. a umístěni ve specifickém zařízení pro zvířata bez patogenů. Dospělé hostitelské myši byly anestetizovány peritoneálním podáním normálního fyziologického roztoku obsahujícího 0,75 mg/kg medetomidinu, 4{{1{12}}}} mg/kg midazolamu a 5.0 mg /kg butorfanolu. Embryonální ledviny myší s kloakou v E12.5 byly transplantovány do tuku nadvarlete hostitelských myší (Yokote et al., 2015). Po operaci byl podáván atipamezol jako antagonista anestetika. Transplantované embryonální ledviny byly odebrány 12 dní po transplantaci. Pro analýzu scRNA-seq byly ledviny disociovány podobně jako ledviny PO. Všechny pokusy na zvířatech byly provedeny v souladu s našimi institucionálními pokyny a byly schváleny etickou komisí Univerzity Kumamoto (#A2019-113).
Re-analýza veřejně dostupných dat scRNA-seqData scRNA-seq pro embryonální myši E14.5ledvinaa P1ledvina(Adam et al., 2017b; Magella et al., 2017) byly staženy z Gene Expression Omnibus (přístupová čísla, GSE94333 a GSE104396, v tomto pořadí). Všechny následné analýzy těchto dat byly provedeny ve statistickém programovacím jazyce R (R Core Team, 2018) a balíček Seurat (verze 3.2.2) byl použit pro analýzy včetně kontroly kvality, normalizace dat, škálování dat a vizualizace, jak je popsáno v části 4.1.