Metformin zlepšuje kmenovost kmenových buněk pocházejících z lidské tukové tkáně pomocí downmodulace
Jul 14, 2022
Prosím kontaktujteoscar.xiao@wecistanche.comPro více informací
Abstraktní:Tuková tkáň hraje důležitou roli v regulaci metabolické homeostázy tím, že ukládá přebytečný tuk a chrání ostatní orgány před lipotoxicitou. Stárnutí je spojeno s centrální redistribucí tuku, která vyvrcholí poklesem subkutánního podání citlivého na inzulín a zvýšením viscerálních tukových zásob odolných vůči inzulínu. Tukové kmenové buňky (ASC) hrají důležitou roli v regeneraci tukové tkáně. Stárnoucí ASC vykazují sníženou schopnost kmene a regenerační potenciál v důsledku akumulace oxidačního stresu a poškození buněk souvisejících s mitochondriální dysfunkcí. Metformin je dobře zavedené antidiabetikum, které prokázalo účinky proti stárnutí u různých organismů a zvířecích modelů. V této studii jsme analyzovali účinek léčby metforminem na kmenovost lidských ASC v modelech buněčné kultury a celé tukové tkáně. Naše výsledky ukazují, že metformin zlepšuje kmenovost ASC, snižuje jejich rychlost proliferace a diferenciace adipocytů. Při zkoumání možného základního mechanismu jsme pozorovali pokles aktivity mTOR a ERK v ASC léčených metforminem. Kromě toho jsme pozorovali zvýšení aktivity autofagie po léčbě metforminem. Došli jsme k závěru, že léčba metforminem zlepšuje kmenovost ASC snížením mTOR a ERKsignalizace a posílením autofagie. Budoucí hodnocení in vivo na zvířecích modelech a lidech připraví cestu pro klinickou adaptaci tohoto dobře zavedeného léku pro oživení kmenových buněk starých kmenových buněk.

klíčová slova:tukové kmenové buňky; tukové tkáně; stopka; diferenciace; proliferace; metformin; mTOR; ERK; autofagie
1. Úvod
Tuková tkáň je dynamický orgán, který hraje důležitou homeostatickou roli při regulaci rovnováhy živin, citlivosti na inzulín a imunitní modulaci. Tuková tkáň plní tuto roli ukládáním a oxidací přebytečných mastných kyselin, čímž zabraňuje steatóze a lipotoxicitě v jiných orgánech [1]. Inzulinová rezistence související s věkem je nejčastější metabolické onemocnění. Přibližně 25 procent americké populace nad 65 let trpí cukrovkou, což má za následek vyšší úmrtnost, snížený funkční stav, zvýšené riziko hospitalizace a nadměrnou zátěž pro ekonomiku zdravotnictví [2]. Přestože souvislost mezi diabetem a obezitou byla již dlouho uznávána, souvislost mezi stárnutím a diabetem 2. typu zůstává nejasná [3]. První pozorování týkající se poklesu glukózové tolerance se stárnutím bylo provedeno v roce 1921 [4]. Několik studií od té doby identifikovalo sníženou inzulinovou senzitivitu jako primární příčinu věkem podmíněného poškození metabolismu glukózy [5,6]. Na základě anatomické lokalizace lze tukovou tkáň rozdělit do dvou depot: subkutánní a viscerální tuková depota. Umístění a funkce depa tukové tkáně jsou důležité z hlediska citlivosti na inzulín; například viscerální depot je odolnější, zatímco subkutánní depot je citlivější na inzulín [7]. Postupná ztráta objemu podkožní tukové tkáně související s věkem má za následek snížení vychytávání glukózy a lipidů, což vede k přetečení lipidů a ektopickému ukládání lipidů ve svalu a játrech, což přispívá k rozvoji inzulinové rezistence [8].
Tuková tkáň se skládá z různých typů buněk. Enzymatické štěpení tukové tkáně kolagenázou produkuje dvě hlavní frakce: adipocytovou frakci a stromální vaskulární frakci (SVF)[9]. SVF zahrnuje kmenové buňky odvozené z tukové tkáně (ASC), lymfocyty, endoteliální buňky, pericyty a fibroblasty [10]. ASC jsou definovány imunofenotypicky jako CD34 plus CD90 plus CD29 plus CD{7}}CD31 buňky mezenchymálního původu, vykazující tříliniové diferenciační schopnosti na kost, chrupavku nebo tuk [11,12]. V bílých tukových tkáních se tyto buňky nacházejí hlavně ve vaskulárním stromatu kolem malých krevních cév a mohou proliferovat a diferencovat se na adipocyty[11]. Kmenové buňky odvozené z tukové tkáně (ASC) hrají důležitou roli při regeneraci tukové tkáně tím, že procházejí proliferací, sebeobnovou a diferenciací. Stárnutí je spojeno se ztrátou těchto vlastností stonku u ASC [13,14]. Předpokládá se, že pokles velikosti depot podkožního tuku související s věkem je způsoben změněnou replikací a diferenciací ASC[15-17]. Findeisen a kol. naznačují akumulaci oxidačního stresu v tukové tkáni během stárnutí, což negativně ovlivňuje diferenciační kapacitu;[15] přesný mechanismus (mechanismy) za ztrátu kmene v ASC však není znám. Nedávné studie ukázaly, že snížená autofagie, vyšší mechanická aktivita dráhy rapamycinu (mTOR) a akumulace reaktivních forem kyslíku (ROS) jsou spojeny se ztrátou kmene v ASC a předčasnou indukcí stárnutí v ASC [18-20].
Cistanche může proti stárnutí
Metformin je antidiabetikum běžně používané ke snížení hladiny cukru v krvi a zlepšení citlivosti na inzulín. Může být použit k léčbě různých metabolických poruch souvisejících se stárnutím, jako jsou kardiovaskulární onemocnění, rakovina a kognitivní pokles [21,22]. Účinky metforminu prodlužující dlouhověkost byly prokázány u červů, myší a potkanů prostřednictvím dietního omezení, které napodobuje účinek stimulace aktivity adenosinmonofosfátem aktivované proteinkinázy (AMPK)[23]. Různé studie ukázaly, že metformin inhibuje savčí cíl rapamycinu (mTOR)[24,25]. Signální dráhy AMPK-mTOR specificky regulují charakteristiky buněčných homeostáz, jako je autofagie, proliferace, energetický metabolismus a syntéza proteinů [26]. Bylo prokázáno, že metformin inhibuje proliferaci, diferenciaci a zánět, snižuje oxidační stres a mitochondriální potenciál a zlepšuje celkovou kmenovost u různých typů dospělých kmenových buněk [27,28]. Účinek metforminu na metabolismus a kmenovost ASC in vitro a in vivo není jasný.
V této studii jsme použili 2D kultivaci lidských ASC a techniky kultivace celé lidské tukové tkáně k simulaci in vivo buněčné organizace a tkáňového mikroprostředí. Pomocí těchto experimentálních modelů jsme studovali účinek léčby metforminem na diferenciaci, proliferaci a kmenovost ASC a zkoumali jsme molekulární mechanismy zapojené do těchto buněčných procesů.
2. Materiály a metody
2.1. Specifikace dárce
Tuková tkáň byla odebrána od pěti nediabetických dárců ve věkovém rozmezí 39±13 a BMI v rozmezí 27±4, které podstoupily elektivní plastickou chirurgii na University of Pittsburgh Medical Center (UPMC). Postup odběru tkáně byl schválen Institucionální revizní radou University of Pittsburgh (IRB č.0511186).
2.2. Izolace a kultivace lidských ASC
Tukové prekurzorové buňky byly izolovány následovně [19,29]. Biopsie tukové tkáně po chirurgických zákrocích byly přeneseny do laboratoře ve sterilním uzavřeném kontejneru. Tkáň byla opláchnuta Dulbeccovým fyziologickým roztokem pufrovaným fosfátem (PBS; Sigma-Aldrich, St.Louis, MO, USA) s následným odstraněním vláknitého materiálu a krevních cév disekcí. Tkáň byla nařezána na kousky (1-2 mg) a štěpena v trávicím pufru (HBSS obsahující 200 U/ml kolagenáz (CLS Type II, Worthington Biochemical Corp., Lakewood, NI) , USA) a 2 procenta w/o BSA (Sigma-Aldrich, St. Louis, MO, USA)) za míchání po dobu 60 minut při 37 stupních; 1 mg tukové tkáně/3 ml štěpícího pufru. Dispergovaná tkáň byla centrifugována po dobu 10 minut při 200 x g při teplotě místnosti. Plovoucí adipocyty byly odsáty a peletované buňky stromální vaskulární frakce (SVF) byly suspendovány v pufru pro lýzu erytrocytů (0,155 M NH4CI, 5,7 mM K2HP04, 0,1 mM EDTA, pH 7,3) a inkubovány po dobu 10 minut při teplotě místnosti. K odstranění úlomků tkáně byla buněčná suspenze přefiltrována přes nylonovou síťku (velikost pórů 100 um; Thermo Fisher Scientific, Waltham, MA, USA). Po dalším kroku centrifugace (10 minut při 200 x g) byl peletovaný SVF suspendován v médiu ASC (Dulbeccovo modifikované Eagleovo médium (DMEM)/F-12 médium (1:1) s HEPES a L-glutaminem (Thermo Fisher Scientific, Waltham, MA, USA), doplněný 33 μM biotinem (Sigma-Aldrich, St. Louis, MO, USA), 17 μM pantothenátem(Sigma-Aldrich, St.Louis, MO, USA),10 ng/ml EGF,1 ng/ml bFGF, 500 ng/ml inzulínu, 2,5 procenta fetálního hovězího séra a 12,5 μM/ml gentamicinu (Sigma-Aldrich, St. Louis, MO, USA) a naočkováno v hustotě 50000 buněk /cm2 v baňkách T175.
Po dosažení 70 procent konfluence byly buňky promyty PBS a trypsinizovány za použití 0,05% roztoku trypsin-EDTA 1x (Sigma-Aldrich, St.Louis, MO, USA). Trypsin byl inaktivován přidáním média ASC plus 10 procent FBS a odstraněn centrifugací při 300 x g po dobu 5 minut předtím, než byly buňky naočkovány v hustotě 5000 buněk/cm2. ASC byly před rozdělením opět pěstovány do 70% konfluence. V této studii byly použity ASC v pasážích 3-4. Buňky byly ošetřeny různými koncentracemi metforminu (Sigma-Aldrich, St.Louis, MO, USA), rapamycinu (Sigma-Aldrich, St. Louis, MO, USA) nebo inhibitoru U0126 podle experimentálního schématu.
2.3. Adipogenní diferenciace
Pro indukci adipogeneze byly ASC nasazeny v hustotě 50,{1}} buněk/cm² na 6-jamkové destičky pro kultivaci buněk. Adipogeneze byla indukována pomocí diferenciačního média složeného z 0,2 uM inzulinu (Sigma-Aldrich, St. Louis, MO, USA),0,5 mM 1-methyl{{9 }}isobutylxanthin (IBMX) (Sigma-Aldrich, St. Louis, MO, USA), 0,25 μM dexamethason (Sigma-Aldrich, St. Louis, MO, USA) a 10 ug/ml transferinu (Aldrich, St. Louis, MO, USA) v ASCmedium. Po 3 dnech diferenciace bylo médium vyměněno a buňky byly kultivovány v diferenciačním médiu bez IBMX po dobu 14 dnů.
2.4.Kultura tukové tkáně
Kultivace tukové tkáně byla provedena v 6-jamkových destičkách pro kultivaci buněk, s určitou modifikací, jak publikovali Harms et al. [30]. Celá tuková tkáň byla nasekána na menší kousky o velikosti 3-5 mm a kultivována v 5 ml buněčného kultivačního média. Buněčná sítka s velikostí pórů 70 μM byla udržována nad tkáňovými fragmenty, aby tkáň zůstala ponořená v médiu. Tkáňové fragmenty byly štěpeny kolagenázou, jak je vysvětleno výše pro postup izolace ASC, a SVF byl analyzován na expresi kmenových genů spojených s ASC.
2.5. Moření olejová červená O
Pro vizualizaci lipidových kapének byly buňky fixovány 4% paraformaldehydem v PBS po dobu 1 hodiny a obarveny 0,3% olejovou červení O (Sigma-Aldrich, St. Louis, MO, USA) ve směsi isopropanol/voda ( 60:40) po dobu 1 hodiny. Konečné promytí bylo provedeno dvakrát destilovanou vodou. Pro kvantifikaci absorbované Oil Red O bylo barvivo eluováno isopropanolem (Sigma-Aldrich, St.Louis, MO, USA) a optická hustota byla měřena při 518 nm.
2.6. Barvení těla
V den 14 po indukci adipogeneze byly buňky barveny Bodipy (Invitrogen, Waltham, MA, USA) a Hoechst (Sigma-Aldrich, St. Louis, MO, USA) po dobu 30 minut při 37 stupních. Snímky byly získány pomocí fluorescenčního mikroskopu a analyzovány pomocí softwaru ImageJ.
2.7. FlouCytometrie
ASC v pasáži tři byly použity pro průtokové cytometrické analýzy pro povrchovou expresi CD29 (Biolegend, San Diego, CA, USA), CD90 (Biolegend, San Diego, CA, USA), CD45 (BD, Franklin Lakes, NJ, USA) CD24 (Biolegend, San Diego, CA, USA) a CD31 (BD, NJ, USA). Buňky byly trypsinizovány, promyty PBS a barveny protilátkami v FACS barvicím pufru (1 procento BSA v PBS). Neobarvené ASC byly použity jako kontrola. Fluorescenční signál byl měřen pomocí průtokového cytometru (Fortessa, BD, Franklin Lakes, NJ, USA) a data byla analyzována pomocí softwaru FlowJo (BD, Franklin Lakes, NJ, USA).
2.8. Osteogenní diferenciace
ASC byly pěstovány do konfluence v {{0}}jamkových destičkách a osteogenní diferenciace byla indukována pomocí osteogenního média (DMEM 10 procent FBS, 0,1 uM dexamethason, 10 mM -glycerol fosfát a 50 μM kyselina askorbová). V den 21 po diferenciaci byly buňky fixovány ve 4% paraformaldehydu (Sigma-Aldrich, St. Louis, MO, USA) a obarveny barvivem Alizarin Red Stain (Sigma-Aldrich, St. Louis, MO, USA). byla provedena pomocí softwaru Image J.
2.9. Detekce apoptózy barvením annexinem V-APC/PI
Apoptotická buněčná smrt byla měřena pomocí soupravy Annexin V-APC/PI (Biolegend, San Diego, CA, USA). Celkem 10,000(buňky/jamka) ASC byly nasazeny na 6-jamkové destičky a inkubovány při 37 stupních s 5 procenty CO2. Buňky byly ošetřeny metforminem (0,25 mM, 0,5 mM, 1 mM, 2,5 mM a 5 mM) (Sigma-Aldrich, St. Louis, MO, USA). Po 72 hodinách působení byly buňky shromážděny trypsinizací a obarveny 2,5 μl AnnexinV-APC a 2,5 μl PIin vazebného pufru, inkubovány ve tmě při pokojové teplotě po dobu 15 až 20 minut a analyzovány průtokovou cytometrií (Fortessa, BD, NJ, USA).
2.10. Detekce reakčních druhů kyslíku
Hladiny ROS byly stanoveny pomocí sondy fluorescenčního barviva 2',7'-dichlorfluorescein diacetátu (DCFH2-DA) (Invitrogen, Waltham, MA, USA). ASC (10, 000 buněk/jamka) byly kultivovány v 6-jamkové destičce a inkubovány s metforminem (5 mM) při 37 stupních, 5 procent CO, po dobu 72 hodin. Po inkubaci byly ASC trypsinizovány a obarveny 50uM barvivem DCFH2-DA po dobu 30 minut při 37 stupních a analyzovány pomocí fluorescenčního mikroskopu.
2.11. Barvení TMRM
ASC (10,{1}} buněk/jamka) byly kultivovány na 6-jamkové destičce, ošetřeny různými dávkami metforminu (5 mM) po dobu 72 hodin a inkubovány při 37 stupních se 100 nM TMRM (Sigma-Aldrich , St. Louis, MO, USA) po dobu 30 minut při 37 °C. Po inkubaci byly buňky pozorovány pod fluorescenčním mikroskopem. Image] byl použit ke kvantifikaci fluorescence mikroskopických snímků.
2.12. Kvantitativní RT-PCR genová exprese
Celková RNA byla izolována pomocí RNeasy Micro Kit (Qiagen, Hilden, Německo) a syntéza cDNA byla provedena pomocí RevertAid First Strand cDNA Synthesis Kit (Thermo Fisher Scientific, Waltham, MA, USA). Genově specifické primery byly zakoupeny od Sigma-Aldrich, St. Louis, MO, USA. Kvantitativní analýza exprese byla provedena pomocí Quantstudio 3 (Thermo Fisher Scientific, Waltham, MA, USA). Kvantifikace mRNA byla provedena za použití -aktinu pro normalizaci. Data pro každý genový transkript byla normalizována výpočtem rozdílu (ACt) mezi Ct-housekeeping a Ct-Target geny. Relativní zvýšení nebo snížení exprese bylo vypočteno porovnáním referenčního genu s cílovým genem (AACT) za použití vzorce pro relativní expresi (=24ACt).
2.13. Western Blot
Analýza Western blot byla provedena v podstatě tak, jak je popsáno [19]. Metoda použitá k normalizaci hladin proteinu byla "Pierce BCA Protein Assay Kit" (Thermo Fisher Scientific, Waltham, MA, USA). Buněčné lyzáty (15 ug celkového proteinu na dráhu) byly připraveny ve vzorkovém pufru s dodecylsulfátem sodným (SDS), separovány pomocí SDS-PAGE a blotovány na polyvinylidendifluoridové membrány. Byly použity následující protilátky: myší anti-lidský aktin (Proteintech, IL, USA), perilipin (Cell Signaling, MA, USA), fosfor-P70S6K (Cell Signaling, MA, USA), celkový P70S6K (Cell Signaling, MA, USA), pERK1/2 (Cell Signaling, MA, USA), celkový ERK1/2 (Cell Signaling, MA, USA), konjugát anti-myší IgG HRP (Proteintech, IL, USA) a králičí anti-krysí IgG HRP( Proteintech, IL, USA). Pro denzitometrické analýzy byl použit software Image J. 2.14 Statistická analýza
Statistické analýzy byly provedeny v GraphPad Prism (GraphPad Software Inc., La Jolla, CA, USA). Pro analýzu FACS byl použit FlowJo. Významnost rozdílu mezi průměry byla hodnocena Studentovým t-testem nebo analýzou rozptylu. Chyba je znázorněna jako průměr ± SEM. Hodnoty byly významné při hodnotách p<><0.01 and=""><>
3. Výsledky
Metformin je dobře zavedené antidiabetikum, u kterého bylo prokázáno, že hraje důležitou roli při prodlužování dlouhověkosti [31]. Abychom studovali účinek léčby metforminem na kmenovost kmenových buněk derivovaných z tukové tkáně, izolovali jsme ASC z tukové tkáně lidských dárců štěpením kolagenázou. Izolované ASC byly plastické a vykazovaly fibroblastickou nebo vřetenovitou morfologii. Analýza průtokovou cytometrií ukázala, že ASC byly pozitivní na markery mezenchymálních kmenových buněk, jako je CD29, CD90 a CD24, ale negativní na marker hematopoetické linie CD45 a marker endoteliální linie CD31 (obrázek 1A). Kromě zobrazení typického fenotypu ASC, ASC vykazovaly silný adipogenní a osteogenní diferenciační potenciál, identifikovaný barvením Bodipy a Alizarin Red S, v daném pořadí (obrázek 1B).cistanche แอ ม เว ย์Charakterizované ASC byly použity pro další experimenty v naší studii.
V literatuře bylo uvedeno, že metformin snižuje adipogenní diferenciaci kmenových buněk. Naším cílem je prozkoumat regulaci diferenciace adipocytů ASC po léčbě metforminem. ASC byly léčeny 1, 2,5 a 5 metforminem počínaje 2 dny před adipogenní indukcí a během procesu diferenciace. Bodipy a Oil Red Ostains byly použity k vizualizaci olejových kapiček 14. den po indukci diferenciace. Výsledky Oil Red O (obrázek 1C) a barvení Bodipy (obrázek 1D) odhalují, že léčba metforminem významně inhibuje adipogenní diferenciaci způsobem závislým na dávce ve srovnání s kontrolními buňkami. Inhibice adipogenní diferenciace byla dále potvrzena pomocí Western blot analýzy adipocytového diferenciačního markerového proteinu perilipin. Za tímto účelem byly buněčné lyzáty odebrány z diferencovaných buněk 14. den adipogenní diferenciace a byla analyzována exprese perilipinu. Naše výsledky Western blot ukazují významnou downregulaci exprese perilipinu po léčbě metforminem během adipogenní diferenciace (obrázek 1E), což korelovalo s poklesem skvrn Bodipy a Oil Red O. Došli jsme k závěru, že léčba metforminem inhibuje adipogenní diferenciaci lidských ASC, přičemž velikost inhibice pozitivně koreluje s léčebnou dávkou metforminu.
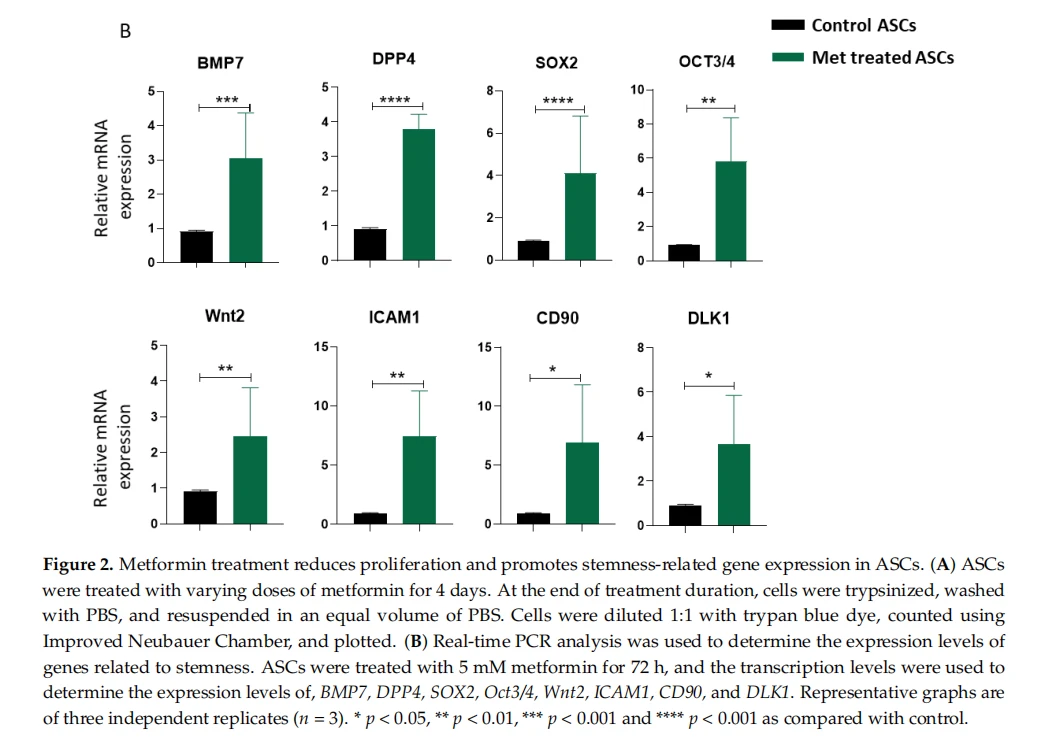
Vyšší míra diferenciace a proliferace má za následek ztrátu stonku. Protože jsme pozorovali, že metformin snižuje adipogenní diferenciaci, zajímalo nás zkoumání účinku léčby metforminem na proliferaci ASC in vitro. ASC byly ošetřeny metforminem a buňky byly spočítány 4. den po kultivaci v přítomnosti nebo nepřítomnosti metforminu. Z našich výsledků jsme pozorovali, že metformin významně snižuje rychlost buněčné proliferace ve srovnání s kontrolními ASC (obrázek 2A). Kmenové buňky hrají důležitou roli při regeneraci a údržbě tkání.kolik cistanche vzítK účinnému plnění své regenerační role si kmenové buňky potřebují zachovat svou kmenovou charakteristiku. Analyzovali jsme účinek léčby metforminem na expresi kmenových genů v ASC. Za tímto účelem jsme použili kvantitativní PCR v reálném čase k analýze genů souvisejících s udržováním kmene v ASC. Pozorovali jsme, že metformin významně upreguloval expresi markerů tukových kmenových buněk, jako jsou BMP7, DPP4, Sox2, Oct3/4, Wnt2, ICAM1, CD90 a DLK1, ve srovnání s kontrolními ASC (obrázek 2B). Naše výsledky ukazují, že léčba metforminem účinně zpomaluje proliferaci ASC, čímž brání buňkám před proliferačním vyčerpáním zvýšením exprese kmenových genů.
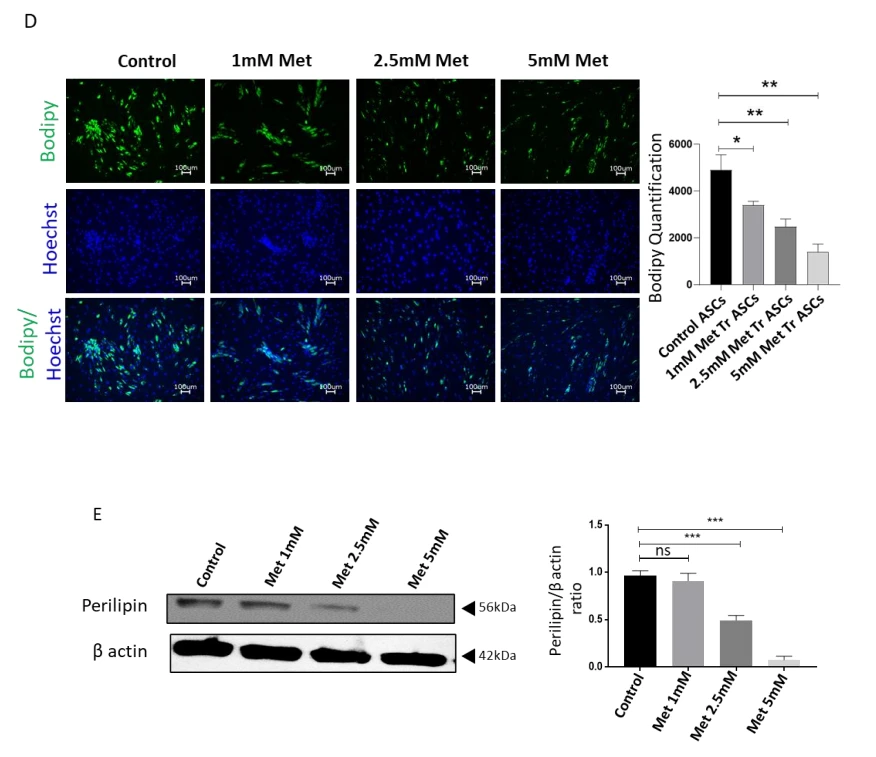
Obrázek 1. Léčba metforminem inhibuje adipogenní diferenciaci ASC způsobem závislým na dávce. (A) ASC byly testovány na expresi CD29, CD90, CD24, CD31 a CD45 průtokovou cytometrií. Jsou uvedeny jak procenta pozitivity znázorněná v histogramech, tak průměrná intenzita fluorescence (MFI) uvedená v tabulce kontroly (neobarvené ASC) a obarvené (ASC ošetřené příslušnými protilátkami). (B)ASC byly podrobeny adipogenní nebo osteogenní diferenciaci pomocí liniově specifických diferenciačních koktejlů. Diferenciace na adipocytovou linii byla potvrzena barvením Bodipy a osteogeneze byla potvrzena barvením Alizarin Red. Procento plochy obarvené alizarinovou červení bylo vypočteno pomocí obrázku J. (C) ASC byly ošetřeny diferenciačním koktejlem adipocytů v přítomnosti nebo nepřítomnosti různých dávek metforminu po dobu 14 dnů. Vývoj adipocytů v den 14 po indukci byl hodnocen barvením lipidových kapiček pomocí barviva Oil Red O. Bylo extrahováno barvivo Absorbed Oil Red O a byla změřena optická hustota. Optická hustota z kontrolních ASC byla brána jako 100 procent a byla vynesena relativní změna po léčbě metforminem (n =3). (D) Obsah lipidů v den 14 byl stanoven pomocí Bodipyho barviva (Green). Hoechst (modrý) byl použit k barvení jader.co je cistanche(E) Western blot analýza exprese proteinu perilipinu. -Aktin byl použit jako kontrola nanášení. Kvantifikace hustot proteinových pásů perilipinu normalizovaných na použitý -Aktin Obrázek J. Obrázky a grafy představují tři nezávislé replikáty (n=3). *str<0.05,**><0.01,***p><0.001 and="" ***=""><0.0001 as="" compared="" with="">
Abychom vyloučili, že pokles diferenciace a proliferace není způsoben žádnými cytotoxickými účinky metforminu na ASC, analyzovali jsme životaschopnost buněk ošetřených metforminem. Analýzy barvení AnnexinV/PI průtokovou cytometrií neprokázaly žádné významné zvýšení apoptotických nebo nekrotických buněk po ošetření zvyšujícími se koncentracemi metforminu až do 5 ve srovnání s kontrolou buněčného kultivačního média (obrázek 3A). Mitochondriální aktivita a tvorba reaktivních forem kyslíku (ROS) jsou důležité pro buněčnou diferenciaci a během adipogenní diferenciace byly pozorovány zvýšené úrovně mitochondriálního metabolismu a tvorby ROS [32]. Z našich výsledků jsme pozorovali, že léčba metforminem snižuje adipogenní diferenciaci ASC. Dále jsme zkoumali účinky na mitochondriální aktivitu a produkci ROS. ASC byly ošetřeny metforminem a obarveny TMRM pro hodnocení aktivity mitochondriální membrány a DCF2DA pro odhad koncentrace ROS. Snímky z fluorescenčního mikroskopu a kvantifikace fluorescenčního signálu odhalily, že léčba metforminem významně snižuje mitochondriální aktivitu (obrázek 3B, C) a produkci ROS (obrázek 3D, E). Došli jsme k závěru, že metforminem zprostředkovaný pokles mitochondriální aktivity a produkce ROS přispívá ke zvýšení kmene ASC.
Abychom porozuměli možné signální kaskádě odpovědné za sníženou diferenciaci adipocytů, proliferaci a upregulaci kmenových genů v ASC po léčbě metforminem, zaměřili jsme se na signální kaskády mTOR, autofagie a extracelulární signálem regulované kinázy (ERK). Předchozí studie prokázaly důležitou roli těchto drah při udržování kmene u ASC [19,33]. Signalizace ERK i mTOR hraje důležitou roli při podpoře buněčné proliferace a diferenciace. Poté, co byly ASC ošetřeny různými dávkami metforminu, byly buněčné lyzáty shromážděny a Western blot pro LC3, fosforylovanou-p70S6 kinázu, celkovou p70S6 kinázu, fosforylovanou-ERK42/44 a celkové ERKp42/44 protilátky. Beta-aktin byl použit jako housekeeping gen. Analýza Western blot ukázala, že ve srovnání s kontrolními ASC léčba metforminem snížila expresi fosforylované p70S6K a fosforylované-ERK42/44 kinázy (obrázek 4A, B, D). Signalizace ERK i mTOR hrají důležitou roli v regulaci autofagické dráhy.bioflavonoidyVýsledky Western blotu odhalily, že léčba metforminem zvyšuje autofagickou aktivitu v ASC (obrázek 4A, C). Dále jsme analyzovali expresi genů autofagické dráhy po léčbě metforminem na úrovni mRNA pomocí kvantitativní PCR v reálném čase. S analýzou qPCR jsme pozorovali významné zvýšení genů autofagické dráhy VMP1, P62, ATG5 a ATG7 po léčbě metforminem (obrázek 4E), což je v souladu se zvýšením aktivity autofagie ukázaným v našich výsledcích Western blot. V našich analýzách bylo také pozorováno nesignifikantní zvýšení exprese ATG 9. Dospěli jsme k závěru, že léčba metforminem snižuje aktivitu ERK a mTOR a zvyšuje autofagii v ASC jako možný základní mechanismus pro sníženou proliferaci a diferenciaci a zvýšenou kmenovost.
Abychom podtrhli přímou roli signalizace ERK a mTOR v inhibici diferenciace a zvýšení kmenovosti v ASC zprostředkované léčbou metforminem, samostatně jsme inhibovali signalizaci ERK a dráhu mTOR pomocí inhibitoru ERK U0126 a rapamycinu a analyzovali jsme účinky na ASC. diferenciace a kmenovosti [19,33]. Přidání inhibitoru ERK U0126 během adipocytové diferenciace ASC vedlo k významně snížené diferenciaci, jak odhalily snímky obarvené Bodipy a kvantifikaci fluorescence (obrázek 5A, B). Kvantitativní výsledky PCR v reálném čase ukazující upregulaci kmenových genů po specifické inhibici zprostředkované inhibitorem ERK signalizace (obrázek 5C) dále podpořila naše zjištění, že downregulace dráhy ERK léčbou metforminem přispívá ke zvýšení kmenovosti.
Poté jsme použili rapamycin, dobře známý inhibitor mTOR dráhy, který může aktivovat autofagii, a vyhodnotili jsme účinky na adipogenezi a expresi kmenových genů [19]. Buněčné lyzáty ASC ošetřených rapamycinem byly shromážděny a sondovány fosforylovanou kinázou p70S6, celkovou kinázou p70S6 a protilátkami proti aktinu. Pozorovali jsme, že rapamycin snižuje expresi fosforylované kinázy p70S6 (obrázek 6A). Pro stanovení funkční role v adipogenní diferenciaci byly ASC ošetřeny rapamycinem a indukovány adipogenním médiem. Po 14 dnech byly buňky obarveny barvivem Bodipy pro hodnocení adipogeneze. Pozorovali jsme, že léčba rapamycinem významně snížila adipogenní diferenciaci (obrázek 6B, C). Dále jsme analyzovali účinek blokování přenosu signálu mTOR na kmenovost ASC. Za tímto účelem byly ASC ošetřeny rapamycinem a k měření exprese transkriptů souvisejících s kmenovostí byla použita PCR v reálném čase. Pozorovali jsme, že rapamycin významně upreguloval expresi markerů souvisejících s kmenovostí (obrázek 6D). Došli jsme k závěru, že inhibice jak ERK, tak mTOR drah přispívá ke snížení diferenciace adipocytů a zvýšení kmenovosti v lidských ASC.

Dále jsme testovali, zda bychom mohli reprodukovat účinky léčby metforminem zvyšující stonkovitost na 2D kultivovaných ASC ve složitějším a in vivo přeložitelném modelu kultury celé tukové tkáně. Za tímto účelem jsme upravili protokol kultivace tukové tkáně publikovaný Harmsem et al.30] s použitím buněčných sít namísto transwell insertů, aby se fragmenty tukové tkáně udržely ponořené v médiu (obrázek 7A). Po kultivaci 3-5 mm fragmentů lidské tukové tkáně s metforminem nebo bez něj po dobu 5 dnů jsme izolovali stromální vaskulární frakci (SVF) štěpením fragmentů tukové tkáně kolagenázou a analyzovali expresi genů souvisejících s kmenovostí. Data PCR v reálném čase ukázala, že SVF z tukové tkáně ošetřené metforminem prokázaly významnou upregulaci v expresi kmenových markerů jako BMP7, DLK1, MYC1, DPP4, OCT3/4, Sox2, Nanog, KLF4, PDGFR a Wnt2 (obrázek 7B ).

4. Diskuze
Tukové kmenové buňky (ASC) regenerují tukovou tkáň prostřednictvím sebeobnovy a diferenciace, čímž udržují zásobu kmenových buněk tkáně. Stárnutí a obezita jsou však spojeny se ztrátou vlastností kmene v ASC. Metformin je antidiabetikum a vykazuje slibné výsledky jako prostředek proti stárnutí. Zaměřili jsme se na analýzu účinku metforminu na kmenovost ASC a pochopení základního mechanismu s cílem prokázat metformin jako potenciální činidlo pro udržení kmenovosti u ASC s věkem. Pro snadnější převod našich výsledků na lidské subjekty jsme použili 2D model buněčné kultury lidských ASC a použili jsme metodu kultivace lidské tukové tkáně k simulaci složitějšího tkáňového prostředí. Jako zdroj tkáně pro naše studie jsme použili podkožní tukovou tkáň. Pomocí těchto různých metod buněk a tkáňových kultur jsme studovali účinek léčby metforminem na kmenovost ASC.
Obezita způsobuje změnu v kinetice diferenciace ASC, což snižuje zásobu kmenových buněk. Naše výsledky naznačují, že ve srovnání s neléčenými ASC léčba metforminem snížila rychlost adipogeneze způsobem závislým na dávce. Toto pozorování je v souladu s dřívějšími zprávami, které ukázaly, že metformin inhibuje adipogenezi v tukových kmenových buňkách, stromálních buňkách kostní dřeně, kmenových buňkách periodontálních vazů a buněčných liniích 3T3 [34-37]. Rychlost proliferace kmenových buněk hraje důležitou roli při udržování zásoby kmenových buněk, kmenových buněk a schopnosti sebeobnovy. Pozorovali jsme, že metformin inhiboval proliferaci ASC, aniž by vyvolal jakýkoli cytotoxický účinek na ASC, což souhlasí s jinými studiemi publikovanými na myších kmenových buňkách odvozených z tukové tkáně [28], stromálních buňkách a fibroblastech [38,39].koupit cistancheNedávná studie s použitím kmenových buněk získaných z tukové tkáně koní prokázala proproliferativní účinek metforminu [27]. Nejpravděpodobnějším vysvětlením těchto protichůdných pozorování je rozdíl v dárcovském druhu a anatomickém místě odběru buněk, protože koňské ASC byly sklizeny z ocasu. Agnieszka Smieszek a kol. pozorovali, že metformin inhibuje buněčnou proliferaci a podporuje buněčnou smrt se zvyšujícími se dávkami (5 a 10 mM) v buňkách stromatu odvozených z myší kostní dřeně a v buněčné linii embryonálních fibroblastů Balb/3T3 [40]. Kromě toho metformin inhibuje proliferaci satelitních buněk izolovaných z myších svalů |41. Na podporu našeho pozorování Min-lung Park a kol. uvedli, že metformin zlepšuje protizánětlivé vlastnosti lidských ASC snížením hladin exprese IL-1, IL{13}} a TGF-; metformin také zvyšuje přežití transplantovaných ASC a chrání před apoptotickou buněčnou smrtí [42]. Tyto výsledky naznačují různé účinky léčby metforminem na životaschopnost buněk pocházejících z různých druhů a že lidské ASC jsou odolné vůči potenciálním cytotoxickým účinkům léčby metforminem.
Diferenciace ASC na adipocyty je spojena s vyššími energetickými požadavky a rychlostí metabolismu, což vede k vyšší mitochondriální aktivitě a produkci ROS. ROS hraje kritickou roli při udržování klidu a kmene v dospělých kmenových buňkách, protože vyšší hladiny ROS tlačí buňky směrem k diferenciaci a nakonec stárnutí kmenových buněk a buněčné smrti [43]. Pozorovali jsme, že metformin významně snižuje mitochondriální membránový potenciál a tvorbu reaktivních forem kyslíku. V souladu s našimi údaji dřívější studie také uvedly, že metformin snižuje oxidační stres a zlepšuje expresi antioxidantů v myších embryonálních fibroblastech [44], myších ASC [38] a lidských endoteliálních buňkách aorty [45]. Navíc v souladu s naší studií Chien-Hung Lin et al uvedli, že metformin působí jako neuroprotektivní činidlo snížením oxidačního stresu v lidských nervových kmenových buňkách [46]. Několik dalších studií potvrzuje, že metformin působí jako antioxidant tím, že snižuje oxidační stres a zvyšuje expresi antioxidačních enzymů, jako je superoxiddismutáza v myších ASC, myších myoblastech C2C12 a cirkulujících lidských endoteliálních progenitorových buňkách [38,47,48]. Navíc studie Alejandra Martina-Montalva et al. podporuje naše pozorování a ukazuje, že metformin významně inhibuje mitochondriální komplex a inhibuje mitochondriální dýchání u myší [49] Účinky metforminu na sníženou tvorbu reaktivních forem kyslíku jsou pravděpodobně zprostředkovány zvýšením redukovaného glutathionu [50] v mechanismu zahrnujícím redox- citlivý transkripční faktor Nrf2 [51].
Bylo prokázáno, že metformin podporuje klidový stav satelitních buněk tím, že snižuje metabolismus potřebný pro proliferaci a diferenciaci. Různé studie také potvrzují, že metformin silně podporuje kmenovost a omlazení kmenových buněk [23,39,41,49,52,53]. Je také známo, že významně zlepšuje a upreguluje hladiny exprese markerů kmenových buněk. Protože jsme pozorovali, že metformin inhibuje proliferaci a adipogenezi inhibicí oxidačního stresu a mitochondriální aktivity, snažili jsme se potvrdit, zda metformin zlepšuje kmenovost v ASC nebo v in vitro modelu kultury tukové tkáně. V souladu s tím jsme pozorovali, že metformin významně zlepšil expresi markerů souvisejících s kmenem DPP4, Wnt2, THP1, DLK1, PDGFR, ICAM1 a Annexin3, Oct3/4, Nanog, BMP4, SOX2 a Mycl ve 2D kultuře ASC a modelech kultur tukové tkáně . Použití kultury celé tukové tkáně nabízí jedinečnou příležitost k simulaci in vivo mikroprostředí lidské tkáně, kde jsou buňky orientovány jako ve své přirozené architektuře a mají interaktivní podporu různých typů buněk vetkaných do tkáňové matrice. Podle našich nejlepších znalostí naše studie poprvé demonstruje účinek léčby metforminem na zvýšení kmene na lidské ASC, a to jak ve 2D, tak v kulturách celé tukové tkáně. Naše výsledky ukazující upregulaci podpisu kmenových genů v ASC izolovaných z fragmentů tukové tkáně ošetřených metforminem považujeme za podporu pro další zkoumání použití metforminu jako terapie ke zpomalení procesu stárnutí a omlazení stárnoucích tukových tkání.
Mechanistický cíl rapamycinu (mTOR) hraje klíčovou roli v proliferaci a diferenciaci kmenových buněk. Downmodulace aktivity mTOR genetickou manipulací, terapeutickou intervencí nebo změnami souvisejícími se životním stylem zvyšuje kmenovost a dlouhověkost [19,20]. Protože jsme pozorovali, že metformin inhibuje adipogenezi, testovali jsme účinek metforminu na signalizaci mTOR. Je zajímavé, že výsledky ukázaly, že metformin významně snižuje hladiny fosforylace PS70S6 kinázy, což je klíčová signální molekula downstream od mTOR a reportér aktivity dráhy mTOR. Dřívější studie také naznačují, že metformin potlačuje adipogenezi inhibicí signální dráhy mTOR v myších embryonálních fibroblastech (MEF), myších mezenchymálních kmenových buňkách C3H10T1/2 a preadipocytech 3T3-L1 [34]. Mechanistický cíl rapamycinu se skládá ze dvou komplexů, mTORCl a mTORC2, a signalizace hraje důležitou roli v adipogenezi. Ukázalo se, že inhibice signalizace mTORC1 rapamycinem zhoršuje adipogenezi prostřednictvím snížení fosforylace PS6 kinázy v 3T3-L1 preadipocytech. Tyto studie také ukázaly, že inhibice signalizace mTOR inhibuje adipogenezi snížením hladiny exprese markerů adipocytové linie, jako jsou PPARgamma, CEBPI, CEBP1 a adiponektin [54-56]. Kromě toho je signalizace mTOR zprostředkována fosforylací S6 kinázy. Ukázalo se, že knockdown S6 kinázy je odolný vůči obezitě a přibývání na váze během diety s vysokým obsahem tuků v důsledku narušení adipogeneze [57]. Potvrdili jsme naše pozorování metforminem zprostředkované downregulace aktivity mTOR jako možného mediátoru zvýšení kmenovosti a snížené diferenciace ASC použitím rapamycinu, který specificky blokuje aktivitu dráhy mTOR.
Kromě mTOR hraje v proliferaci a adipogenezi zásadní roli signální dráha ERK. Xiaomin Ning et al. ve své publikaci předpokládají, že adipogeneze je aktivována signalizací ERK [58]. Protože jsme pozorovali, že metformin inhibuje adipogenezi a proliferaci, rozhodli jsme se prozkoumat účinek metforminu na signalizaci ERK. V souladu s dřívějšími zprávami naše výsledky také naznačovaly, že metformin může inhibovat adipogenezi prostřednictvím suprese signalizace ERK se zvýšením genové exprese související s kmenovostí. Signalizace mTOR je nezbytná pro buněčnou proliferaci a diferenciaci a je negativním regulátorem autofagie [{{2 }}]. Ztráta autofagie je však spojena se ztrátou kmene, ačkoli léčba metforminem zlepšila genovou expresi související s kmenem prostřednictvím aktivace exprese markerů souvisejících s autofagií, jako je LC3Il. Naše výsledky tedy naznačují, že metformin narušuje adipogenezi zlepšením kmene v modelech lidských ASC nebo lidských tukových tkání prostřednictvím aktivace autofagie a inhibice signálních drah mTOR. Budoucí výzkumné studie na zvířatech a lidech in vivo zaměřené na hodnocení účinků metforminu na biologii ASC budou vodítkem pro přizpůsobení použití metforminu jako prostředku proti stárnutí kmenových buněk.
Tento článek je převzat z Biomedicines 2021, 9, 1782. https://doi.org/10.3390/biomedicines9121782 https://www.mdpi.com/journal/biomedicines