

Komplexy manganu (II) stimulují protinádorovou imunitu prostřednictvím zhoršujícího se poškození DNA a aktivace cesty CGAS-STING
Oct 26, 2023
Aktivace cyklického stimulátoru GMP-AMP syntázy dráhy interferonového genu (cGAS-STING) je slibnou imunoterapeutickou strategií pro léčbu rakoviny. Bylo zjištěno, že komplexy manganu(II) MnPC a MnPVA (P=1,10-fenanthrolin, C=chlor a VA=kyselina valproová) aktivují dráhu cGAS-STING . Komplexy nejen poškodily DNA, ale také inhibovaly histondeacetylázy (HDAC) a polyadenosindifosfát-ribóza polymerázu (PARP), aby bránily opravě poškození DNA, čímž podporovaly únik fragmentů DNA do cytoplazmy. Fragmenty DNA aktivovaly dráhu cGAS-STING, která zahájila vrozenou imunitní odpověď a obousměrnou komunikaci mezi nádorovými buňkami a sousedními imunitními buňkami. Aktivovaný cGAS-STING dále zvýšil produkci interferonů typu I a sekreci prozánětlivých cytokinů (TNF-a a IL-6), čímž zesílil nádorovou infiltraci dendritických buněk a makrofágů a také stimuloval cytotoxické T buňky k zabíjení rakovinných buněk in vitro a in vivo. Díky zvýšené schopnosti poškozovat DNA vykazovaly MnPC a MnPVA silnější imunokompetenci a protinádorovou aktivitu než ionty Mn2+, což prokázalo velký potenciál jako chemoimunoterapeutická činidla pro léčbu rakoviny.
Výhody cistanche tubulosa-Antitumor
Úvod
Recidiva, metastázy a léková rezistence nádorů představují velké výzvy pro konvenční protinádorová léčiva.1 Imunoterapie je účinnou strategií k vymýcení nádorových buněk využitím nebo posílením imunitního systému pacientů. inhibitory imunitního kontrolního bodu, onkolytický virus a chimérické antigenní receptorové T buňky (CAR-T) byly v klinické praxi aplikovány k posílení adaptivní protinádorové imunity.4–6 Primární a adaptivní léková rezistence, neadekvátní imunitní aktivace a ztráta nádorově specifické antigenní cíle často podkopávají účinnost imunoterapie.7,8 Adaptivní protinádorová imunita je vysoce závislá na robustní vrozené imunitě.8 Kromě formování a udržování adaptivní protinádorové imunity přebírá vrozený imunitní systém jako nejlepší bariéra pro obranu hostitelských buněk klíčovou odpovědnost za rozpoznávání nádorových buněk.9 Bohužel, během progrese nádoru se maligní buňky často vyhýbají imunitnímu dohledu a nakonec se vyvinou v „studené“ nádory.10,11 Aktivace vrozené imunity a usnadnění její souhry s adaptivní protinádorovou imunitou tedy může posílit imunitní systém. odpovědi na nádory a zlepšují terapeutický účinek imunoterapie. Cyklické stimulátory GMP-AMP syntázy interferonových genů (cGAS-STING) tvoří životně důležité složky vrozené imunity, které se ukázaly jako slibné cíle pro imunoterapii rakoviny.12,13 Aktivace dráhy cGAS-STING spouští řadu následných signální události, včetně stimulace a náboru TANK-vazebné kinázy 1 (TBK1) a interferonového regulačního faktoru 3 (IRF3), které indukují uvolňování a sekreci interferonů typu I (IFN-Is) a prozánětlivých faktorů IL-6 a TNF-a. 13,14 IFN následně podporují dozrávání a migraci dendritických buněk (DC), zvyšují cytotoxický účinek zprostředkovaný buňkami přirozených zabíječů (NK) a křížově primární nádorové specifické T buňky, čímž organizují vrozenou a adaptivní imunitu k regulaci chování. agresivních nádorů.15,16 V současné době byl na myších nádorových modelech testován terapeutický proces malomolekulárního perorálního agonisty MSA-2,17 přirozených agonistických cyklických dinukleotidů (CDN),18 a některých nanosystémů19–23. zasahovat do dráhy cGAS-STING. Mangan (Mn) je nutriční stopový prvek, který hraje důležitou roli v mnoha fyziologických procesech včetně protinádorových imunitních reakcí.24,25 Nedávno byly objeveny ionty Mn2+, které zvyšují citlivost senzoru dvouřetězcové DNA (dsDNA). cGAS a spouštějí produkci sekundárního messengeru cGAMP, čímž zvyšují aktivitu STING zvýšením vazebné afinity cGAMP-STING.12,26 Navíc ionty Mn2+ nepřímo inhibují progresi nádoru podporou funkce CD8+ T buňky prostřednictvím indukce produkce IFN in vivo. 27 Přímé podávání iontů Mn{50}} in vivo však nemůže zaručit účinnou koncentraci v mikroprostředí nádoru23 a nadměrné ionty Mn{52}} mohou vyvolat systémovou toxicitu, jako je ireverzibilní neurotoxicita a kardiovaskulární toxicita.28 Komplexy Mn jsou více stabilní a inertní vůči biomolekulám díky ochrannému účinku ligandů, a proto by mohl zmírnit toxicitu iontů Mn2+. Doposud však nebyl k aktivaci dráhy cGAS-STING použit žádný komplex Mn. Epigenetické modifikace reverzibilně mění genové exprese, což může přispívat k iniciaci a progresi rakoviny a supresi protinádorové imunity. Reverzibilní povaha epigenetické modifikace umožňuje maligním buňkám návrat do normálního stavu.29,30 Histonové deacetylázy (HDAC) zprostředkovávají acetylaci proteinů, dynamiku chromatinu, obrat proteinů a reakce na poškození DNA. Inhibitory HDAC jsou třídou silných epigenetických modulátorů, jejichž cílem je chromatin, působící na většinu nebo všechny typy nádorů.31 Inhibice HDAC alespoň částečně přispívá k acetylaci histonů, což vede ke změněné tvorbě a opravě dvouřetězcového zlomu DNA ( DSB),32,33 což může přispět ke zrušení lékové rezistence v rakovinných buňkách.34 Uvolněná chromatinová struktura indukovaná inhibitory HDAC může podporovat chemoterapeutika, aby se snadněji dostala k DNA, a tím zhoršit poškození DNA,35 což je prospěšné pro aktivaci dráha cGAS STING. Některé inhibitory HDAC – jako je kyselina valproová (VA) – ovlivňují HDAC třídy I a II (HDAC1/2), které senzibilizují rakovinné buňky k terapiím poškozujícím DNA.36
cistanche tubulosa-zlepšuje imunitní systém
Polyadenosindifosfát-ribóza polymerázy (PARP) jsou základní proteiny, které se podílejí na odolnosti rakoviny vůči chemoterapii. Tyto enzymy jsou klíčové pro opravu jednořetězcových zlomů DNA (SSB),37 a účastní se mnoha buněčných procesů, jako je apoptóza, imunitní odpověď, genová transkripce a zánět.38–40 Inhibitory PARP zabraňují opravě lézí DNA, což vede k obohacení cytosolové DNA, která je rozpoznána cGAS, aby aktivovala dráhu cGAS-STING.41,42 Bylo zjištěno, že řada protirakovinných kovových komplexů, včetně komplexů platiny, ruthenia a zlata, inhibuje aktivitu PARP.43, 44 Zde uvádíme imunostimulační a protinádorové vlastnosti dvou MnII komplexů MnPC a MnPVA. Chemické a krystalické struktury komplexů jsou znázorněny na obr. 1. V těchto komplexech je 1,10-fenanthrolin (P) netoxickým DNA interkalátorem a VA je inhibitorem HADC.31 VA může podporovat acetylaci histonových proteinů konjugovaných s DNA, zvyšují dostupnost DNA v rámci relaxovaného chromatinu a reaktivují dormantní tumor supresorové geny.33,35 Předpokládáme, že začlenění 1,10-fenantrolinu a/nebo VA do MnPC nebo MnPVA může komplexy s antiproliferativní aktivitou indukcí poškození DNA a stimulací protinádorové imunity. Série experimentů ukázala, že MnPC a MnPVA účinně poškozují DNA, aktivují dráhu cGAS-STING v nádorových a imunitních buňkách a zvyšují sekreci IFN a prozánětlivých cytokinů. Konkrétně MnPVA inhiboval aktivitu HDAC1/2 a PARP1, čímž aktivoval dráhu cGAS-STING účinněji než MnPC. Všechny výsledky byly potvrzeny jak in vitro, tak in vivo. Podle našich nejlepších znalostí jsou MnPC a MnPVA nejlepší multifunkční komplexy MnII, které potlačují nádorové buňky především aktivací protinádorové imunity prostřednictvím cGAS-STING dráhy iniciované poškozením DNA.

Obr. 1 Chemické a krystalové struktury MnPC a MnPVA. Atomy vodíku jsou pro přehlednost vynechány.
Výsledky a diskuse
Chemické a fyzikální vlastnosti
MnPC a MnPVA byly připraveny podle metod z literatury45,46 a plně charakterizovány elementární analýzou, IR spektroskopií (obr. S1†), elektronovou paramagnetickou rezonancí (obr. S2,† EPR) a rentgenovou krystalografií. Parametry krystalové struktury a vybrané délky a úhly vazeb jsou uvedeny v tabulkách S1 a S2 (viz ESI†). Atom Mn v těchto komplexech vykazoval zkreslenou oktaedrickou geometrii s číslem souřadnic 6. MnPC krystalizoval v monoklinickém krystalovém systému s prostorovou grupou P21/c; MnII vytvořil čtyři vazby Mn–N se dvěma bidentátními 1,{{10}}fenantrolinovými ligandy a dvěma vazbami Mn–Cl. Délky vazeb Mn–N se pohybují mezi 2,281 a 2,369 Á, to znamená, že délka vazby Mn–N1, Mn–N2, Mn–N3 a Mn–N4 je 2,369(4), 2,281(3), 2,341(3 ), respektive 2,287(3) Å, a úhel N1–Mn–N2, N1–Mn–N4 a N2–Mn–N3 je 71,15(11) stupně, 97.86(11) stupně a 89.{44}}(11) stupně. Tato struktura je poněkud odlišná od struktury popsané v Abbas et al., 45, kde MnPC krystalizoval v triklinickém krystalovém systému s prostorovou skupinou P1. V souladu s tím se v těchto případech liší odpovídající délky a úhly spojů. Podobně jako u popsané struktury krystalizoval 46 MnPVA v monoklinickém krystalovém systému s prostorovou skupinou C2/c, mající sadu donorů N2O4. MnII koordinovaný se dvěma atomy N z 1,10-fenantrolinu a čtyřmi atomy O z jedné molekuly vody a dvěma VA ligandy, v tomto pořadí. Jeden z VA reagoval jako monodentátní ligand, zatímco druhý byl bidentátní ligand. Délka vazby Mn–N1 a Mn–N2 je 2,265(19) a 2,298(2) Å, v daném pořadí, a délka vazby Mn–O1, Mn–O2, Mn–O3 a Mn–O5 je 2,2476(19), 2,260(2), 2,0639 (18) a 2,1471 (17) Á, v daném pořadí. Jako silný N,Nchelatační ligand stabilizuje 1,10-fenantrolin komplexy Mn proti demetalaci. Stabilita MnPC a MnPVA ve fyziologickém roztoku pufrovaném fosfátem (PBS, s 0,5 % obj./obj. DMSO, pH 7,4 a 37 stupňů) a buněčných kultivačních médiích (obsahující 10 % FBS) byla zkoumána pomocí UV viditelné spektroskopie (obr. S3† ). Časově závislá UV spektra ukazují, že tyto komplexy jsou stabilní během 72 hodin.
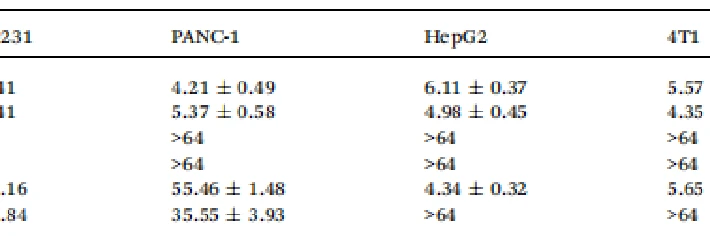
Tabulka 1 Hodnoty IC50 (mM) MnPC a MnPVA proti různým buněčným liniím po 72 h, s MnCl2, VA, CDDP a P jako reference. Údaje jsou uvedeny jako průměr ± standardní odchylka (SD, n=3)
Antiproliferativní aktivita
Antiproliferativní aktivity sloučenin proti lidskému trojnásobně negativnímu karcinomu prsu (MDA-MB{2}}), lidskému karcinomu slinivky břišní (PANC-1), lidskému hepatocelulárnímu karcinomu (HepG2), myšímu karcinomu prsu (4T1) linie a lidská normální renální tubulární epiteliální epiteliální (HK-2) buněčná linie byly hodnoceny testem MTT. Jako referenční sloučeniny byly použity MnCl2, VA, cisplatina (CDDP) a 1,10-fenanthrolin (P). Poloviční maximální inhibiční koncentrace (IC50) po 72 hodinách jsou uvedeny v tabulce 1. MnPC a MnPVA prokázaly silnou antiproliferativní aktivitu vůči všem testovaným rakovinným buněčným liniím, zejména MDA-MB-231 a PANC-1 buňky, které nejsou citlivé na CDDP a vykazují asi 8- a 11-krát vyšší aktivitu. Antiproliferativní aktivita MnPC a MnPVA proti HepG2 a 4T1 je podobná jako u CDDP. Je zajímavé, že jak MnPC, tak MnPVA vykazovaly sníženou toxicitu vůči HK-2 buňkám, přičemž hodnoty IC50 byly mírně vyšší než hodnoty CDDP. Naproti tomu MnCl2, VA a P byly v těchto buněčných liniích téměř netoxické, což je v souladu s literaturou.13,36 Podle těchto výsledků byly následující výzkumy zaměřeny na působení MnPC a MnPVA na MDA-MB -231 buněk.
Buněčný příjem a poškození DNA
Akumulace komplexů v MDA-MB-231 buňkách ve smyslu Mn byla měřena pomocí ICP-MS koinkubace po dobu 24 hodin. Jak je znázorněno na obr. 2A, akumulace se řídí pořadím MnPVA > MnPC > MnCl2, což je v souladu s jejich antiproliferativní aktivitou. Dále jsme stanovili Mn vázaný na DNA v buňkách MDA-MB-231 pomocí ICP-MS. Jak je znázorněno na obr. 2B, MnPC a MnPVA vykazovaly větší schopnost vázat DNA než MnCl2, pravděpodobně kvůli jejich vyšší buněčné absorpci. Fosforylovaný histon g-H2AX je citlivý marker dvouřetězcových zlomů DNA (DSB).47 Abychom vyhodnotili poškození DNA indukované komplexy Mn, detekovali jsme expresi gH2AX imunoblotem. Jak je znázorněno na obr. 2C, MnPC a MnPVA zvýšily expresi g-H2AX v buňkách MDA-MB-231 po 24 hodinách. Je známo, že kovové komplexy P jsou účinnými interkalátory DNA;48,49 však samotný P sotva způsobil poškození DNA (obr. S4†). Exprese g-H2AX v nádorových tkáních myší s nádorem 4T1 byla také zkoumána pomocí imunoterapie a léčby ER každou sloučeninou (1,3 mg Mn na kg) jednou za 2 dny po dobu 16 dnů. MnPC a MnPVA účinně poškodily DNA v nádorové tkáni, zatímco MnCl2 a PBS stěží ovlivnily g-H2AX (obr. S5†). dsDNA uvolněná z MDA-MB- 231 buněk do supernatantu kultivačního média byla stanovena pomocí ELISA kit aer ošetření komplexy Mn. Jak je znázorněno na obr. 2D, obsah dsDNA v kultivačním médiu buněk ošetřených MnPC nebo MnPVA byl evidentně vyšší než v jiných skupinách. Výsledky naznačují, že MnPC a MnPVA mohou zvýšit nestabilitu genomové DNA a hladinu cytosolové DNA. Povaha poškození DNA byla nejprve studována měřením změn fluorescence systému DNA-ethidium bromid (EB) telecího brzlíku. EB je interkalátor, který poskytuje významné zvýšení fluorescence, když je navázán na DNA, zatímco fluorescence klesá, když je vytěsněn.50 MnPC a MnPVA mírně snížily intenzitu fluorescence (obr. S6†), což naznačuje, že tyto komplexy by se mohly interkalovat do drážek DNA, aby nahradil navázaný EB díky planární struktuře P. Interakce však není robustní kovalentní vazbou. Některé komplexy Mn by mohly generovat intracelulární reaktivní formy kyslíku (ROS) a indukovat oxidační stres,51 a proto jsme detekovali ROS v buňkách MDA-MB-231 konfokálním zobrazením pomocí 2′,7′-dichlor-fluorescein diacetátu ( DCFH-DA) jako fluorescenční sonda ROS po expozici komplexu Mn po dobu 18 hodin. Jak je znázorněno na obr. 3, MnPC a MnPVA zesílily intracelulární ROS fluorescenci ve srovnání s kontrolou nebo MnCl2, zejména MnPVA, což naznačuje, že mohou způsobit oxidační poškození buněčné DNA. Poškození DNA nejen přispívá k zabíjení rakovinných buněk, ale také stimuluje protinádorovou imunitu aktivací dráhy cGAS-STING.14,52
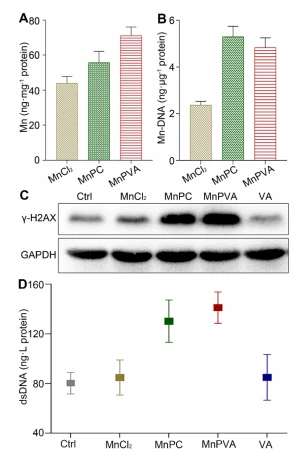
Obr. 2 Buněčná absorpce (A) a Mn vázaný na DNA (B) stanovené pomocí ICPMS, exprese markeru poškození DNA g-H2AX stanovená westernovým přenosem (C) a extracelulární dsDNA stanovená pomocí soupravy ELISA (D) po Buňky MDA-MB-231 byly ošetřeny MnCl2, MnPC, MnPVA a VA (6 mM) po dobu 24 hodin.
Zastavení buněčného cyklu a apoptóza
Reakce na poškození buněčné DNA (DDR) je spojena se signalizací, která řídí zachycení kontrolního bodu buněčného cyklu.53 Vliv komplexů Mn na buněčný cyklus buněk MDA-MB-231 byl analyzován průtokovou cytometrií. Jak je znázorněno na obr. 4A, MnPC a MnPVA mírně zvýšily zastavení fáze G1, zatímco způsobily úplný kolaps fáze G2 ve srovnání s kontrolou a MnCl2. Výsledky ukazují, že poškození DNA vyvolané MnPC a MnPVA vážně blokovalo pozdější fázi syntézy DNA. Antiproliferativní mechanismus MnPC a MnPVA se tedy liší od mechanismu MnCl2. Způsob smrti buněk MDA-MB-231 byl zkoumán průtokovou cytometrií po ošetření komplexy po dobu 72 hodin a barvení annexinem V-FITC a propidium jodidem (PI). Jak je ukázáno na obr. 4B a S7,† ve srovnání s kontrolou a MnCl2, míra apoptózy (brzká + pozdní) indukovaná MnPC a MnPVA dosáhla 84,{17}} % a 87,4 %, v tomto pořadí. Výsledky ukazují, že MnPC a MnPVA mají silnou proapoptotickou schopnost, která úzce koreluje s jejich protinádorovou aktivitou.
cistanche doplněk výhody-zvyšuje imunitu
Mitochondriální membránový potenciál
Mitochondrie jsou ústředními účastníky vrozené imunity a mitochondriální DNA (mtDNA) je rozpoznána jako agonista vrozeného imunitního systému.54 Bylo hlášeno, že jak cytosolická DNA, tak mtDNA se vážou na receptory rozpoznávající vzory a spouštějí signální dráhu cGAS-STING. 55 Abychom prozkoumali možné uvolňování mtDNA z mitochondrií v přítomnosti MnPC a MnPVA, zkontrolovali jsme integritu mitochondriální membrány konfokálním zobrazením pomocí JC-1 jako fluorescenční sondy, která tvoří agregáty a zobrazuje červenou fluorescenci v normální mitochondrie s vysokým DJm, zatímco existuje jako monomer a vydává zelenou fluorescenci u poškozených s nízkým DJm. 56 Jak je znázorněno na obr. 5, MnPC a MnPVA výrazně snížily intenzitu červené fluorescence v buňkách MDA-MB-231 obarvených JC-1. Poměr fluorescence „zelené (G) k červené (R)“ pro buňky ošetřené MnPC a MnPVA je 4,91 a 5,66, v tomto pořadí, významně vyšší než u kontrolních buněk (2,35) a buněk ošetřených MnCl2- ( 1,75). Pozorování naznačují, že integrita mitochondriální membrány byla poškozena MnPC a MnPVA, což může usnadnit únik mtDNA do cytosolu, aby se spustila dráha cCAS-STING.
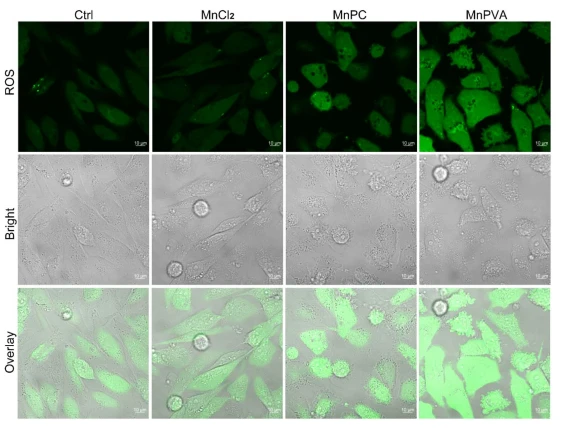
Obr. 3 Fluorescenční konfokální zobrazování ROS generovaných komplexy Mn (12 mM) v buňkách MDA-MB-231 po inkubaci po dobu 18 hodin a barvení DCFH-DA (10 mM) po dobu 30 minut.

Obr. 4 Zastavení buněčného cyklu MDA-MB-231 buněk po inkubaci s různými sloučeninami (6 mM) po dobu 24 hodin (A) a apoptotická analýza MDA-MB-231 buněk průtokovou cytometrií po inkubaci s různými sloučeninami (6 mM) po dobu 72 hodin (B).
Aktivita a exprese HDAC
Inhibitory HDAC senzibilizují rakovinné buňky k terapiím poškozujícím DNA tím, že mění strukturu chromatinu a brání opravě DNA.33,35 Jako inhibitor HDAC I. třídy se VA selektivně zaměřuje na enzymy HDAC1 a HDAC2, moduluje signalizaci poškození DNA, aby zničil genomovou stabilitu a inhiboval nádor proliferace in vivo. 31 Začlenění VA do MnPVA může účinněji posílit inhibici HDAC a indukci DDR. Proto jsme stanovili účinek komplexů Mn na celkovou aktivitu HDAC v buňkách MDA-MB-231 po koinkubaci po dobu 48 hodin. Jak je znázorněno na obr. 6A, MnPVA významně inhiboval celkovou aktivitu HDAC, přičemž inhibiční aktivita byla přibližně 1,5krát vyšší než aktivita VA. Dále jsme studovali expresi HDAC1/2 proteinů v MDA-MB-231 buňkách imunoblotováním. Jak je ukázáno na obr. 6B a C, MnPVA zjevně downreguloval expresi HDAC1 a HDAC2 ve srovnání s kontrolou. Ačkoli MnPC inhiboval aktivitu HDAC, stěží ovlivnil expresi HDAC1/2 proteinů. Neočekávaně VA jako známý inhibitor HDAC nevykazoval zřejmou inhibici na HADC1/2 v této koncentraci (6 mM), což zdůrazňuje zásadní roli koordinace Mn při zesílení inhibice VA na HADC. Výsledky naznačují, že MnPVA je účinným inhibitorem HDAC1/2, který by podporoval DDR a spouštěl dráhu cGAS-STING, čímž by stimuloval protinádorovou imunitu. Dále jsme detekovali expresi HDAC v nádorových tkáních myší nesoucích nádor 4T1 imunouorescencí po léčbě každou sloučeninou. Jak je znázorněno na obr. 6D, MnPVA evidentně snižoval expresi HDAC1, zatímco MnPC a MnCl2 pouze mírně nebo stěží ovlivnily HDAC1.
Výhody cistanche tubulosa-Antitumor
Exprese PARP1 a apoptotických proteinů
PARP hrají klíčovou roli při opravě lézí DNA. Inhibitory PARP zabraňují opravě DNA, což vede k exportu fragmentů DNA do cytosolu, což spouští vrozenou imunitní odpověď zprostředkovanou cGAS.42 Jako senzorový protein pro přerušení řetězce DNA se PARP1 lokalizuje do míst poškození DNA a dominuje opravě DNA. DNA, čímž se stává důležitým cílem pro léčbu rakoviny. Aktivace kaspáz, zejména kaspázy-3, by mohla iniciovat apoptózu prostřednictvím štěpení PARP1, což je považováno za charakteristický znak apoptózy.38,57 Proto exprese kaspázy-3, PARP1 a štěpené PARP1 v Buňky MDA-MB-231 byly zkoumány westernovým přenosem. Jak je znázorněno na obr. 7, MnPC a MnPVA výrazně zvýšily expresi kaspázy-3 a štěpily PARP1 ve srovnání s kontrolou a jinými sloučeninami. Štěpení PARP1 aktivovanou kaspázou-3 by oddělilo doménu vázající DNA od katalytické domény, čímž by zabránilo aktivaci PARP a opravě lézí DNA. Kromě toho může inhibice PARP1 zvýšit hladinu T lymfocytů infiltrujících nádor a regulovat vrozené imunitní reakce. Dysfunkce opravy DNA má potenciál iniciovat globální aberace DNA, které by mohly spustit apoptózu. Proapoptotické Bax a antiapoptotické Bcl-xL proteiny hrají klíčovou roli v apoptóze.38 Proto jsme detekovali jejich expresi v MDAMB-231 buňkách po ošetření různými sloučeninami po dobu 48 hodin pomocí western blottingu. MnPC a MnPVA výrazně upregulovaly expresi Bax a down-regulovaly expresi Bcl-xL. Výsledky naznačují, že MnPC a MnPVA by mohly podporovat apoptózu prostřednictvím regulace apoptotických proteinů jako kaskádový efekt související s PARP1-. I když VA může indukovat apoptózu nádorových buněk inhibicí exprese HDAC1/2 ve vysokých dávkách,58 za těchto podmínek významně neovlivnila tyto apoptotické proteiny, což znamená nadřazenost komplexů Mn.

Obr. 5 Fluorescenční snímky MDA-MB-231 buněk po inkubaci s MnCl2, MnPC a MnPVA (6 mM) po dobu 36 hodin a barvení fluorescenční sondou JC-1.
Aktivace dráhy cGAS-STING
Je známo, že inhibitor PARP1 může vyvolat odpověď signální kaskády cGAS-STING v rakovinných buňkách.40,59 cGAS je vrozený imunitní senzor, který rozpoznává různorodou řadu cytosolické dsDNA, včetně DNA s virovými, apoptotickými, exosomálními, mitochondriálními a mikrojádry. a retroelement origins.60,61 Obohacení cytosolové DNA indukované MnPC a MnPVA vytvořilo příznivou okolnost pro aktivaci dráhy cGAS-STING, která by následně iniciovala downstream signální události prostřednictvím náboru a aktivace TBK1 a IRF3.12,59 Proto jsme detekovali expresi těchto proteinů v buňkách MDA-MB-231 imunoblotováním po expozici každé sloučenině po dobu 24 hodin. Jak je znázorněno na obr. 8A, MnPC a MnPVA významně zvýšily expresi cGAS, p-STING, p-TBK1 a p-IRF3. Dále jsme pomocí imunoblotu zkoumali účinek komplexů na dráhu cGAS-STING v buňkách THP-1 lidské monocytární leukémie. Jak je znázorněno na obr. 8B, MnPC a MnPVA vyvolaly významnou zvýšenou regulaci cGAS, p-STING, p-TBK1 a p-IRF3, zejména MnPVA, což ukazuje, že aktivovaly dráhu cGAS-STING, která by iniciovala vrozenou imunitu k blokování nádor uniká a stimuluje adaptivní imunitu, aniž by poškodil THP-1 buňky (tabulka S3†). Naproti tomu MnCl2 pouze zvýšil hladinu p-STING nebo p-TBK1 a sotva ovlivnil expresi cGAS a p-IRF3 ve srovnání s kontrolou, což může být způsobeno jeho neschopností vyvolat poškození DNA a štěpení PARP1 při nízkých koncentracích. a proto není schopen spustit následné signalizační události, jako je aktivace p-IRF3. Na základě těchto výsledků jsme dospěli k závěru, že MnPC a MnPVA indukovaly poškození jaderné a mitochondriální DNA v nádorových buňkách a uvolnily fragmenty DNA do cytoplazmy, která pak aktivovala dráhu cGAS-STING. Aktivovaný cGAS-STING by mohl přímo aktivovat signální dráhy senescence a apoptózy v rakovinných buňkách,62 což vedlo k obousměrné protinádorové imunitní reakci. Nicméně exprese STING, TBK1 a IRF-3 v buňkách MDA-MB-231 a THP-1 byla sotva ovlivněna (obr. S8†).
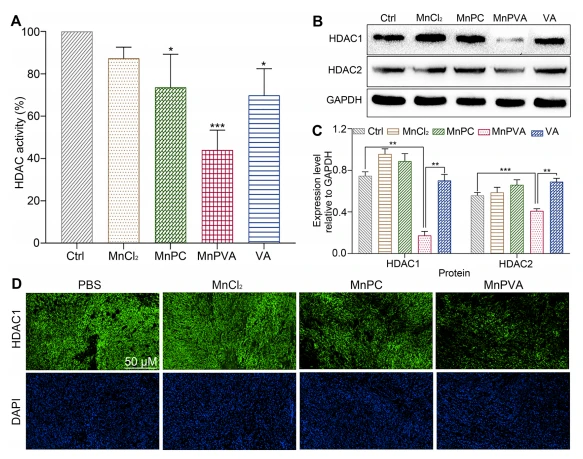
Obr. 6 (A) HDAC aktivita, (B) exprese HDAC1/2 proteinů a (C) odpovídající obsah proteinu vzhledem k GAPDH v MDA-MB-231 buňkách po inkubaci s každou sloučeninou (6 mM) pro 48 h stanoveno pomocí soupravy ELISA a western blotting; (D) imunofluorescenční snímky exprese HDAC1 v nádorové tkáni 4T1 myši po léčbě každou sloučeninou (1,3 mg Mn na kg) jednou za 2 dny po dobu 16 dnů. *p < 0.05, **p < 0,01 a ***p < 0,001.
Interferony a prozánětlivé cytokiny
Aktivace TBK1 a IRF3 by mohla indukovat expresi a sekreci IFN a prozánětlivých cytokinů, jako jsou IFN-b, TFN-a a IL-6.59,63 Extracelulární IFN-I uvolňovaný THP{ {8}} buňky a IFN-b, TNF-a a IL-6 uvolněné buňkami MDAMB-231 byly měřeny testem ELISA a poté inkubací s různými sloučeninami po dobu 24 hodin. Jak je znázorněno na obr. 9, MnPC a MnPVA dramaticky zvýšily sekreci IFN-I vzhledem ke kontrole, MnCl2 a VA. Současně také spouštěly sekreci IFN-b a TNF-a. Úroveň IL-6 však byla zvýšena jen mírně. IFN-I (IFN-a a IFN-b) hraje mnohočetné imunostimulační role v protinádorové imunitě, jako je podpora maturace a prezentace antigenu DC a cross-priming T-buňky specifické pro nádor za účelem zabíjení nádorových buněk přemostěním vrozené a adaptivní imunity.13 TNF -a se účastní akutní nekrózy rakoviny zprostředkované cyklickými dinukleotidy (CDN) a úpravy imunitního inlátu.59 Výsledky naznačují, že MnPC a MnPVA by mohly stimulovat protinádorové imunitní reakce a naznačují, že mohou překonat lékovou rezistenci nádorů chemoimunoterapeutický mechanismus.
Zrání buněk odvozených z kostní dřeně (BMDC)
BMDC představují heterogenní buňky myeloidního původu sestávající z myeloidních progenitorů a nezralých makrofágů, granulocytů a dendritických buněk (DC); účastní se imunitní odpovědi potlačením aktivace T-buněk a aktivace makrofágů asociovaných s nádorem (TAM).64 Jako hlavní buňky prezentující antigen (APC) DC fungují jako most pro komunikaci mezi vrozeným a adaptivním imunitním systémem. 22

Obr. 7 Exprese proteinů souvisejících s opravou DNA a apoptózou v buňkách MDA-MB-231 po expozici různým sloučeninám (6 mM) po dobu 48 hodin a odpovídající obsah proteinu vzhledem k a-tubulinu. *p < 0.{{10}}5, **p < 0,01 a ***p < 0,001.
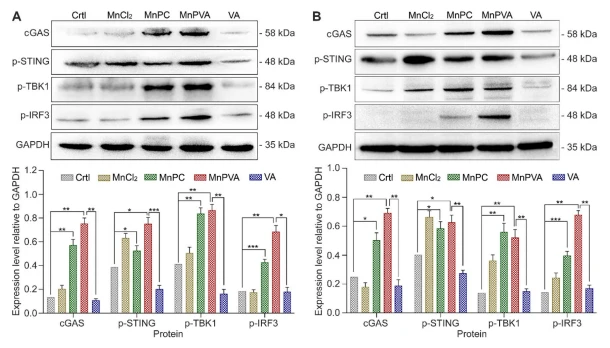
Obr. 8 Exprese proteinů zapojených do dráhy cGAS-STING stanovená westernovým přenosem poté, co byly buňky MDA-MB-231 (A) a THP-1 (B) ošetřeny 6 a 3 mM různých sloučenin po dobu 24 hodin a odpovídající obsah proteinu vzhledem k GAPDH. *p < 0.{{10}}5, **p < 0,01 a ***p < 0,001.
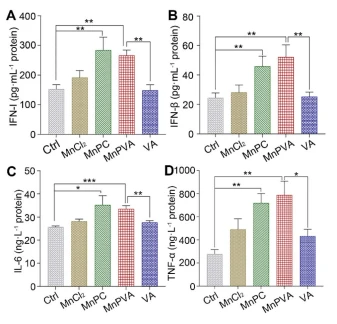
Obr. 9 Sekrece (A) IFN-I v THP-1 buňkách, (B) IFN-b, (C) IL-6 a (D) TNF-a v MDA-MB{{ 7}} buněk po ošetření různými sloučeninami (6 mM) po dobu 24 hodin. Data jsou uvedena jako průměr ± SD (n {{10}}); *p < 0.05, **p < 0,01 a ***p < 0,001.
Zralé a aktivované DC mohou prezentovat specifický antigen T lymfocytům a iniciovat adaptivní odpověď proti nádorům.65 Abychom otestovali, zda by cesta cGAS-STING aktivovaná MnPC a MnPVA mohla indukovat zrání BMDC, testovali jsme povrchové markery na BMDC pomocí Ošetření proudem cytometrie supernatantem buněk MDA-MB-231 inkubovaných s různými sloučeninami po dobu 24 hodin. Jak je znázorněno na obr. 10A, ve srovnání s kontrolou MnPC a MnPVA výrazně zvýšily koexpresi maturačních markerů CD86 a CD80 na 36,62 %, respektive 43,15 %. MnCl2 však pouze mírně překonal kontrolu. Kromě toho je hlavní histokompatibilní komplex třídy II (MHC-II) konstitutivně exprimován APC, které prezentují antigenní peptidy T buňkám. V důsledku toho jsou iniciovány, udržovány a regulovány adaptivní imunitní reakce.8 Jak je znázorněno na obr. 10B a C, MnPC a MnPVA zvýšily expresi MHC-II přibližně na 1.{21}}násobek exprese kontroly . Data naznačují, že tyto komplexy značně indukovaly zrání BMDC, což může spustit imunitní reakce cytotoxických T lymfocytů.

Obr. 10 (A) Koexprese CD86 a CD80, (B) kvantitativní analýzy CD11c+CD86+CD80+ v BMDC, (C) exprese MHC-II na povrchu BMDC a (D) průměrná intenzita MHC-II stanovená průtokovou cytometrií po ošetření supernatantem buněk MDA-MB-231 inkubovaných s různými sloučeninami (6 mM) po dobu 24 hodin.
Společná kultivace rakovinných buněk s PBMC
K dalšímu posouzení imunomodulačních účinků komplexů byla životaschopnost MDA-MB-231 buněk v přítomnosti lékem aktivovaných lidských mononukleárních buněk periferní krve (PBMC) hodnocena pomocí MTT testu podle metody z literatury.66 Rakovinové buňky nebo rakovinné buňky s PBMC byly nastaveny jako kontroly. Jak je znázorněno na obr. 11, v nepřítomnosti PBMC, MnPC a MnPVA suprimovaly životaschopnost buněk na 64,98 % a 62,02 %, v daném pořadí. Společná kultivace buněk s PBMC bez komplexu Mn vykazovala pouze bazální cytotoxicitu s průměrnou životaschopností buněk 81,49 %. V přítomnosti PBMC však MnPC a MnPVA potlačily životaschopnost buněk na 38,19 % a 36,98 %, v daném pořadí. Při této koncentraci (6 mM) je většina PBMC stále naživu (obr. S9†). Výsledky ukazují, že MnPC a MnPVA mohou aktivovat imunitní odpověď PBMC, aby vyvíjely cytotoxické účinky na buňky MDA-MB-231, čímž vykazují významný synergický účinek proti rakovinným buňkám.
Akutní toxicita a in vivo protirakovinná aktivita
Akutní toxicita komplexů MnII byla hodnocena na samicích myší Balb/c. Byla stanovena střední letální dávka (LD50) a změny tělesné hmotnosti po intravenózní injekci každého komplexu. LD50 MnPC a MnPVA bylo 16.{56}}8 ± 2,16 a 25,16 ± 3,19 mg kg-1 (obr. S10†), což je mnohem více CDDP (4.{{60}}6 ± 1.02 mg kg-1).67 U myší léčených MnPC a MnPVA nebyly pozorovány žádné významné změny tělesné hmotnosti. Výsledky ukazují, že MnPC a MnPVA jsou pro savce málo toxické. Je zajímavé, že přivázání VA ke komplexu Mn zeslabilo obecnou toxicitu nebo zvýšilo biokompatibilitu. Dále byly vytvořeny myší modely nesoucí rakovinu prsu 4T1 pro hodnocení protirakovinné aktivity MnPC a MnPVA in vivo. Jak je znázorněno na obr. 12, po ošetření myší PBS, MnCl2, MnPC a MnPVA (1,3 mg Mn na kg) po dobu 16 dnů, MnPC a MnPVA vykazovaly účinnější inhibici růstu nádoru než MnCl2. V den 16 se průměrný objem nádoru (A, B) snížil na 554,78 ± 43,76 a 348,01 ± 39,61 mm3 u myší léčených MnPC a MnPVA, zatímco u myší léčených PBS a MnCl2- léčených myší byla 1182,01 ± 95,87 a 784 ± 64,93 mm3, v daném pořadí. Průměrná hmotnost nádoru (C) byla 1,41 ± 0,13, 0,95 ± 0,19, 0,82 ± 0,19 a 0,59 ± 0,1 g pro myši ošetřené PBS, MnCl2-, MnPC a MnPVA, v daném pořadí. Je zřejmé, že nádorový inhibiční účinek MnPVA byl lepší než účinek MnPC a MnCl2, což může být způsobeno účinnou inhibicí exprese HDAC pomocí MnPVA. Navíc nebyly pozorovány žádné zjevné patologické abnormality nebo léze na tělesné hmotnosti (D), přežití a celkové anatomii orgánů (obr. S11†). Tyto výsledky naznačují, že komplexy MnII jsou slibnými lékovými kandidáty pro terapii rakoviny.

Obr. 11 Průměrná životaschopnost (%) MDA-MB-231 buněk po společné inkubaci se sloučeninou aktivovanými PBMC (6 mM) po dobu 48 hodin. Data jsou uvedena jako průměr ± SD (n=3); **p < 0.{10}}1 a ***p < 0,001.
In vivo protirakovinná imunitní odpověď
Imunostimulační schopnost komplexů MnII in vivo byla testována na myších Balb/c nesoucích nádory 4T1. Stav imunitních buněk v nádoru, slezině a lymfatických uzlinách odvádějících nádor (LN) byl analyzován pomocí průtokové cytometrie.21 CD8+ T buňky jsou nezbytné pro omezení iniciace rakoviny a maligní progrese v imunitním systému, a indukce cytotoxických T lymfocytů (CTL) vyžaduje aktivaci nezralých DC na zralé,8,9 které byly označeny jako CD11c+ CD80+CD{11}} buňky.68 Jak je znázorněno na Obr. 13A a B , u myší léčených MnPVA bylo procento zralých DC označených expresí kostimulačních receptorů CD80+ a CD86+ (ref. 69) vyšší (45,59 %) v LN. ošetřené PBS, MnCl2 a MnPC, v daném pořadí. Makrofágy jsou integrální součástí imunitního systému, modulují mikroprostředí nádoru.70 Podle funkcí lze makrofágy rozdělit na tumoricidní M1 a protumorální M2 fenotypové aktivační stavy.71 Makrofágy M1 jsou označeny TNF-a, IL-12 , CD80, CD86 a přímé zabíjení nádorových buněk,70 zatímco M2-podobné TAM se vyznačují vysokou expresí makrofágového manózového receptoru 1 (MMR nebo CD206) a podporou růstu nádorových buněk. také vykazují silnou imunosupresivní aktivitu. Je známo, že inhibitory HDAC mohou potencovat pro-in-motion shis v polarizaci makrofágů a posilovat fenotyp M1 kromě toho, že brání opravě DNA. po ošetření komplexy Mn. Jak je znázorněno na obr. 13C–E a S12A–C,† fenotyp M2 označený CD206+ byl významně potlačen a fenotyp M1 označený CD86+ byl pozoruhodně zvýšen u myší léčených MnPVA. Výsledky ukazují, že MnPVA účinně indukoval polarizaci makrofágů z fenotypu M2 na M1. MnCl2 a MnPC také zvýšily expresi CD86, ale pouze mírně ovlivnily CD206 ve srovnání s PBS. Mezitím byly pomocí ELISA měřeny IFN-b, IL-6 a TNF-a vylučované zralými DC a makrofágy. Jak je znázorněno na obr. 13F a G, MnPVA zvyšoval hladiny IFN-b a TNF-a účinněji než PBS, MnCl2 a MnPC, což může přimět T buňky k zabíjení nádorových buněk. Nebyla však pozorována žádná signifikantní změna v IL-6 (obr. S13†).

Obr. 12 Terapeutický účinek MnPC, MnPVA a MnCl2 na myši nesoucí nádor 4T1 s použitím PBS jako kontroly. (A) Obrázky vyříznutých nádorů, (B) objem nádoru, (C) hmotnost nádoru a (D) tělesná hmotnost myší po léčbě PBS, MnCl2, MnPC a MnPVA v dávce 1,3 mg Mn na kg jednou každé 2 dny po dobu 16 dnů. **p < {{10}}.01 a ***p < 0,001.

Obr. 13 Zralé DC (CD80+CD86+ gated on CD11c+) a kvantitativní analýzy na lymfatických uzlinách odvádějících nádor (A a B), polarizace makrofágů (CD206+CD{ {7}} gated on CD11b+) v nádorové tkáni 4T1 myši (C–E) stanovené průtokovou cytometrií a analýzami ELISA IFN-b (F) a TNF-a (G) v séru myší po léčbě každá sloučenina (1,3 mg Mn na kg) jednou za 2 dny po dobu 16 dnů. Data jsou uvedena jako průměr ± SD (n=3). *P < 0.05; **P < 0.01; ***P < 0,001.
Po aktivaci dráhy cGAS-STING v DC a makrofázích pomocí MnPC a MnPVA by secernované IFN-I a proinamační cytokiny mohly aktivovat cytotoxické lymfocyty.59 Proto jsme dále hodnotili aktivaci cytotoxických T buněk (CD8+). ) a pomocné T buňky (CD4+ ) v nádorové, respektive slezinové tkáni. Jak je znázorněno na obr. 14A a S12D–F†, CD8+ T buňky (modrý čtverec) v nádorech byly účinně aktivovány (9,18 %) u myší léčených MnPVA ve srovnání s těmi, kterým byl podáván PBS (3,53 % MnCl2 (4,48 %) a MnPC (6,05 %); CD4+ T buňky (červený čtverec) byly také mírně aktivovány a výsledky byly opačné než výsledky ve slezině po léčbě komplexy. Obr. 14B ukazuje, že frekvence aktivovaných (CD69+) CD8+ T-buněk inltrujících nádor se dramaticky zvýšily. Všechny tyto výsledky ukazují, že MnPVA byl schopen stimulovat silné imunitní reakce in vivo díky aktivaci dráhy cGAS-STING.

Obr. 14 CD8+ (modrý čtverec) a CD4+ T (červený čtverec) buňky (A) a procenta podmnožiny CD69+ mezi CD8+ T buňkami ( B) v nádorové tkáni 4T1 myši po ošetření každou sloučeninou (1,3 mg Mn na kg) jednou každé 2 dny po dobu 16 dnů, stanoveno průtokovou cytometrií.
Mechanismus působení
Bylo navrženo působení pro komplexy Mn, jak je znázorněno na obr. 15. V nádorových buňkách poškodil MnPC nebo MnPVA jadernou a/nebo mitochondriální DNA, což vedlo k up-regulaci g-H2AX; mezitím komplex inhiboval aktivitu HDAC1/2 a PARP1, čímž narušil schopnost opravy DNA a zintenzivnil poškození DNA. Nahromaděné fragmenty DNA byly uvolněny z jádra a/nebo mitochondrií do cytoplazmy a rozpoznány cGAS pro aktivaci STING. STING zase stimuloval fosforylaci TBK1 a IRF3 a translokaci do jádra, čímž indukoval produkci IFN, IL-6 a TNF-a. Tyto IFNs a pro-inamatorní cytokiny byly pak secernovány z jádra do cytosolu a dále do mikroprostředí nádoru, kde podporovaly zrání a prezentaci antigenu DC a makrofágů a dále aktivovaly cytotoxické T buňky k zabíjení rakovinných buněk. Podobné události se také vyskytly v imunitních buňkách, jako jsou makrofágy, a byla aktivována dráha cGAS-STING-TBK1. Aktivace dráhy cGAS-STING iniciovala vrozené imunitní reakce a obousměrnou komunikaci mezi nádorovými buňkami a sousedními imunitními buňkami za účelem zesílení zabíjejícího účinku na nádory.21 V důsledku toho komplexy Mn vykazovaly silnou protinádorovou aktivitu díky synergii mezi chemoterapií a imunoterapií. . Většina těchto procesů byla prokázána in vitro nebo in vivo.
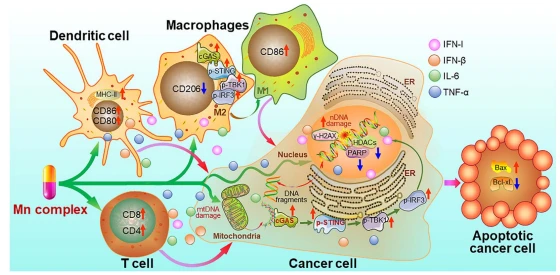
Obr. 15 Navrhovaný mechanismus účinku komplexů manganu.
Závěr
Stále více důkazů ukazuje, že mnoho kovových komplexů interaguje s nádorovými i imunitními buňkami a remodeluje imunosupresivní mikroprostředí kromě toho, že má přímý cytotoxický účinek na nádorové buňky.73 V této studii prezentujeme dva komplexy MnII MnPC a MnPVA jako potenciální chemoimunoterapeutika k potlačení rakoviny prostřednictvím stimulace vrozené imunitní reakce a také štěpení dvouřetězců DNA. Tyto multifunkční komplexy zabíjejí rakovinné buňky nejen poškozením DNA, ale také reaktivací spících imunitních reakcí. Za prvé působí jako přerušovače DNA, vyvolávají oxidační poškození DNA a produkují fragmenty DNA; za druhé, působí jako inhibitory HDAC a PARP1, zabraňují opravě poškození DNA a posilují léze DNA; za třetí, působí jako agonisté dráhy cGAS-STING, indukují sekreci IFN a prozánětlivých cytokinů k podpoře zrání DC a makrofágů a dále stimulují nádorově specifické T buňky k zabíjení nádorových buněk.
cistanche tubulosa-zlepšuje imunitní systém
Kliknutím sem zobrazíte produkty Cistanche Enhance Immunity
【Požádejte o více】 E-mail:cindy.xue@wecistanche.com / Whats App: 0086 18599088692 / Wechat: 18599088692
Celkově vzato MnPC a MnPVA účinně aktivovaly dráhu cGAS-STING a omezovaly růst rakovinných buněk in vitro a in vivo. Navázání VA na komplex MnII dramaticky zesílilo jeho inhibici na HDAC a posílilo antiproliferativní aktivitu komplexu a tvorba komplexů Mn poskytuje významné prodloužení antiproliferativní aktivity MnCl2 a 1,{3}}fenantrolinu. Od té doby, co Jiang a spol. poprvé uváděli stimulační aktivitu Mn2+ na dráhu cGAS-STING,12 žádná taková vlastnost nebyla v komplexech Mn objevena. Tato studie ukazuje, že stimulační schopnost MnPC a MnPVA na dráhu cGAS-STING je mnohem vyšší než schopnost MnCl2 nebo Mn2+ v nádorových i imunitních buňkách, protože indukovaly více fragmentů DNA v cytoplazmě k aktivaci cGAS -STING cesta. Zjištění naznačují, že účinnější agonisty cGAS-STING by bylo možné získat konstrukcí komplexů MnII s ligandy poškozujícími nebo blokujícími opravu DNA.
Reference
1 SL Shiao, AP Ganesan, HS Rugo a LM Coussens, Genes Dev., 2011, 25, 2559–2572.
2 A. Ribas a JD Wolchok, Věda, 2018, 359, 1350–1355.
3 P. Sharma a JP Allison, Věda, 2015, 348, 56–61.
4 M. Yi, D. Jiao, H. Xu, Q. Liu, X. Han a K. Wu, Mol. Rak, 2018, 17, 129.
5 O. Hemminki, JM Dos Santos a A. Hemminki, J. Hematol. Oncol., 2020, 13, 84. 6 S. Yu, A. Li, Q. Liu, T. Li, X. Han a K. Wu, J. Hematol. Onkol., 2017, 10, 78.
7 P. Sharma, S. Hu-Lieskovan, JA Wargo a A. Ribas, Cell, 2017, 168, 707–723.
8 A. Li, M. Yi, S. Qin, Y. Song, Q. Chu a K. Wu, J. Hematol. Onkol., 2019, 12, 35.
9 A. Saeed, X. Ruan, J. Su a S. Ouyang, Adv. Sci., 2020, 7, 1902599.
10 LL van der Woude, MAJ Gorris, CG Figdor a IJM de Vries, Trends Cancer, 2017, 3, 797–808.
11 DS Chen a I. Mellman, Příroda, 2017, 541, 321–330.
12 C. Wang, Y. Guan, M. Lv, R. Zhang, Z. Guo, X. Wei, X. Du, J. Yang, T. Li, Y. Wan, X. Su, X. Huang a Z Jiang, Imunita, 2018, 48, 675–687.
13 Y. Song, Y. Liu, HY Teo, ZB Hana, Y. Mei, Y. Zhu, YL Chua, M. Lv, Z. Jiang a H. Liu, Cell. Mol. Immunol., 2021, 18, 1571–1574.
14 Q. Chen, L. Sun a ZJ Chen, Nat. Immunol., 2016, 17, 1142–1149.
15 F. McNab, K. Mayer-Barber, A. Sher, A. Wack a A. O'Garra, Nat. Rev. Immunol., 2015, 15, 87–103.
16 H. Liu, H. Zhang, X. Wu, D. Ma, J. Wu, L. Wang, F. Liu, D. Yan, C. Chen, Z. Mao a B. Ge, Příroda, 2018, 563 , 131–136.
17 BS Pan, SA Perera, JA Piesvaux, H. Woo, DF Wyss, S. Xu, DJ Bennett a GH Addona, Science, 2020, 369, 935.
18 RD Luteijn, SA Zaver, BG Gowen, SK Wyman, NE Garelis, L. Onia, SM McWhirter, GE Katibah, JE Corn, JJ Woodward a DH Raulet, Příroda, 2019, 573, 434–438.
19 L. Hou, C. Tian, Y. Yan, L. Zhang, H. Zhang a Z. Zhang, ACS Nano, 2020, 14, 3927–3940.
20 M. Gao, YQ Xie, K. Lei, Y. Zhao, A. Kurum, S. Van Herck, Y. Guo, X. Hu a L. Tang, Adv. Ther., 2021, 4, 2100065.
21 Q. Luo, Z. Duan, X. Li, L. Gu, L. Ren, H. Zhu, X. Tian, R. Chen, H. Zhang, Q. Gong, Z. Gu a K. Luo, Adv . Funct. Mater., 2021, 32, 2110408.
22 H. Tian, G. Wang, W. Sang, L. Xie, Z. Zhang, W. Li, J. Yan, Y. Tian, J. Li, B. Li a Y. Dai, Nano Today, 2022, 43, 101405.
23 C. Wang, Z. Sun, C. Zhao, Z. Zhang, H. Wang, Y. Liu, Y. Guo, B. Zhang, L. Gu, Y. Yu, Y. Hu a J. Wu, J Řízené vydání, 2021, 331, 480–490.
24 H. Haase, Imunita, 2018, 48, 616–618.
25 KJ Horning, SW Caito, KG Tipps, AB Bowman a M. Aschner, Annu. Nutr., 2015, 35, 71–108.
26 X. Sun, Y. Zhang, J. Li, KS Park, K. Han, X. Zhou, Y. Xu, J. Nam, J. Xu, X. Shi, L. Wei, YL Lei a JJ Moon, Nat. Nanotechnologie, 2021, 16, 1260–1270.
27 M. Lv, M. Chen, R. Zhang, W. Zhang, C. Wang, Y. Zhang, X. Wei, Y. Guan, YC Liu, Q. Mei, W. Han a Z. Jiang, Cell Res ., 2020, 30, 966–979.
28 SL O'Neal a W. Zheng, Curr. Environ. Health Rep., 2015, 2, 315–328.
29 E. Li, Nat. Genet., 2002, 3, 662–673.
30 M. Guo, Y. Peng, A. Gao, C. Du a JG Herman, Biomark. Res., 2019, 7, 23.
31 A. Duenas-Gonzalez, M. Candelaria, C. Perez-Plascencia, E. Perez-Cardenas, E. de la Cruz-Hernandez a LA Herrera, Cancer Treat. Rev., 2008, 34, 206–222.
32 HV Diyabalanage, ML Granda a JM Hooker, Cancer Lett., 2013, 329, 1–8.
33 T. Robert, F. Vanoli, I. Chiolo, G. Shubassi, KA Bernstein, OA Botrugno, D. Parazzoli, A. Oldani, S. Minucci a M. Foiani, Příroda, 2011, 471, 74–79.
34 JH Lee, ML Choy, L. Ngo, SS Foster a PA Marks, Proc. Natl. Akad. Sci. USA, 2010, 107, 14639–14644.
35 KL Jin, JY Park, EJ Noh, KL Hoe, JH Lee, JH Kim a JH Nam, J. Gynecol. Oncol., 2010, 21, 262–268.
36 M. Gottlicher, S. Minucci, P. Zhu, A. Schimpf a S. Giavara, EMBO J., 2001, 20, 6968–6978.
37 JS Brown, B. O'Carrigan, SP Jackson a TA Yap, Cancer Discovery, 2017, 7, 20–37.
38 AN Weaver a ES Yang, přední. Oncol., 2013, 3, 290.
39 FJ Bock a P. Chang, FEBS J., 2016, 283, 4017–4031.
40 S. Cerboni, N. Jeremiah, M. Gentili, U. Gehrmann, C. Conrad, S. Amigorena, F. Rieux-Laucat a N. Manel, J. Exp. Med., 2017, 214, 1769–1785.
41 C. Pantelidou, O. Sonzogni, M. De Oliveria Taveira, AK Mehta, AJL Guerriero, GM Wulf a GI Shapiro, Cancer Discovery, 2019, 9, 722–737.
42 J. Shen, W. Zhao, Z. Ju, L. Wang, Y. Peng, M. Labrie, TA Yap, GB Mills a G. Peng, Cancer Res., 2019, 79, 311–319.
43 NA Yusoh, H. Ahmad a MR Gill, ChemMedChem, 2020, 15, 2121–2135.
44 F. Mendes, M. Groessl, AA Nazarov, YO Tsybin, G. Sava, I. Santos, PJ Dyson a A. Casini, J. Med. Chem., 2011, 54, 2196–2206.
45 S. Abbas, F. Rashid, E. Ulker, S. Zaib, K. Ayub, S. Ullah, MA Nadeem, S. Yousuf, R. Ludwig, S. Ali a J. Iqbal, J. Biomol. Struktura. Dyn., 2021, 39, 1068–1081.
46 L. Tabrizi, P. McArdle, M. Ektefan a H. Chiniforoshan, Inorg. Chim. Acta, 2016, 439, 138–144.
47 H. Zhang, T. Yang, Y. Wang, Z. Wang, Z. Zhu, ZJ Guo a XY Wang, Dalton Trans., 2021, 50, 304–310.
48 R. Jastrza˛b, M. Nowak, M. Skroba´ nska, A. Toli´ nska, M. Zabiszak, M. Gabryel, L. Marciniak a MT Kaczmarek, Coord. Chem. Rev., 2019, 382, 145–159.
49 Y. Cheng, L. Lv, L. Zhang, Y. Tang a L. Zhang, J. Mol. Struct., 2021, 1228, 129745. 50 Z. Zhu, Z. Wang, C. Zhang, Y. Wang, H. Zhang, Z. Gan, ZJ Guo a XY Wang, Chem. Sci., 2019, 10, 3089–3095.
51 C. Slator, Z. Molphy, V. McKee a A. Kellett, Redox Biol., 2017, 12, 150–161.
52 TJ Hayman, M. Baro, T. MacNeil, C. Phoomak, TN Aung, T. Sandoval Schaefer, BA Burtness, DL Rimm a JN Contessa, Nat. Commun., 2021, 12, 2327.
53 RM Chabanon, M. Rouanne, CJ Lord, JC Soria, P. Pasero a S. Postel-Vinay, Nat. Rev. Rak, 2021, 21, 701–717.
54 AP Wes a GS Shadel, Nat. Rev. Immunol., 2017, 17, 363–375.
55 AP West, W. Khoury-Hanold, M. Staron, MC Tal, CM Pineda, SM Lang, M. Bestwick, BA Duguay, N. Raimundo, DA MacDuff, SM Kaech, JR Smiley, RE Means, A. Iwasaki a GS Shadel, Příroda, 2015, 520, 553–557.
56 S. Jin, Y. Hao, Z. Zhu, N. Muhammad, Z. Zhang, K. Wang, Y. Guo, ZJ Guo a XY Wang, Inorg. Chem., 2018, 57, 11135–11145.
57 NJ Curtin a C. Szabo, Nat. Rev. Drug Discovery, 2020, 19, 711–736.
58 J. Chen, FM Ghazawi, W. Bakkar a Q. Li, Mol. Rakovina, 2006, 5, 71.
59 SM Harding, JL Benci, J. Irianto, DE Discher, AJ Minn a RA Greenberg, Nature, 2017, 548, 466–470.
60 EJ Sayour a DA Mitchell, J. Immunol. Res., 2017, 17, 3145742.
61 BJ Francica, A. Ghasemzadeh, AL Desbien, D. Theodros, KE Sivick, AB Sharabi, ML Leong, SM McWhirter, TW Dubensky Jr, DM Pardoll a CG Drake, Cancer Immunol. Res., 2018, 6, 422–433.
62 C. Vanpouille-Box, S. Demaria, SC Formenti a L. Galluzzi, Cancer Cell, 2018, 34, 361–378.
63 SR Woo, MB Fuertes, L. Corrales, S. Spranger, MJ Furdyna, MY Leung, KA Fitzgerald, ML Alegre a TF Gajewski, Imunita, 2014, 41, 830–842.
64 C. Belli, D. Trapani, G. Viale, P. D'Amico, BA Duso, P. Della Vigna, F. Orsi a G. Curigliano, Cancer Treat. Rev., 2018, 65, 22–32.
65 BU Schraml, J. van Blijswijk, S. Zelenay, PG Whitney, A. Filby, SE Acton, NC Rogers, N. Moncaut, JJ Carvajal a C. Reis e Sousa, Cell, 2013, 154, 843–858.
66 AA van de Loosdrecht, E. Nennie, GJ Ossenkoppele, RHJ Beelen a MMAC Langenhuijsen, J. Immunol. Methods, 1991, 141, 15–22.
67 S. Zhang, X. Zhong, H. Yuan, Y. Guo, D. Song, F. Qi, Z. Zhu, XY Wang a ZJ Guo, Chem. Sci., 2020, 11, 3829–3835.
68 Y. Li a E. Seto, Cold Spring Harbor Perspect. Med., 2016, 6, a026831.
69 C. Chen, Y. Tong, Y. Zheng, Y. Shi, Z. Chen, J. Li, X. Liu, D. Zhang a H. Yang, Small, 2021, 17, e2006970.
70 A. Mantovani, F. Marchesi, A. Malesci, L. Laghi a P. Allavena, Nat. Clin. Oncol., 2017, 14, 399–416.
71 B. Ruffell a LM Coussens, Cancer Cell, 2015, 27, 462–472.
72 W. He, N. Kapate, CW t. Shields a S. Mitragotri, Adv. Dodávka léků Rev., 2020, 17, 251–266.
73 B. Englinger, C. Pirker, P. Heffeter, A. Terenzi, CR Kowol, BK Keppler a W. Berger, Chem. Rev., 2019, 119, 1519–1624.


