Buňky vložené do ledvin jsou fagocytární a okyselují internalizovanou uropatogenní Escherichia Coli
Feb 28, 2022
ledvinyinterkalované buňky se účastní acidobazické homeostázy prostřednictvím vakuolární exprese ATPázy. Zde uvádíme šest podtypů lidských interkalovaných buněk, včetně hybridních hlavních interkalovaných buněk identifikovaných z transkriptomiky jedné buňky. Zrání fagosomů je biologický proces, který zvyšuje hodnocení analýzy biologických drah po expozici uropatogenní Escherichia coli ve dvou interkalovaných podtypech buněk. Vizualizace myší konfokální mikroskopií v reálném časeledvinovétubuly perfundované zeleným fluorescenčním proteinem exprimujícím Escherichia coli nebo pHrodo Green E. coli BioParticles demonstrují, že interkalované buňky aktivně fagocytují bakterie a následně okyselují fagolyzozomy. Kromě toho mají interkalované buňky zvýšenou expresi vakuolární ATPázy po in vivo experimentální UTI. Dohromady interkalované buňky vykazují transkripční odpověď vedoucí kledvinyobrany, pohltí bakterie a okyselí internalizované bakterie. Interkalované buňky představují epiteliální buňku s charakteristikami profesionálních fagocytů, jako jsou makrofágy.
klíčová slova:onemocnění ledvin;tkáň ledvin;buňky ledvin;ledviny; ledvinové
Sběrný tubul ledvin je koncovým místem pro acidobazickou regulaci 1 . Sběrný kanálek se skládá z hlavních buněk a interkalovaných buněk (IC). Hlavní buňky (PC) zprostředkovávají resorpci soli a vody a jsou charakterizovány cytoplazmatickým aquaporinem 2 (AQP2) 2 . IC pomáhají udržovat acidobazickou homeostázu a mají tři popsané podtypy, typ A (A-IC), typ B (B-IC) a nonA–nonB2,3. A-IC vylučují protony přes apikální vakuolární H-ATPázu (V-ATPázu) a regenerují bikarbonát přes bazilární chlorid/bikarbonátový (Cl − /HCO 3 ) transportér, výměna aniontů 1 (AE1/pás 3/SLC4A1) 1,4. B-IC vylučují HCO 3 − prostřednictvím apikálního Cl −/HCO 3 transportéru, pendrinu (SLC26A4), a exprimují bazolaterální V-ATPázu 2,3. Hlodavci nonA–nonB IC mají apikální pendrin a V-ATPázu, ale žádnou AE1, a byly identifikovány ve sběrném kanálku a spojovacím tubulu (CNT) 3 . Stále více důkazů podporuje vrozenou imunitní roli IC spolu s jejich tradiční funkcí regulace pH. Za prvé, většina z deseti nepříbuzných pacientů s distálníledvinovébylo hlášeno, že tubulární acidóza, stav charakterizovaný dysfunkcí IC, má v anamnéze UTI 5 . Za druhé, uropatogenní Escherichia coli (UPEC), organismus izolovaný u 70 procent akutní pyelonefritidy u mužů a 80 procent u žen, se selektivně lokalizuje do cytoplazmy IC6,7. Za třetí, identifikovali jsme, že IC exprimují antimikrobiální peptidy (AMP), jako je ribonukleáza 7 (RNASE7)8–11. Tyto AMP mají přímou aktivitu proti řadě patogenů, včetně bakterií, na začátku a/nebo jako odpověď na infekci 8–11. Za čtvrté, my a další jsme nezávisle uvedli, že myši s abnormálním vývojem IC mají zvýšenou náchylnost k infekcím močových cest (UTI) a/nebo pyelonefritidě12,13. Za páté, IC snímají i zprostředkovávají zánět 14 . Nakonec jsme prokázali expresi vrozeného imunitního genu v izolovaných myších IC 15,16

CISTANCHE ZLEPŠÍ FUNKCI LEDVIN/RENÁL
Pochopení toho, jak IC chrání močový trakt před infekcí, je důležité, protože s UTI se často setkáváme. Více než 50 procent žen se během života setká s infekcí močových cest a infekce močových cest tvoří 1–6 procent všech lékařských návštěv 17 . Když bakterie stoupají kledvinyvedoucí k pyelonefritidě, potenciální komplikace zahrnují hypertenzi, chronickounemoc ledvina urosepse 18,19. Odhaduje se, že ve Spojených státech se ročně objeví 250000 případů pyelonefritidy 17 . Mnohočetná léková rezistence se objevuje jako kritická výzva týkající se léčby infekcí močových cest a dalších infekcí 20 . Proto mechanismy, které IC používají k obraně proti vzestupným uropatogenům, mohou být terapeutickými cíli, které by mohly být využity k vývojiledvina- specifická léčba pyelonefritidy. Protože většina studií IC zahrnuje zvířecí modely, bude zapotřebí lepší porozumění lidským IC, aby bylo možné základní vědecké studie vést ke zlepšení klinické péče.
Protoželedvinaje složitý orgán, může být obtížné interpretovat profily mRNA. Například nefron má regionální specializaci s odlišnými tubulárními segmenty a buněčnými subtypy. Theledvinaobsahuje endoteliální, epiteliální, intersticiální a rekrutované zánětlivé buňky, všechny s odlišnými biologickými funkcemi a vzory genové exprese. Jednobuněčné sekvenování RNA (scRNA-seq) představuje rychle se rozvíjející metodologii pro identifikaci a profilování odlišných typů buněk na začátku nebo v reakci na stresory21. Zde ukazujeme pomocí technologie scRNA-seq, že člověkledvinaIC se skládají ze šesti různých podskupin, které zahrnují tři A-IC, jeden hybridní IC-PC, jeden nonA-nonB IC a jeden B-IC. Analýza rychlosti RNA odhalila transkripční posun od PC směrem k podskupinám A-IC po expozici UPEC. Analýza dráhy vynalézavosti odhalila zrání fagozomů jako klíčovou biologickou dráhu v podskupině A-IC po expozici UPEC. V rámci této cesty jsou klíčovými zapojenými komponentami V-ATPázy. Použili jsme intravitální mikroskopii k vizualizaci in vivo vychytávání UPEC IC a potvrdili acidifikaci UPEC internalizované v těchto IC. Nakonec myší model UTI prokázal zvýšení exprese mRNA V-ATPázy (Atp6v1b1). Tato studie poskytne základ pro zkoumání a terapeutickou manipulaci epiteliálních buněk exprimujících V-ATPázu jako bakteriálních fagocytů.
Výsledek
Lidské IC mohou být obohaceny pomocí magneticky aktivovaného třídění buněk (MACS) s magnetickými kuličkami potaženými receptorem pro růstový faktor žírných/kmenových buněk (CD117/c-KIT). Člověkledvinatkáně, především z normálních okrajůledvinahromadné resekce, byl rozřezán na 2–4-mm kousky a poté přes noc převezen do naší laboratoře v Dulbeccově modifikovaném orlím médiu (DMEM) na ledu organizací Cooperative Human Tissue Network [https://www.chtn.org]. Hodnotili jsme c-KIT jako marker buněčného povrchu pro třídění lidských IC, protože c-KIT byl pro tento účel úspěšně použit u myší22. Exprese c-KIT lokalizovaná do lidských IC na základě zjištění, že c-KIT a lidský IC marker V-ATPáza, podjednotka B1 (gen ATP6V1B1), společně značily stejné buňky v lidském organismu.ledvinařez (doplňkový obr. 1) 22,23 . Po magnetickém třídění, které zahrnovalo odstranění CD45 plus imunitních buněk a mrtvých buněk; obohacení c-KIT-pozitivních předpokládaných IC bylo prokázáno expresí ATP6V1B1 mRNA, která se u c-Kit-pozitivních buněk zvýšila 8–12-krát ve srovnání s c-KIT-negativními buňkami. Jak SLC4A1, tak SLC26A4 byly variabilně obohaceny v IC, což dokazuje, že pomocí této metodiky je možné obohacení jak A-IC, tak / nebo B-IC (doplňkový obrázek 2). Pozadí ledvinové tkáně použité v této studii je uvedeno v doplňkové tabulce 1.
Integrovaná shluková analýza identifikovala šest podtypů IC.ScRNA-seq byla dokončena v roce 1861 disociovánaledvinabuňky, které byly obohaceny o IC, jak je popsáno výše. Obohacené IC byly získány z normálních okrajů jednoholedvinahromadná resekce. Filtrací kontroly kvality (QC) prošlo 859 buněk vystavených UPEC in vitro po dobu 1 hodiny a 1002 buněk vystavených fyziologickému roztoku in vitro po dobu 1 hodiny. Analýza funkce Seurat identifikovala 12 shluků v preparaci vytříděných buněk (obr. 1a). Devět nejvíce konzervovaných markerů v každém shluku je uvedeno na doplňkových obrázcích. 3–14. Celkově IC podtypy představovaly 1066 (57 procent) z 1861 buněk. Šest z klastrů představovalo podtypy IC. Konkrétně jsme našli tři A-IC, jeden B-IC, jeden nonA-nonB-IC a jeden hybridní PC-IC subtyp(y).ledvinynomenklatura epiteliálních buněk doporučená Chenem a kolegy, konzervovaní tvůrci, o kterých bylo dříve hlášeno, že jsou markery buněčného typu nebo konzervované markery, které odlišují jeden z 12 shluků od ostatních, byly použity k přiřazení typu buňky ke každému shluku (doplňková tabulka 2 , obr. 1b, c, obr. 2) 24–28 .
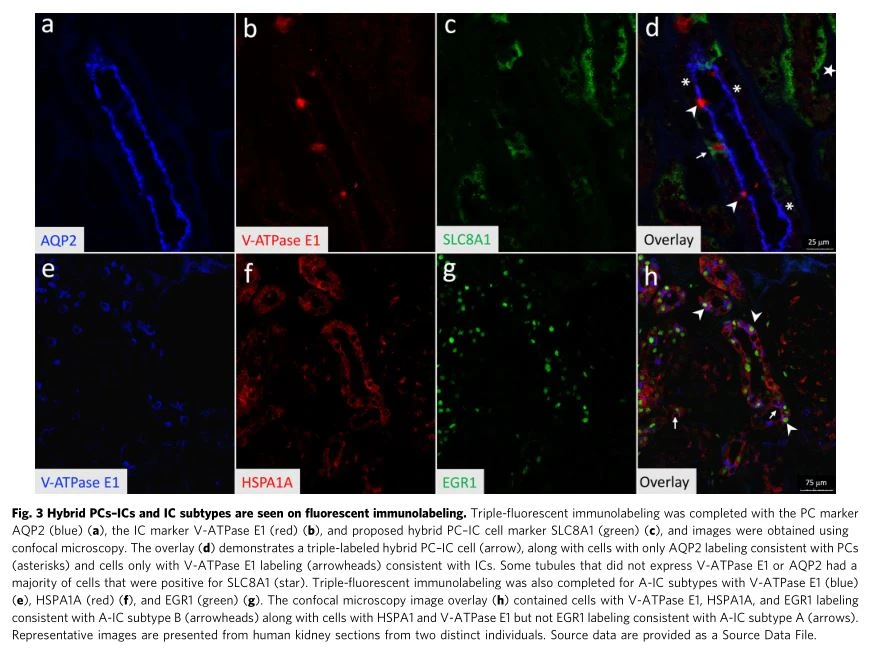
Exprese subtypu A-IC a hybridního PC–IC proteinu koreluje s výsledky scRNA-seq. Ověřili jsme klíčová zjištění scRNA-seq, zejména to, že SLC8A1 (také označovaný jako Na plus /Ca plus výměník 1 (NCX1)) je markerem pro hybridní PC-IC a že člen rodiny proteinů tepelného šoku A (Hsp70) 1A (HSPA1A) spolu s časnou růstovou odpovědí 1 (EGR1) jsou markery, které mohou diferencovat podtypy A-IC (obr. 3). Protože jsme použili normální okrajeledvinaresekce rakoviny jsme potvrdili, že naše SLC8A1, HSPA1A a EGR1ledvinavzory exprese byly konzistentní s těmi, které byly pozorovány u normálníchledvinatkáň z Human Protein Atlas dostupné z http://www.proteinatlas.org (doplňkový obr. 15) 29
Sběr profilů markerů podtypů buněk kanálků dříve demonstrovaných u myšíledvinabuňky zůstávají u člověka z velké části nedotčenéledvinabuňky. Protože bude důležité uvést do kontextu nálezy budoucího myšího modelu s lidskou patofyziologií, hodnotili jsme lidskou IC expresi markerů myších kanálků sbírajících kanálky identifikovaných dříve ve studiích scRNA-seq provedených Chen et al. 22 a Ransick a kol. 30. Bodový graf výsledků je uveden na obr. 4. Markery buněčného typu myších sběrných kanálků jsou většinou konzervovány v lidských buňkách sběrných kanálků.

A-IC subtyp A se zvyšuje v relativním procentu s 1 hodinou expozice UPEC. Procenta buněk v klastrech byla konzistentní mezi typem expozice s výjimkou A-IC podtypu A/shluk 0, který se zvýšil z 16,2 na 20,1 procenta, a A-IC podtypu C/shluk 5, který se snížil z 9,4 na 6,6 procenta, s expozicemi fyziologického roztoku vs. UPEC, P =0,03 (tabulka 1).
Hybridní buňky PC-IC mění svou rychlost RNA směrem od PC a směrem k A-IC v reakci na 1 hodinu expozice UPEC. Relativní množství nedávno transkribovaných nesestříhaných pre-mRNA vs. zralé sestřihnuté mRNA lze použít k výpočtu změny v množství mRNA, nazývané rychlost mRNA31. Pozitivní rychlost mRNA v jednobuněčných studiích ukazuje, že geny jsou upregulovány, kdežto negativní rychlost mRNA znamená, že geny jsou regulovány směrem dolů31. Směr rychlosti RNA vyvozuje, že buňka má trajektorii exprese mRNA směrem k jinému buněčnému typu31,32. Rychlost mRNA v reakci na expozici UPEC je uvedena na obr. 5. Důležité je, že hybridní PC–IC mění svou rychlost RNA směrem od PC a směrem k IC v reakci na UPEC. Kromě toho si IC udržují svou transkripční aktivitu, zatímco u jiných je transkripční aktivita minimálníledvinatypy buněk.
Vrozený imunitní profil ledvin ukazuje některé časné změny exprese jednotlivých buněk po 1 hodině expozice UPEC.Vzorce exprese scRNA-seq vybraných vrozených imunitních genů po expozici UPEC vs. fyziologickému roztoku po dobu 1 hodiny jsou uvedeny na doplňkových obrázcích. 16 a 17. Klíčová zjištění zahrnují vysokou expresi AMP adrenomedullin (ADM) v A-IC podtypech A a B, hybridních PC-IC a B-IC. PC neexprimují adrenomedullin na začátku, ale mají významně zvýšenou expresi v reakci na expozici UPEC. Cytokiny indukovatelný SH2-obsahující protein (CISH) a expresi autointegračního faktoru 1 (BANF1) je významně indukován v nonA–nonB IC po expozici UPEC. Interleukin 18 (IL18), galektin 3 (LGALS3), beta defensin 1 (DEFB1) a převaděč signálu CD24 lipokalin 2/neutrofilní lipokalin spojený s gelatinázou (LCN2/NGAL) byly pouze identifikovány

v hybridních PC–IC a byla přítomna pouze minimální exprese mRNA receptoru 4 typu Toll. Neidentifikovali jsme expresi ribonukleázy 7 (RNASE7) na scRNA-seq. Hodnotili jsme expresi mRNA RNASE7 v magneticky tříděných spojených IC a non-ICledvinabuňky. Exprese mRNA RNASE7 byla identifikována v IC od jednoho ze čtyřledviny(Doplňkový obr. 18).
Biologický proces zrání fagozomů je spojen s IC vystavenými UPEC po dobu 1 hodiny.Deset vedoucích biologických drah spojených s každým shlukem bylo seřazeno podle hodnoty p, jak bylo stanoveno analýzou cesty vynalézavosti. Tři shluky přiřazené sběrnému kanálku A-IC podtyp A/shluk 0, A-IC podtyp B/ shluk 3 a A-IC podtyp C/shluk 5 měly po expozici UPEC odlišné procesy biologické dráhy ve srovnání s fyziologickým roztokem (obr. 6a–c). Zrání fagozomů bylo nejvýše hodnocenou funkcí v buňkách vystavených UPEC a fyziologickému roztoku v A-IC podtypu C/shluk 5, přesunuto z druhé na první pozici v A-IC podtypu A/shluku 0 a ze čtvrté na třetí nejvyšší pozici v A-IC podtypu B/ klastr 3. Žádný ze zbývajících podtypů buněk sběrných kanálků (doplňkový obrázek 19) neměl prvních deset přidružených drah, které byly odlišné po expozici UPEC ve srovnání s fyziologickým roztokem. Profil genové exprese, který vedl k hodnocení zrání fagozomů pro A-IC podtyp A/klastr 0, je uveden v doplňkové tabulce 3.
Exprese IC Atp6v1b1 mRNA se zvyšuje v reakci naexperimentální pyelonefritida in vivo.Dráha zrání fagozomů Ingenuity zdůraznila, že V-ATPáza je zapojena do IC (doplňková tabulka 3). K určení, zda je V-ATPáza aktivována po expozici UPEC, jsme použili myší model UTI. Jednu hodinu po transuretrální inokulaci UPEC vs fyziologickým roztokem „IC reportér“ myši, které mají expresi tdTomato (tdT, varianta červeného fluorescenčního proteinu) v IC, byly usmrceny a IC byly obohaceny z disociovanýchledvinové buňky. Obohacené IC měly vyšší expresi Atp6v1b1 mRNA u myší s inokulací UPEC ve srovnání s kontrolou s fyziologickým roztokem (obr. 6d).
IC fagocytují UPEC in vivo.Vyvinuli jsme metodiku pro perfuzi singluledvinatubule s UPEC v živé myši s intaktníledvina.Agregáty UPEC exprimující zelený fluorescenční protein (GFP) mikroperfundované do jediného lumenu ledvinového tubulu myší "IC reporter" byly vizualizovány, jak protékají tubuly, selektivně ulpívají na luminálním povrchu a jsou internalizovány IC (obr. 7) během intravitální mikroskopie.
IC okyselují fagolysozomy obsahující UPEC in vivo ain vitro.Také jsme promývali tubuly pomocí pHrodo Green E. coli BioParticles, které fluoreskují pouze při okyselení. Absorpce a fluorescence těchto biočástic byla vizualizována pouze během intravitální mikroskopie v IC (obr. 8). Segmentační analýza Imaris prokázala, že zelená fluorescence se v průběhu času významně zvýšila u tdT plus IC ve 2 tubulech perfundovaných pomocí pHrodo Green E. coli BioParticles ve srovnání s kontrolním tdT plus tubulem (obr. 9a, b). Když byla fluorescence hodnocena na buněčném základě, 12/16 (75 procent) tdT plus buněk vykazovalo zvýšení zelené fluorescence v průběhu času po tubulární perfuzi s pHrodo Green E. coli BioParticles (obr. 9b). Výsledky lineární regrese z každé buňky jsou uvedeny v doplňkové tabulce 4. Živé in vivo intravitální zobrazovací nálezy fagocytózy a acidifikace PHrodo Green E. coli BioParticles pomocí IC byly validovány pomocí in vitro testu průtokové cytometrie. myšiceledvinová buňkasuspenze z myší "IC reporter", ve kterých IC (CD45 - tdT plus) endogenně exprimují tdT, byla vystavena působení pHrodo Green E. coli BioParticles proti buňkám se samotným médiem. CD45 plus rezidentní imunitní buňky v buněčné suspenzi byly uzavřeny jako pozitivní kontrola a buňky CD45 - tdT - (non-ICs) byly uzavřeny jako negativní kontrola. Srovnání samotných médií s
expozice biočásticím, zelená fluorescence indikující získávání biočástic a acidifikaci se zvýšila z {{0}},7 na 62,8 procent buněk CD45 plus. Toto zjištění demonstruje očekávaný bakteriální příjem profesionálními fagocyty, jako jsou neutrofily. Zajímavé je, že 22,2 procenta IC mělo příjem zelených biočástic ve srovnání s 5,6 procenty non-IC (doplňkový obrázek 20), kontrola média měla příjem u 0,7 procenta IC a 0 procent non-IC.
Diskuse
IC je obtížné studovat, zejména u lidí, protože tvoří pouze 7 procentledvinabuňky, sestávají z řady podtypů a nezachovávají si svůj fenotyp v kultuře33. Chen a kol. 22 uvedli jednobuněčnou analýzu na myšíchledvinabuňky a Lake et al. ohlásili jednojaderné sekvenování RNA na člověkuledvinabuňky 34,35 . Tyto studie identifikovaly dva podtypy A-IC. Zde jsme vyvinuli metodologii pro provádění jednobuněčného sekvenování na životaschopných obohacených lidských IC. Obohatili jsme o životaschopné integrované obvody, místo abychom sekvenovali všechnyledvinabuňky, aby se umožnilo zvýšené zaměření na tento typ buněk. Naše primární zjištění byla (a) identifikace, že hybridní PC – IC mohou změnit směr své rychlosti RNA od PC a směrem k A-IC v reakci na expozici UPEC, (b) existují alespoň tři podtypy A-IC a jejich relativní frekvence se mohou posunout v reakci na expozici UPEC, (c) zrání fagozomů je hlavní biologickou cestou u mnoha podtypů A-IC a může vzrůst na relativní významnosti s expozicí UPEC a (d) IC fagocytují a okyselují UPEC in vivo během zobrazování živých myši.
IC se diferencují v reakci na acidózu obrácením polarity36,37. Bylo popsáno, že IC vznikají z buněk exprimujících AQP2-38. V roce 2017 Chen a kolegové identifikovali dvojitě pozitivní buňky, které exprimovaly Aqp2 spolu s Slc4a1 nebo Slc26a4 pomocí myšího jednobuněčného profilování. Tato zjištění byla potvrzena Parkem a kolegy v následujícím roce 22,35 . V roce 2019 jsme imunoznačením proteinů a mRNA prokázali, že existují hybridní PC–IC 15 . Konkrétně 9 procent myších IC definovaných fluorescenčním imunoznačením V-ATPázou B1 také exprimovalo Aqp2 mRNA definovanou fluorescenční in situ hybridizací15. Tato studie definovala populaci lidíledvina-sběr buněk z kanálků, které exprimují AQP2, ATP6V1G3 a SLC4A1 v souladu s hybridními PC–IC. Na grafech tSNE a UMAP se tyto hybridní buňky shlukovaly nejblíže k PC, ale byly odlišné od tradičních PC na základě exprese IC markeru. Exprese SLC8A1 byla odlišná od tohoto buněčného typu. Je zajímavé, že SLC8A1 se výrazně podílí na přechodu z epitelu na mezenchym. Konkrétně nepřítomnost SLC8A1 transformuje fenotypy epiteliálních buněk prostřednictvím destabilizace E-cadherinu zprostředkované -cateninem39. Zde ukazujeme, že IC se diferencují v reakci na expozici uropatogenu. Hybridní buňky PC–IC mění svou rychlost RNA, časovou derivaci exprese mRNA, směrem od PC a směrem k A-IC v reakci na UPEC. U myší Ransick et al. 30 identifikoval expresi Slc8a1 primárně v distálním stočeném tubulu a buňky připomínající PC ve spojovacím tubulu. Na naší konfokální mikroskopii vyhodnocování snímkůledvinaExpresi SLC8A1 jsme našli izolované buňky, které exprimovaly SLC8A1 v AQP2-pozitivních tubulech (např. sběrné kanálky nebo spojovací tubuly). Identifikovali jsme také AQP2-negativní tubuly, ve kterých většina buněk exprimovala SLC8A1, potenciálně konzistentní s výše zmíněnou expresí Slc8a1 v distálních stočených tubulech u myší. Některé podtypy A-IC mají odlišné vedoucí biologické dráhy po expozici UPEC a podtyp A-IC A se zvýšenou relativní frekvencí v reakci na UPEC. Tato zjištění naznačují, že A-IC podtyp A může představovat vrozenou imunitní variantu. Role SLC8A1 v diferenciaci IC vyžaduje zkoumání v budoucích studiích.
CISTANCHE ZLEPŠÍ SELHÁNÍ LEDVIN/RENÁL
Provedli jsme scRNA-seq na 1861 lidechledvinabuněk, z nichž 1066 bylo IC. Aby bylo možné uvést myší experimentální modely do kontextu lidské patofyziologie, bude důležité porovnat lidské a myší IC. Chen a kolegové obohacení o myší IC pomocí c-KIT a provedli scRNA-seq22. Klasifikovali 74 buněk jako PC, 87 jako A-IC a 23 buněk jako B-IC22. Ransick a kol. 30 provedl scRNA-seq na 688 IC. Neobohacovaly pro IC, ale spíše rozdělovalyledvinado kůry, vnitřní dřeně a vnější dřeně k vyhodnocení zonálních rozdílů 30 . Prokázali jsme, že exprese markerů buněčného typu myších sběrných kanálků se zdála být do značné míry konzervovaná v lidských buňkách sběrných kanálků. Zda myši mají srovnatelné A-IC podtypy jako lidé, bude pravděpodobně vyžadovat cílené jednobuněčné hodnocení většího počtu myších IC.
Identifikovali jsme expresi scRNA-seq IC vrozených imunitních proteinů, jako je imunitní a zánětlivý mediátor galektin 3 (LGALS3) a ADM, o kterých jsme dříve informovali u IC hlodavců15,40–42. Některé klíčové vrozené imunitní proteiny dříve hlášené v IC, jako je Lipocalin 2 (LCN2/NGAL), RNASE7 a Toll-like receptor 4 (TLR4), však měly minimální expresi nebo nebyly pozorovány v lidských IC na úrovni jedné buňky v naše analýza 6,9 . Nedostatek exprese LCN2/NGAL a TLR4 v IC je konzistentní s tím, co bylo hlášeno u myších IC naší výzkumnou skupinou spolu s Ransickem et al. 30ledvinacellexplorer/] 15 . Chen a kol. 22 uváděl určitou expresi TLR4 a NGAL mRNA v IC, ale několikanásobně méně než v PC. Vyhodnotili jsme sdružené lidské IC pro expresi RNASE7 a identifikovali jsme ji v IC od 1 ze 4ledviny(Doplňkový obrázek 18), což naznačuje, že jeho exprese může být přerušovaná v závislosti na oblasti, časovém bodu a fyziologických podmínkách. Bylo prokázáno, že exprese CISH, která je indukována v nonA nonB IC jako odpověď na UPEC, reguluje vrozenou imunitní odpověď na Mycobacterium tuberculosis v plicích a slezině43. IC fagocytovaly bakterie během několika minut a naše buňky pro scRNA-seq byly vystaveny UPEC na relativně krátký časový bod 1 hodiny. Budoucí studie jsou potřebné ke stanovení, zda se další IC dráhy, jako je exprese AMP nebo regulace buněčné smrti, stanou významnějšími v pozdějších časových bodech po expozici UPEC.
Phagocytosis involves the cellular uptake of particulates >0.5 μm obalem plazmatické membrány 44 . „Profesionální fagocyty“, imunitní buňky odvozené od myeloidů, včetně makrofágů, neutrofilů a osteoklastů odlišují invazní mikroby od mikrobioty a zdravých buněk, pohlcují cíl do fagozomu, vytvářejí reaktivní formy kyslíku (ROS), vylučují AMP a prezentují antigeny. ostatní buňky 45–49 . Důležité je, že charakteristickým znakem profesionálních fagocytů je robustní acidifikace fagolyzozomů V-ATPázou vytvářející kyselé mikroprostředí dostatečné pro zabíjení většiny mikrobů 48,50 . Například inhibice V-ATPázy pomocí bafilomycinu AI potlačuje baktericidní aktivitu makrofágů51. Některé epiteliální buňky fagocytují mikroby, ale jsou méně účinné při zabíjení bakterií než profesionální fagocyty a byly popsány jako neprofesionální fagocyty52. IC představují epiteliální linii, která má schopnost fagocytózy a prezentace antigenu (obr. 6–9) spolu s robustní expresí AMP a velkorysými mitochondriemi pro tvorbu ROS; zdá se tedy, že IC mají srovnatelnější potenciál zabíjení bakterií s makrofágy než výše uvedené neprofesionální fagocyty8,53–55. Již dříve bylo prokázáno, že A-IC jsou schopné vysoké míry apikální endocytózy dextranu do cytoplazmatických váčků56. Předpokládáme, že IC fagocytóza UPEC je rozšířením charakteristik sdílených s makrofágy, včetně exprese V-ATPázy, redoxního potenciálu, sekrece AMP a schopností endocytózy8,16,49,57,58. Zda mohou IC fagocytovat buněčné zbytky a bakterie jiné než UPEC podobným způsobem jako profesionální fagocyty, je třeba ještě určit.
Konfokální zobrazení jednoholedvinatubul perfundovaný in vivo bakteriemi expanduje na dřívějších technikách in vitro, jako je buněčná kultura a perfuze vypreparovaných tubulů. Zde jsme vyvinuli metodologii pro přímé testování na živých myších, zda je fagocytóza funkcí IC. Intravitální mikroskopie umožňuje složité studium dynamických buněčných procesů ve fungujících myšíchledviny59. Minulé strategie využití intravitální mikroskopie zahrnovaly systémovou injekci intravitálních barviv nebo markerů do myší ke studiu endocytózy proximálních tubulů,ledvinadynamika průtoku krve a vaskulární nebo glomerulární permeabilita 60 . Když je intravitální mikroskopie kombinována se sofistikovanými chirurgickými technikami, lze studovat obtížně vyhodnotitelné časné body infekčních procesů61. Dříve byly bakterie mikroperfundovány v proximálních tubulech krys, aby se vyhodnotil průtok krve, nábor neutrofilů a obstrukce moči62,63. Naprostá většina infekcí močových cest je způsobena vzestupnými patogeny a zpočátku by narazily na sběrný kanál64,65. Proto navrhujeme, aby sběrný kanál byl kritickou tubulární oblastí pro hodnocení interakcí hostitel-patogen. Náš intravitální modelový systém účinně obnovuje klasický
CISTANCHE ZLEPŠÍ ONEMOCNĚNÍ LEDVIN/RENÁL
studie perfuze jednoho sběrného tubulu, ale na živé myši s intaktníledvina,krevní, lymfatické a neuronální zásobení spolu se zachovanou schopností interakce s imunitními buňkami. Patofyziologie pyelonefritidy má rozdíly mezi muži a ženami. Například u lidí je u samic pětkrát vyšší pravděpodobnost rozvoje akutní pyelonefritidy, ale samci myší mají androgeny zprostředkovanou zvýšenou závažnost pyelonefritidy66,67. Ransick a kolegové prokázali rozdílné mužské a ženské rozdíly v buňkách proximálních tubulů, zejména v transportérech organických aniontů 30 . Mužské IC byly hodnoceny jak v našich jednobuněčných sekvenačních studiích, tak v intravitálních studiích. Vzhledem k roli IC v bakteriální obraněledvinaa elektrolytová rovnováha, pohlavní rozmanitost ve funkcích IC, jako je fagocytóza a exprese jednobuněčných genů, budou klíčovými oblastmi pro budoucí studie. Tato studie má omezení. Expozice UPEC lidským IC v našem scRNA-seq byla in vitro jednaledvinaa mohou mít rozdíly ve srovnání s expozicí UPEC in vivo. Naše nálezy navíc představovaly anatomickou oblast člověkaledvinavzorky a budoucí studie s různými umístěními mohou mít regionalizovanou diverzitu, jak prokázali Ransick et al. 30. IC obsahovaly 57 procent buněk v našem scRNA-seq, obohacené o ~7 procent složení IC vledvinyna základní linii 33. Náš vzorek obsahoval některé další typy epiteliálních a endoteliálních buněk, ale byl negativní na CD45 plus imunitní buňky, které byly vytříděny před obohacením IC (obr. 1, doplňkový obr. 1). Pomocí scRNA-seq mohly být cílové IC identifikovány a vyhodnoceny samostatně. Hematopoetické kmenové buňky exprimují c-KIT, ale pravděpodobně nepředstavujíledvinarezidentní myeloidní buněčné populace68. Jiné buňky exprimující c-KIT přítomné u zdravého člověka jsme neidentifikovaliledvinyjako jsou stromální buňky/telocyty69. Již dříve byla popsána určitá izolovaná pozitivita Henleovy kličky a proximálního tubulu c-KITledvinaimunohistochemie v souladu s našimi výsledky scRNA-seq 70