Buněčný extrakt Jasminum Sambac jako posilovač antioxidantů proti stárnutí pleti, část 2
Jul 03, 2023
Glykosid cistanche může také zvýšit aktivitu SOD v srdeční a jaterní tkáni a významně snížit obsah lipofuscinu a MDA v každé tkáni, účinně zachycovat různé reaktivní kyslíkové radikály (OH-, H₂O₂ atd.) a chránit před způsobeným poškozením DNA. OH-radikály. Fenylethanoidové glykosidy Cistanche mají robustní vychytávací schopnost volných radikálů, vyšší redukční schopnost než vitamin C, zlepšují aktivitu SOD v suspenzi spermatu, snižují obsah MDA a mají určitý ochranný účinek na funkci membrány spermií. Polysacharidy Cistanche mohou zvýšit aktivitu SOD a GSH-Px v erytrocytech a plicních tkáních experimentálně senescentních myší způsobených D-galaktózou, stejně jako snížit obsah MDA a kolagenu v plicích a plazmě a zvýšit obsah elastinu. dobrý čisticí účinek na DPPH, prodlužuje dobu hypoxie u senescentních myší, zlepšuje aktivitu SOD v séru a oddaluje fyziologickou degeneraci plic u experimentálně senescentních myší Experimenty prokázaly, že Cistanche má dobrou antioxidační schopnost s buněčnou morfologickou degenerací a má potenciál být lékem k prevenci a léčbě nemocí stárnutí kůže. Zároveň má echinakosid v Cistanche významnou schopnost vychytávat volné radikály DPPH a dokáže vychytávat reaktivní formy kyslíku, bránit volnými radikály indukované degradaci kolagenu a má také dobrý opravný účinek na poškození aniontů volnými radikály thyminu.

Klikněte na výhody rou cong rong
【Další informace:george.deng@wecistanche.com / WhatApp:{0}}】
Kromě toho byla také provedena úloha Feature-Based Molecular Networking (FBMN). Může seskupit příbuzné NP v rámci sítě, protože strukturně podobné molekuly sdílejí podobné vzorce fragmentace MS/MS [20]. Úloha FBMN nám umožnila identifikovat několik chlorogenových kyselin uvedených na obrázku 2 a tabulce S1 a zakroužkovaných zeleně. Sloučeniny eluované v 13,32, 14,39 a 15,34 min a generující stejný deprotonovaný ion [MH]- při m/z 353,09 byly rozpoznány jako monokafeoylchinové kyseliny (CQA, C16H18O9, hmotnostní chyba 5,38 ppm). Ionty MS2 při m/z 191,06 a 173,04 skutečně odpovídají deprotonované a dehydratované kyselině chinové, zatímco fragmenty při m/z 179,03 a 135,04 pocházejí z deprotonace a dekarboxylace caffeoylového zbytku. Základní pík MS2 druhu s RT 15,34 min při m/z 173,04 umožnil jeho přiřazení jako 4-CQA. Další dvě sloučeniny poskytly stejný pík báze MS2 při m/z 191,06, ale intenzita fragmentového iontu při m/z 179,03 nám umožnila identifikovat první sloučeninu (RT 13,32; m/z 179,03 intenzita 40 procent) jako 3-CQA a druhá (RT 14,39; m/z 179,03 intenzita 4 procenta) jako 5-CQA [23].
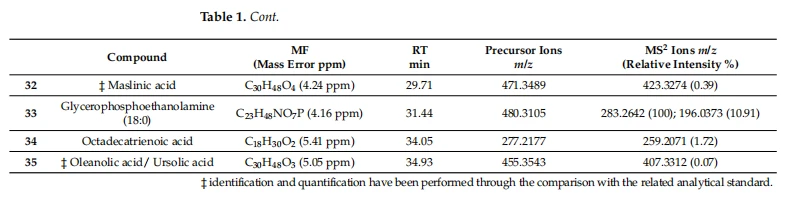

Sloučenina s RT 16,34 min a mateřským iontem při m/z 367,10 (C17H20O9, hmotnostní chyba 5,45 ppm) je kyselina feruloylchinová (FQA): ionty MS2 při m/z 193,05 a 134,04 pocházejí z dekarboxylace deprotonu a dekarboxylace feruloylová skupina, v daném pořadí. Pík báze MS2 při m/z 191,06, odpovídající deprotonované kyselině chinové, umožnil jeho přiřazení jako 5- FQA [23].
Druhy eluované v 18,58 a 19,60 min a generující deprotonované ionty [MH]- při m/z 515,12 jsou kyseliny kofeoylchinové (di-CQA, C25H24O12, hmotnostní chyba 4,08 ppm). Sdíleli stejný pík báze MS2 při m/z 173,04, což naznačuje substituci v poloze 4. Druhá sloučenina (RT 19,60 min) byla identifikována jako 3,4-diCQA pro přítomnost fragmentového iontu při m/z 335,08 [CQA-H2O-H plus] −, chybí ve spektru MS2 prvního z nich (RT 18,58 min), přiřazeno 4,5-diCQA [23].
Sloučenina s RT 16,74 min a mateřským iontem při m/z 337,09 byla identifikována jako 4-kyselina kumaroylchinová (4-pCoQA, C16H18O8, hmotnostní chyba 6,53 ppm), jak naznačuje základní pík MS2 při m/z 173,04. Ionty při m/z 499,13 a 529,14 eluované v 19,80 a 20,14 min byly přiřazeny 3-kumaroyl-4-kafeoylchinové kyselině (C25H24O11, hmotnostní chyba 4,81 ppm) a {{{30}{30}} }}feruloylchinová kyselina (C26H26O12, hmotnostní chyba 3,78 ppm). Fragmenty při m/z 173,04 (základní pík) a při m/z 353,09 naznačují kofeoylovou skupinu v poloze 4, zatímco fragmenty při m/z 119,05 a 134,04 indikují přítomnost kumaroylové a feruloylové skupiny, v daném pořadí, v poloze 3 [23].
Ionty zobrazené na obrázku 2 a tabulce S1 a zakroužkované oranžově byly přiřazeny k oxidačním produktům derivátů kyseliny kávové, protože sdílely stejné MS2 píky při m/z 177,02 a 133,03. Konkrétně druhy s rodičovským iontem při m/z 513,11 (RT 18,67 min) a 511,09 (RT 18,66 min), vykazující MS2 pík při m/z 351,07, byly identifikovány jako mono (C25H22O12, hmotnostní chyba 5,65 ppm) a di -oxidované formy di-CGA (C25H20O12, hmotnostní chyba 4,70 ppm).
Ionty při m/z 333,06 (RT 14,84 min) a m/z 495,09 (RT 17,36 min), generující fragment MS2 při m/z 93,03, byly přiřazeny jako monooxidované formy laktonu kyseliny caffeoylchinové (nebo kyseliny kafeoyl shikimové , C16H14O8, hmotnostní chyba 6,31 ppm) a lakton kyseliny caffeoylchininové (nebo kyselina caffeoylshikimová, C25H20O11, hmotnostní chyba 4,65 ppm), se kterými koeluují [22].
Kromě toho extrakt obsahuje feruloylglykosidy, na obrázku 2 zakroužkované modře (tabulka S1). Ve spektru MS2 vykazovali fragmenty při m/z 193,05 a 175,04, charakteristické pro feruloylovou skupinu a/nebo při m/z 337,09, v důsledku ztráty hexosylové skupiny a jedné molekuly vody a/nebo při m/z 295,08 , 265,07 a 235,06, odvozené z křížového štěpení zbývajícího cukerného zbytku [24]. Zejména druhy v m/z 517,16 (RT 13,62, 13,93 a 14,29 min) byly feruloyl disacharidy (C22H30O14, hmotnostní chyba 3,87 ppm) a druhy při m/z 355,10 (RT 12,15 min) (RT 12,15 min) (C16H20O9, “ hmotnostní chyba 5,91 ppm). Ionty při m/z 489,16 (RT 14,17 a 14,26 min) a m/z 459,15 (RT 14,33 min) by mohly být ferulové kyseliny kombinované s hexózou a C5 polyalkoholem (C21H30O13, hmotnostní chyba 4,50 ppm alkoholu C20H28O12, hmotnostní chyba 4,79 ppm).
Nakonec byly kvantifikovány identifikované lignany a triterpeny. Metody kvantifikace byly validovány, jak je uvedeno v tabulce 2. Nortrachelogenin a kyselina ursolová jsou nejhojnější lignan a triterpen, v daném pořadí, přítomné v JasHEx (tabulka 3).


3.2. Cytosolická detekce ROS v H2O2-stresovaných HaCaT buňkách
Protože velká většina sekundárních metabolitů identifikovaných v extraktu, jako jsou chlorogenové kyseliny, lignany a triterpeny, má dobře známou antioxidační aktivitu [25–27], byl hodnocen účinek JasHEx na cytosolické ROS. Proto byly HaCaT buňky ošetřeny po dobu 2 hodin extraktem (0.0006 procent , 0,002 procent a 0,006 procent p/v) nebo pozitivní kontrolou kyselinou askorbovou ( 500 uM), inkubováno s indikátorem pro ROS a poté stresováno H202 (450 uM). Po oxidaci poskytuje indikátor fluorescenční adukt. Jak je znázorněno na obrázku 3A, H2O2-indukovaný stres zvýšil tvorbu cytosolických ROS o 50 procent a to bylo sníženo téměř o 30 procent jak v případě předúpravy kyselinou askorbovou, tak JasHEx.

3.3. Detekce AGE v HDF ošetřeném Glyoxalem
Vzhledem k tomu, že tvorba AGE je závislá na oxidačních reakcích, byla hodnocena antiglykační aktivita JasHEx pomocí enzymové imunoanalýzy (ELISA). Umožnil nám pomocí specifické protilátky detekovat produkty AGE v lidských dermálních fibroblastech (HDF), ošetřených či neošetřených extraktem (0.0006 procenta a 0,002 procenta p/v), v přítomnosti 0,5 procenta glyoxalu při 50 °C po dobu jednoho týdne. Aminoguanidin (AG) 1 uM byl použit jako pozitivní kontrola. Ošetření 0,5 procenta glyoxalu stimulovalo tvorbu produktů AGE o 90 procent, zatímco inkubace s JasHEx v obou koncentracích ji dokázala snížit o 20 procent (obrázek 3B).
3.4. Detekce fibrilinu{2}} v explantátech kůže vystavených stresu methylglyoxalem
Na základě těchto výsledků, pro potvrzení antiglykačního účinku ve fyziologickém kontextu, byl efekt JasHEx testován na explantátech kůže zatížených methylglyoxalem. Protože fibrillin-1, protein ECM nezbytný pro dermální elastickou síť, je vysoce citlivý na glykaci, rozhodli jsme se jej použít jako biomarker. Nárůst glykace fibrillin-1 indukovaný methylglyoxalem totiž významně mění jeho konformační strukturu a modifikovaný protein již není rozpoznáván použitou protilátkou [28]. Proto byly kožní explantáty ošetřeny přípravkem JasHEx (0.002 procenta a 0,006 procenta p/v) před a po přidání 500 µM methylglyoxalu a obsahu fibrilinu{{9} } byla detekována imuno-histo-fluorescenčním testem. Aminoguanidin (AG) 1 mM byl použit jako pozitivní kontrola. Jak je znázorněno na obrázcích 3C a D, přidání 500 uM methylglyoxalu snížilo hladiny fibrilinu-1 o 30 procent. Inkubace s extraktem dokázala ochránit fibrillin-1 před glykací vyvolanou methylglyoxalem. Konkrétně léčba pomocí JasHEx v koncentraci 0,002 procenta p/v zvýšila obsah fibrilinu-1 o 35 procent, podobně jako u pozitivní kontroly.
3.5. Analýza syntézy kolagenu typu I
Pro měření účinku JasHEx na syntézu kolagenu typu I byl kromě jeho ochranného účinku před glykací použit jako indikátor C-peptid prokolagenu typu I (PIP). Kolagen typu I je skutečně syntetizován jako prokolagen, který obsahuje peptidové sekvence (propeptidy) na amino-terminálním i karboxy-terminálním konci, což je nezbytné pro navinutí prokolagenu do trojité šroubovice. Tyto propeptidy jsou během sekrece štěpeny a kolageny trojité šroubovice polymerují na extracelulární fibrily [29]. Proto množství uvolněného PIP stechiometricky odráží množství syntetizovaného kolagenu. HDF byl tedy léčen po dobu 24 hodin pomocí JasHEx (0.{7}}006 procent , 0,002 procent a 0,006 procent p/v) nebo TGF- (2,5 ng/ml) , použitý jako pozitivní kontrola a zpracován pro test AlphaLISA pro měření hladin PIP. Jak je znázorněno na obrázku 3E, inkubace se všemi koncentracemi extraktu významně zvýšila obsah PIP.
3.6. Analýza dráhy Nrf2/ARE v buňkách HaCaT
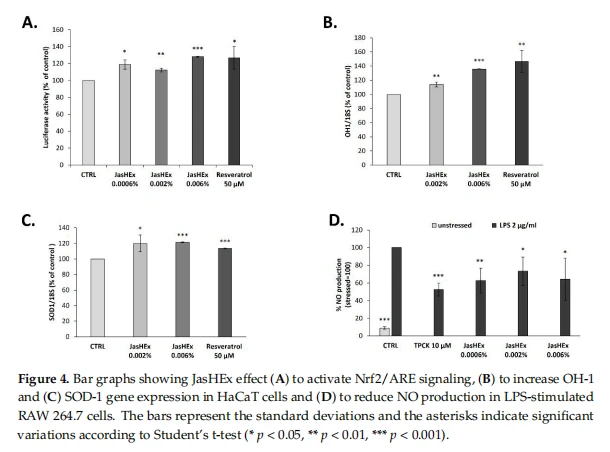
Vzhledem k antioxidační a antiglykační aktivitě JasHEx byl zkoumán účinek extraktu na dráhu Nrf2/ARE (nuclear-related factor 2/antioxidant response element), protože jde o dosud nejzásadnější endogenní antioxidační systém [3{ {7}}]. Proto test aktivace transkripce na bázi luciferázy Nrf2 na buňkách HaCaT, inkubovaných po dobu 2 hodin s extraktem (0.0006 procent , 0,002 procent a 0,006 procent p/v ) po transdukci. Ošetření 0,006 procenty p/v JasHEx zvýšilo aktivitu luciferázy spojenou s Nrf2 o 28 procent (obrázek 4A), podobně jako 50 uM resveratrol, použitý jako pozitivní kontrola.
3.7. Analýza genové exprese OH-1 a SOD-1 v buňkách HaCaT
Byl také testován účinek JasHEx v HaCaT buňkách na expresi genových cílů Nrf2, jako je superoxiddismutáza 1 (SOD-1) a hemoxygenáza-1 (HO-1). Za tímto účelem byly buňky HaCaT ošetřeny pomocí JasHEx (0.002 procent a 0,006 procent p/v) po dobu 6 hodin a poté byly vyjádřeny SOD-1 a OH-1 byl analyzován pomocí RT-PCR. Výsledky uvedené na obrázku 4B, C prokázaly, že extrakt zvýšil expresi obou genů, jako pozitivní kontrola resveratrol (50 uM).
3.8. Stanovení NO v buňkách RAW 264.7 stimulovaných LPS
Vzhledem k tomu, že Nrf2 také hraje roli při potlačování zánětlivé reakce řízené NF-KB a protože indukovatelná syntáza oxidu dusnatého (iNOS) je aktivována prostřednictvím dráhy NF-KB [31,32], byla protizánětlivá aktivita JasHEx hodnocena pomocí testu oxidu dusnatého . Buňky RAW 264.7 byly ošetřeny extraktem (0.0006 procent , 0,002 procent a 0,006 procent p/v) nebo pozitivní kontrolou TPCK (10 µM) a poté , byli stresováni LPS (2 ug/ml). Množství NO bylo odhaleno přidáním Griessova činidla a absorbance byla měřena při 540 nm. Jak je znázorněno na obrázku 4D, JasHEx snížil hladiny NO přibližně o 30 procent ve všech testovaných koncentracích.
4. Diskuze
Zde byl studován hydroethanolový extrakt získaný z buněčných kultur Jasminum sambac (JasHEx). Jeho chemická charakterizace založená na hmotnostní spektrometrii pomocí GNPS odhalila přítomnost derivátů kyseliny fenolové (hlavně kyseliny chlorogenové), lignanů (sekoisolariciresinol, nortrachelogenin a matairesinol) a triterpenů (kyselina arjunolová, kyselina asparagová, kyselina maslinová, kyselina oleanolová a ursolová kyselina). Všechny tyto sekundární metabolity mají dobře známé antioxidační vlastnosti. Kyseliny chlorogenové [25] a lignany [26,33,34] mají díky své fenolické části skutečně antioxidační aktivitu pohlcující volné radikály a přerušující řetězec: darují atomy vodíku volným radikálům, čímž vznikají fenoxylové radikály stabilizované rezonancí. a tím inhibuje šíření radikálových řetězových reakcí a dalších biologických oxidantů. Navíc působí jako sekundární antioxidanty tím, že vážou kovové ionty (Fe(III) a Cu(II)) schopné katalyzovat oxidační procesy. Kromě toho se díky přesné kvantitativní analýze ukázalo, že JasHEx obsahuje relevantní množství kyseliny arjunolové, kyseliny asparagové, kyseliny maslinové, kyseliny oleanolové a kyseliny ursolové: všechny tyto triterpeny mohou také působit jako dobré lapače volných radikálů, antioxidanty narušující řetězce nebo přechodné látky. chelátory kovů [35–39].
Na základě těchto výsledků byla vyhodnocena antioxidační aktivita JasHEx. Byl schopen snížit produkci cytosolických ROS v keratinocytech stresovaných H2O2-. Dále, protože krok konverze Amadori produktů na AGE je závislý na oxidačních reakcích [9], byl testován antiglykační potenciál extraktu. Bylo potvrzeno jak in vitro, tak ex vivo testy: JasHEx snížil tvorbu AGE v glyoxalem ošetřených HDF a methylglyoxalem stresovaných kožních explantátech, což je již používaný model ke zdůraznění antiglykační aktivity přírodních látek [28].
Kromě toho JasHEx také prokázal posilující účinek extracelulární matrix zvyšující produkci kolagenu typu I, který je vysoce citlivý na glykaci [10–12] a jehož hladiny jsou významně sníženy oxidačním stresem [4].
Testy in vitro prokázaly, že antioxidační vlastnosti JasHEx, jako jsou vlastnosti chlorogenových kyselin [40] a triterpenoidů [27], nesouvisejí pouze s vychytáváním volných radikálů a chelatačními aktivitami kovů, ale také se zlepšením dráhy Nrf2/ARE. . Toto je dosud nejdůležitější endogenní antioxidační systém: když jsou buňky vystaveny stresovým podmínkám, Nrf2 se disociuje od svého cytoplazmatického represoru kelch-like ECH-asociovaného proteinu 1 (Keap1) a translokuje se do jádra, kde interaguje s ARE, čímž aktivuje transkripci jeho cílové geny; exprese těchto genů účastnících se detoxikace, regenerace NADH, antioxidačního systému na bázi glutathionu (GSH) a thioredoxinu (TXN), metabolismu lipidů, emu a železa zvyšuje odolnost buněk vůči oxidativnímu stresu [41,42].
Kromě toho extrakt také vykazoval protizánětlivou aktivitu, snižoval uvolňování NO v makrofázích stimulovaných LPS. Tento efekt také souvisí se spuštěním dráhy Nrf2/ARE: Nrf2 upreguluje expresi HO-1, která vytváří více redukční prostředí a inhibuje aktivaci prozánětlivého transkripčního faktoru NF-κB [31 ].
5. Závěry
Na základě chemického složení a biologické aktivity prokázané in vitro a ex vivo experimenty lze JasHEx považovat za přírodní silný antioxidační booster proti stárnutí pleti vyvolanému oxidačním stresem.
Příspěvky autora: SC a MCM provedly chemické analytické experimenty a napsaly článek, SC, ADL, AT (Annalisa Tito) a MCM vymyslely a navrhly experimenty, SC, ADL a AT (Assunta Tortora) provedly molekulární a biochemické experimenty, ADL provedl ex vivo experimenty, GC nastavil a pěstoval kultury rostlinných buněk, AC navrhl a provedl extrakční postup. Všichni autoři si přečetli publikovanou verzi rukopisu a souhlasí s ním.

Financování: SC a MCM získaly finanční podporu od společnosti INVITALIA-Italy v rámci grantu CDS 000463. AT (Annalisa Tito) a ADL získaly finanční prostředky z programu Evropské unie pro výzkum a inovace Horizont 2020 (projekt InnCoCells, grantová smlouva č. 101000373).
Prohlášení Institutional Review Board: U této studie bylo upuštěno od etického přezkoumání a schválení kvůli experimentu zahrnujícímu pouze testování kosmetických produktů.
Reference
1. Bae, YS; Oh, H.; Rhee, SG; Yoo, YD Regulace tvorby druhů reaktivního kyslíku v buněčné signalizaci. Mol. Buňky 2011, 32, 491–509. [CrossRef]
2. Hasanuzzaman, M.; Bhuyan, MHMB; Zulfiqar, F.; Raza, A.; Mohsin, SM; Mahmud, JA; Fujita, M.; Fotopoulos, V. Druhy reaktivního kyslíku a antioxidační obrana v rostlinách pod abiotickým stresem: Přehodnocení zásadní role univerzálního obranného regulátora. Antioxidanty 2020, 9, 681. [CrossRef]
3. Rinnerthaler, M.; Bischof, J.; Streubel, MK; Trost, A.; Richter, K. Oxidační stres ve stárnoucí lidské kůži. Biomolekuly 2015, 5, 545–589. [CrossRef]
4. Sárdy, M. Role matricových metaloproteináz při stárnutí kůže. Connect Tissue Res. 2009, 50, 132–138. [CrossRef]
5. Masaki, H. Role of Antioxidants in the Skin: Anti-Aging Effects. J. Dermatol. Sci. 2010, 58, 85–90. [CrossRef]
6. Perrone, A.; Giovino, A.; Benny, J.; Martinelli, F. Advanced Glycation End Products (AGEs): Biochemie, signalizace, analytické metody a epigenetické účinky. Oxid. Med. Buňka. Longev. 2020, 2020, 3818196. [CrossRef] [PubMed]
7. Singh, viceprezident; Bali, A.; Singh, N.; Jaggi, AS Pokročilé konečné produkty glykace a diabetické komplikace. Korejský J. Physiol. Pharmacol. 2014, 18, 1–14. [CrossRef] [PubMed]
8. Čepas, V.; Collino, M.; Mayo, JC; Sainz, RM Redoxní signalizace a koncové produkty pokročilé glykace (AGE) u nemocí souvisejících se stravou. Antioxidanty 2020, 9, E142. [CrossRef] [PubMed]
9. Twarda-Clapa, A.; Olczak, A.; Białkowska, AM; Koziołkiewicz, M. Konečné produkty pokročilé glykace (AGEs): tvorba, chemie, klasifikace, receptory a nemoci související s AGEs. Buňky 2022, 11, 1312. [CrossRef]
10. Barvíř, DG; Dunn, JA; Thorpe, SR; Bailie, KE; Lyons, TJ; McCance, DR; Baynes, JW Akumulace produktů Maillardovy reakce v kožním kolagenu při cukrovce a stárnutí. J. Clin. Vyšetřování. 1993, 91, 2463–2469. [CrossRef] [PubMed]
11. Verzijl, N.; DeGroot, J.; Oldehinkel, E.; Banka, RA; Thorpe, SR; Baynes, JW; Bayliss, MT; Bijlsma, JW; Lafeber, FP; Tekoppele, JM Věkem související akumulace produktů Maillardovy reakce v kolagenu lidské artikulární chrupavky. Biochem. J. 2000, 350 Pt 2, 381–387. [CrossRef] [PubMed]
12. Reiser, KM Neenzymatická glykace kolagenu při stárnutí a diabetu. Proč. Soc. Exp. Biol. Med. 1998, 218, 23–37. [CrossRef] [PubMed]
13. Toppo, A. Recenze na Jasminum Sambac: Potenciální léčivá rostlina. Int. J. Ind. Herbs. Drogy 2017, 2, 13–16.
14. Barbulová, A.; Apone, F.; Colucci, G. Rostlinné buněčné kultury jako zdroj kosmetických aktivních složek. Kosmetika 2014, 1, 94–104. [CrossRef] 15. Ochoa-Villarreal, M.; Howat, S.; Jang, MO; Kim, IS; Jin, Y.-W.; Lee, E.-K.; Loake, GJ Cambial Meristematic Cells: Platform for Production of Plant Natural Products. Nová biotechnologie. 2015, 32, 581–587. [CrossRef] [PubMed]
16. Murashige, T.; Skoog, F. Revidované médium pro rychlý růst a biologické testy s kulturami tabákových tkání. Physiol. Plantarum. 1962, 15, 473–497. [CrossRef]
17. Ceccacci, S.; De Lucia, A.; Tito, A.; Tortora, A.; Falanga, D.; Arciello, S.; Ausanio, G.; Di Cicco, C.; Monti, MC; Apone, F. Výtažek z buněčných kultur z Oenothera Biennis vybavený aktivitou proti stárnutí pokožky zlepšuje mechanické vlastnosti buněk. Metabolites 2021, 11, 527. [CrossRef]
18. Wang, M.; Carver, JJ; Phelan, VV; Sanchez, LM; Garg, N.; Peng, Y.; Nguyen, DD; Watrous, J.; Kapono, CA; Luzzatto-Knaan, T.; a kol. Sdílení a komunitní správa dat hmotnostní spektrometrie s GNPS. Nat. Biotechnol. 2016, 34, 828–837. [CrossRef]
19. Pluskal, T.; Castillo, S.; Villar-Briones, A.; Orešiˇc, M. MZmine 2: Modulární rámec pro zpracování, vizualizaci a analýzu dat molekulárního profilu na bázi hmotnostní spektrometrie. BMC Bioinform. 2010, 11, 395. [CrossRef]
20. Nothias, L.-F.; Petras, D.; Schmid, R.; Dührkop, K.; Rainer, J.; Sarvepalli, A.; Protsyuk, I.; Ernst, M.; Tsugawa, H.; Fleischauer, M.; a kol. Molekulární sítě založené na funkcích v prostředí analýzy GNPS. Nat. Metody 2020, 17, 905–908. [CrossRef]
21. Shannon, P.; Markiel, A.; Ozier, O.; Baliga, NS; Wang, JT; Ramage, D.; Amin, N.; Schwikowski, B.; Ideker, T. Cytoscape: Softwarové prostředí pro integrované modely sítí biomolekulární interakce. Genome Res. 2003, 13, 2498–2504. [CrossRef] [PubMed]
22. Peng, J.; Xie, J.; Shi, S.; Luo, L.; Li, K.; Xiong, P.; Cai, W. Diagnostický fragment na bázi iontů pro rychlou identifikaci derivátů chlorogenových kyselin v Inula Cappa pomocí hmotnostní spektrometrie UHPLC-Q-Exactive Orbitrap. J. Anal. Methods Chem. 2021, 2021, 6393246. [CrossRef] [PubMed]
23. Clifford, MN; Johnston, KL; Rytíř, S.; Kuhnert, N. Hierarchické schéma pro LC-MSn identifikaci chlorogenových kyselin. J. Agric. Food Chem. 2003, 51, 2900–2911. [CrossRef] [PubMed]
24. Quéméner, B.; Ralet, M.-C. Důkaz pro stanovení polohy vazby u známých feruloylovaných mono- a disacharidů pomocí elektrosprejové hmotnostní spektrometrie s iontovou pastí. J. Hmotnostní spektrum. 2004, 39, 1153–1160. [CrossRef]
25. Xu, J.-G.; Hu, Q.-P.; Liu, Y. Antioxidační a DNA-ochranné aktivity izomerů kyseliny chlorogenové. J. Agric. Food Chem. 2012, 60, 11625–11630. [CrossRef]
26. Touré, A.; Xueming, X. Lignany z lněného semínka: zdroj, biosyntéza, metabolismus, antioxidační aktivita, bioaktivní složky a přínosy pro zdraví. Kompr. Rev. Food Sci. Jídlo Saf. 2010, 9, 261–269. [CrossRef]
27. Agnieszka Loboda, ER-G.; Dulak, J. Targeting Nrf2-zprostředkovaná genová transkripce triterpenoidy a jejich deriváty. Biomol. Ther. 2012, 20, 499–505. [CrossRef]
28. Gasser, P.; Arnold, F.; Peno-Mazzarino, L.; Bouzoud, D.; Luu, MT; Lati, E.; Mercier, M. Glykační indukce a antiglykační aktivita složek péče o pokožku na živých explantátech lidské kůže. Int. J. Cosmet. Sci. 2011, 33, 366–370. [CrossRef] [PubMed]
29. Prockop, DJ Mutace v genech pro kolagen. Důsledky pro vzácná a běžná onemocnění. J. Clin. Vyšetřování. 1985, 75, 783-787. [CrossRef]
30. Huang, K.; Huang, J.; Xie, X.; Wang, S.; Chen, C.; Shen, X.; Liu, P.; Huang, H. Sirt1 odolává expresím fibronektinu a TGF-B1 indukovaným pokročilými koncovými produkty glykace aktivací dráhy Nrf2/ARE v glomerulárních mesangiálních buňkách. Volný Radic. Biol. Med. 2013, 65, 528–540. [CrossRef]
31. Tu, W.; Wang, H.; Li, S.; Liu, Q.; Sha, H. Protizánětlivé a antioxidační mechanismy signální dráhy Keap1/Nrf2/ARE u chronických onemocnění. Aging Dis. 2019, 10, 637–651. [CrossRef]
32. Arias-Salvatierra, D.; Silbergeld, EK; Acosta-Saavedra, LC; Calderon-Aranda, ES Role oxidu dusnatého produkovaného INOS cestou NF-KB při migraci neuronů cerebelárních granulí indukovaných lipopolysacharidem. Buňka. Signál. 2011, 23, 425–435. [CrossRef]
33. Dong, H.; Zheng, L.; Yu, P.; Jiang, Q.; Wu, Y.; Huang, C.; Yin, B. Charakterizace a aplikace lignin-sacharidových komplexů z lignocelulózových materiálů jako antioxidantů pro vychytávání in vitro a in vivo reaktivních druhů kyslíku. ACS Sustain. Chem. Ing. 2020, 8, 256–266. [CrossRef]
34. Pei, W.; Deng, J.; Wang, P.; Wang, X.; Zheng, L.; Zhang, Y.; Huang, C. Udržitelný lignin a sloučeniny odvozené od ligninu jako potenciální terapeutická činidla pro degenerativní ortopedická onemocnění: Systémový přehled. Int. J. Biol. Macromol. 2022, 212, 547–560. [CrossRef]
35. Hemalatha, T.; Pulavendran, S.; Balachandran, C.; Manohar, BM; Puvanakrishnan, R. Arjunolic Acid: A Novel Phytomedicine with Multifunctional Therapeutic Applications. Indian J. Exp. Biol. 2010, 48, 238–247. [PubMed]
36. Nagoor Meeran, MF; Goyal, SN; Suchal, K.; Sharma, C.; Patil, ČR; Ojha, SK Farmakologické vlastnosti, molekulární mechanismy a farmaceutický vývoj kyseliny asijské: Pentacyklický triterpenoid terapeutického slibu. Přední. Pharmacol. 2018, 9, 892. [CrossRef]
37. Lozano-Mena, G.; Sánchez-González, M.; Juan, ME; Planas, JM Maslinic Acid, přírodní triterpen typu fytoalexinu z oliv – slibné nutraceutikum? Molekuly 2014, 19, 11538–11559. [CrossRef] [PubMed]
38. Santiago, L.; Dayrit, K.; Correa, P.; Mayor, AB Srovnání antioxidační a volné radikálové aktivity triterpenů - amyrinu, oleanolové kyseliny a ursolové kyseliny. J. Nat. Prod. 2014, 7, 29–36.
39. Samsonowicz, M.; Kalinowska, M.; Gryko, K. Zvýšená antioxidační aktivita kyseliny ursolové komplexací s mědí (II): Experimentální a teoretická studie. Materiály 2021, 14, E264. [CrossRef] [PubMed]
40. Wang, L.; Pan, X.; Jiang, L.; Chu, Y.; Gao, S.; Jiang, X.; Zhang, Y.; Chen, Y.; Luo, S.; Peng, C. Mechanismus biologické aktivity kyseliny chlorogenové a její aplikace v potravinářském průmyslu: Přehled. Přední. Nutr. 2022, 9. [CrossRef]
41. Tonelli, C.; Chio, IIC; Tuveson, DA Transkripční regulace od Nrf2. Antioxid. Redoxní signál. 2018, 29, 1727–1745. [CrossRef] [PubMed]
42. Hayes, JD; Dinkova-Kostova, AT Regulační síť Nrf2 poskytuje rozhraní mezi redoxním a intermediárním metabolismem. Trends Biochem. Sci. 2014, 39, 199–218. [CrossRef] [PubMed]
【Další informace:george.deng@wecistanche.com / WhatApp:{0}}】