

Regenerativní medicína pro onemocnění ledvin založená na technologii IPSC
Feb 23, 2022
AbstraktníS několika léčebnými procedurami proonemocnění ledvinRegenerativní medicíně jako nové terapeutické možnosti je věnována stále větší pozornost. Nedávný pokrok vledvinaza zmínku stojí regenerace pomocí pluripotentních kmenových buněk (hiPSC) indukovaných člověkem. Na základě znalostíledvinavývoj, řízená diferenciace hiPSC na dvě embryonálníledvinaprogenitorů, nefronových progenitorových buněk (NPC) a ureterických pupenů (UB), umožňujících generování nefronů a organoidů sběrných kanálků. Navíc člověkledvinatkáně mohou být generovány z těchto progenitorů odvozených od hiPSC, ve kterých jsou glomeruly odvozené od NPC aledvinovétubuly a sběrné kanály odvozené od UB jsou vzájemně propojeny. Vyvolanéledvinatkáně jsou dále vaskularizovány, když jsou transplantovány do imunodeficitních myší. Navíc kledvinarekonstrukci pro použití při transplantaci, bylo prokázáno, že buněčná terapie pomocí hiPSC odvozených NPC zlepšuje akutníporanění ledvin(AKI) u myší. Modelování nemocí a výzkum objevování léků pomocí hiPSC specifických pro nemoc byl také energicky prováděn pro neřešitelnéledvinaporuchy, jako je autozomálně dominantní polycystickánemoc ledvin(ADPKD). Ve snaze řešit komplikace spojené sonemocnění ledvinBuňky produkující erytropoetin (EPO) odvozené od hiPSC byly úspěšně vytvořeny za účelem objevení léků a vývoje buněčné terapie proledvinovéanémie. Tento přehled shrnuje současný stav a budoucí perspektivy vývojové biologieledvinaa regenerativní medicína založená na technologii iPSC proonemocnění ledvin.
klíčová slova:iPSC; Regenerace ledvin; progenitorová buňka nefronu; Ureterický pupen; Buněčná terapie; Modelování nemocí, ledvin, ledvin.

Úvod Onemocnění ledvinzpůsobují celosvětově obrovské zdravotní problémy a ekonomickou zátěž, ale existuje jen málo léčebných způsobů léčbyledvinovétransplantaci, kterou brzdí vážný nedostatek dárcovských orgánů [1]. Jedním z řešení je vývoj strategie regenerativní medicíny využívající lidské pluripotentní kmenové buňky (hPSC), jako jsou embryonální kmenové buňky (hESC) a indukované pluripotentní kmenové buňky (hiPSC) [2]. Kvůli jejich potenciálu nekonečně se množit a diferencovat na jakýkoli typ buněk v těle včetněledvinovéPředpokládá se, že hPSC budou sloužit jako buněčný zdroj pro regenerativní medicínu, jako je napřledvinarekonstrukce a buněčná terapie. Kromě toho mohou být hPSC specifické pro onemocnění, které mají genetickou predispozici způsobit toto onemocnění, použity k vývoji modelů pro patologickou analýzu a objev léků, ve kterých typy poškozených buněk diferencované od hPSC reprodukují fenotypy onemocnění in vitro [2]. V tomto článku shrnuji nedávné pokroky vledvinavýzkum regenerace založený na vývojové biologii a popis budoucích perspektiv regenerativní medicíny a modelování nemocíonemocnění ledvin.
Vývoj ledvint ledvinypochází z rané embryonální zárodečné vrstvy, intermediárního mezodermu (IM) [3] (obr. 1a). U obratlovců z IM postupně vznikají třiledviny,pronefros, mesonefros a metanefros (obr. 1b). Mesonephros je dospělýledvinafsh a obojživelníků, zatímco metanefros je dospělýledvinaplazů, ptáků a savců. Zatímco tyto třiledvinyjsou podobné v tom, že se skládají z nefronů, funkčních jednotekledvina, jejich počet nefronů se liší. Dospělý savecledvinametanefros

Obr. 1 Řízená diferenciaceledvinalinie buněk. ac Schematické výkresy ukazující specifikaci mezodermu (a), vznik tříledvinyb) a vývoj metanephros (c). IM: střední mezoderm; MM: metanefrický mezenchym; UB: ureterický pupen. d Imunobarvení nefronových progenitorových buněk (NPC) odvozených z hiPSC pro OSR1, SIX2 a HOXD11. e Imunobarvení nefronového organoidu vytvořeného z NPC odvozených od hiPSC po 10 dnech kultivace mezi vzduchem a kapalinou. PODXL: Podokalyxin (marker podocytů; bílý); LTL: Lotus tetragonolobus lektin (marker proximálního tubulu; červený); CDH1: CADHERIN 1 (značka distálního tubulu; zelená). f, g Imunobarvení předních IM buněk na OSR1 (zelená) a GATA3 (červená; f) a buněčný agregát nefrického vývodu na E-CADHERIN (zelená), GATA3 (červená) a jádra (modrá; g). h Morfologická změna při rekonstrukci větvených organoidů iUB po dobu 7 dnů. i Imunobarvení organoidu iUB pro RET (zelená), CK8 (červená) a PAX2 (modrá). j Barvení organoidu iUB toluidinovou modří ukazující tubulární lumen. k Bright-feld (vlevo) a snímky imunobarvení (uprostřed a vpravo) odběrových trubicovitých struktur podobných duktu odvozených z organoidu iUB pro FOXA1 (bílá), AQP2 (červená) a GATA3 (zelená). Měřítko, 100 μm. (d) a (e) jsou upraveny z Tsujimoto et al. [12], (f) a (g)–(k) jsou převzaty z Mae et al. [14, 15] je tvořena reciproční interakcí mezi dvěma embryonálními tkáněmi odvozenými od IM, metanefrickým mezenchymem (MM) a ureterickým pupenem (UB; obr. 1c). MM vede ke vzniku nefronů a intersticia dospělýchledvinyUB, zatímco UB diferencuje tak, aby rozvinula dolní močové cesty od sběrných kanálků k části močového měchýře [3]. Vytvořením nového klonogenního testu jsme poprvé prokázali, že MM obsahuje multipotentní progenitorové buňky, které se mohou diferencovat na více typů epiteliálních buněk tvořících nefrony, jako jsou glomerulární podocyty aledvinovétubulární epitel [4]. Později experimenty se sledováním linie odhalily, že tyto progenitory jsou označeny transkripčním faktorem Six2 [5]. Tyto progenitory se nyní nazývají nefronové progenitorové buňky (NPC). Taguchi a kol. prokázali, že IM se dělí na přední a zadní doménu, z nichž vzniká UB a MM [6]. Na základě těchto zjištěníledvinarozvoje, bylo vynaloženo energické úsilí k regeneraciledvinalinie buněk z hPSC.
Řízená diferenciace hPSC do linií ledvin Jako první krok k přímému rozlišení hiPSC naledvinalinie napodobovánímledvinavývoj se naše skupina zaměřila na generaci IM buněk a genovou editací vytvořila reportérové hiPSC linie pro gen OSR1, specifický marker pro IM [7]. Pomocí systému kvantitativního hodnocení a reportérových linií hiPSC jsme vyvinuli vysoce účinný diferenciační protokol, který indukuje hiPSC do buněk IM exprimujících OSR1-. Tyto indukované IM buňky ukázaly vývojový potenciál k další diferenciaci na dospělé typy ledvinových buněk, jako jsou glomerulární podocyty aledvinovétubulárních buněk, in vitro a k vytvoření trojrozměrných (3D) tubulárních struktur kokultivací s myšími metanefrickými buňkami [8, 9].
Taguchi a kol. poprvé vyvinul selektivní diferenciační metody k indukci NPC prostřednictvím posteriorní IM z myších ESC (mESC) a hiPSC a také generoval nefronové organoidy, které obsahovaly glomeruly aledvinovétubulů in vitro z indukovaných NPC [6]. Takasato a kol. ohlásila generaciledvinaorganoidy, které obsahovaly víceledvinovétypy buněk, jako jsou glomeruly,ledvinovétubulů, sběrných kanálků, stromálních buněk a vaskulárních buněk [10]. Vývojem 2D kultivačního systému Morizane et al. účinně generovaly NPC z hiPSC a poté nefronové organoidy z NPC [11]. Nedávno naše skupina vyvinula metodu postupné diferenciace pro účinnou indukci hiPSC na NPC s diferenciačním potenciálem k vytvoření nefronových organoidů [12] (obr. 1d, e). Naše metoda diferenciace, která se skládá ze 6 kroků, přesněji rekapituluje přirozený vývojový proces NPC než metody popsané Takasato et al. a Morizane a kol. [10, 11] a efektivněji generuje NPC ve formátu 2D diferenciace než metoda Taguchi et al. která využívá 3D kulturu [6].
Pokud jde o přímou diferenciaci linií UB, Taguchi a Nishinakamura diferencovali mESC a hiPSC přes přední IM a nefrický vývod (ND) do struktur podobných UB [13]. Nicméně účinnost indukce ND epitelu byla nízká a pro následné analýzy je vyžadována purifikace ND buněk fow cytometrií. Vyvinuli jsme účinnější 2D diferenciační metodu, která produkuje ND epitel z hiPSC přes přední IM a zahrnuje následné diferenciační kroky bez purifikace [14] (obr. 1f, g). Indukované ND buňky vytvořily ve 3D kultuře struktury podobné UB s RET (plus) špičkou a CK8(plus) kmenovými doménami. Struktury podobné UB generované oběma skupinami však vykazovaly omezený potenciál větvení. V poslední době jsme modifikací naší UB diferenciační metody úspěšně vytvořili indukované UB (iUB) organoidy, které mají epiteliální polaritu, tubulární lumen a morfogenezi s opakovaným větvením [15] (obr. 1h–j). Navíc se nám podařilo přimět tyto organoidy iUB k diferenciaci na organoidy sběrných kanálků odpovídající jejich protějškům in vivo v lidských embryích v 7. týdnu gestace (obr. 1k).
Expanze progenitorů ledvinDodat obrovské množstvíledvinovébuňky pro základní a klinický výzkum, in vitro expanzní kultivační metody pro embryonálníledvinaprogenitory byly vyšetřeny. Brown a kol. a Tanigawa a kol. popsali in vitro expanzi NPC odstraněných z myších embryí [16, 17]. Li a kol. expandovali a udržovali NPC odvozené z myších i lidských embryí in vitro po dlouhou dobu pomocí 3D buněčné agregační kultury po dobu 17, respektive 7 měsíců [18]. Skupina také rozšířila NPC diferencované od hiPSC in vitro po dobu 2 měsíců za použití stejných metod. Ačkoli všechny tyto tři metody využívají kostní morfogenetický protein (BMP) 7, role BMP7 v expanzi NPC zůstává neznámá. Screeningem chemických sloučenin jsme identifikovali inhibitor JAK3, TCS21311, jako náhradu za BMP7 v expanzní kultuře vyvinuté Li et al. [18] a odhalili novou inhibiční roli BMP7 v signalizaci JAK3-STAT3 pro expanzi NPC [19]. Navíc přidání TCS21311 do expanzní kultury zlepšilo rychlost proliferace NPC odvozených od myšího embrya i hiPSC. Nedávno jsme vyvinuli expanzní kulturu pro UB buňky odvozené od hiPSC, ve kterých disociované jednotlivé buňky z organoidů iUB proliferují za vzniku kolonií exprimujících UB tip markery [15]. Tyto kolonie špičky mohou rekonstituovat organoidy iUB s potenciálem opakovaného větvení a tento proces rekonstituce lze opakovat alespoň třikrát.

Obr. 2 Rekonstrukceledvinastruktur. a Schéma znázorňující vytváření struktur pronephros ze zvířecího uzávěru embryí Xenopus. b–d Celá montáž (b) a snímky s dvojitým imunobarvením řezů (c, d) explantátu Xenopus ekvivalentního ve stadiu 42 (b, c) a larev ve stadiu 40 (d) s použitím protilátky specifické pro pronefrický tubul (3G8, červená) a protilátku specifickou pro pronefrický kanál (4A6, modrá). e Schéma ukazující rekonstrukci in vitroledvinastruktur z hiPSC. f Trojité imunobarvení dne 20ledvinaorganoidy pro markery podocytů (PODXL), proximálních tubulů (LTL) a distálních tubulů a sběrných kanálků (CDH1; vlevo) a pro PODXL a markery pouze distálních tubulů a sběrných kanálků (AVPR2) a pouze sběrných kanálků (CALB1; vpravo) . Všimněte si, že slabé signály CDH1 byly také nalezeny v částech LTL plus proximálních tubulů v levém panelu. g Schéma ukazující rekonstrukci in vivoledvinastruktur z hiPSC. h Obrázek s menším zvětšením zobrazující celý hostitelledvinaa odvozené od hiPSCledvinaštěp (zelený) po podání dextranu konjugovaného s rhodaminem B přes ocasní žílu hostitelské myši. i Intravitální multifotonový mikroskopický snímek po injekci dextranu konjugovaného s rhodaminem B do ocasní žíly ukazující, jak lumen cév hostitelských myší proniká do struktury podobné glomerulu odvozené od hiPSC (zelená). Měřítko, 100 μm v (b)– (d) a (f), 500 μm v (h) a 40 μm v (i). (b)–(d) a (e)–(i) jsou upraveny podle Osafune et al. [22] a Tsujimoto et al. [12], respektive [22]
Rekonstrukce ledvin Dřívější práce na rekonstrukciledvinastruktury využívaly předpokládanou oblast ektodermu oplozených vajíček obojživelníků, nazývanou zvířecí čepice, což je multipotentní buněčná hmota (obr. 2a). Moriya a kol. uvedli, že kombinační léčba aktivinem A a kyselinou retinovou (RA) vyvolala diferenciaci zvířecího uzávěru na pronefrické tubuly in vitro [20]. Brennanová a kol. ukázaly, že pronefrický glomus byl také indukován v explantátech [21]. Prokázali jsme, že indukované explantáty obsahovaly pronefrické vývody a že pronefrické tkáně lze regenerovat z multipotentních buněk obojživelníků in vitro [22] (obr. 2b–d). Ačkoli in vitro regenerační systém pro pronefrickéledvinynelze přímo převést na klinický výzkum, může sloužit jako jednoduchý a užitečný systém pro studiumledvinarozvoj.Kromě generování nefronových organoidů z NPC odvozených od mESC a hPSC a sběru organoidů z kanálků z UB buněk odvozených od hPSC, jak je popsáno výše, Taguchi et al. generovaná myšledvinaorganoidy kombinací NPC a UB odvozených od mESC a intersticiálních progenitorů odstraněných z myších embryí, která obsahují glomeruly,ledvinovétubuly a sběrné kanály [13]. Vytvořili jsme člověkaledvinaorganoidy in vitro kokultivací NPC a UB buněk, které byly odděleně indukovány z hiPSC a ve kterých glomeruly odvozené od NPC aledvinovétubuly a UBodvozené sběrné kanály jsou propojeny [12] (obr. 2e, f). Při transplantaci doledvinovésubkapsulární prostor imunodeficitních myší, tyto odvozené od hiPSCledvinaorganoidy integrované do krevních cév hostitelských myší (obr. 2g–i).
Pokud jde o regeneraciledvinaorgány, které mají močové cesty, byly zkoumány metody využívající těla experimentálních zvířat, jako je mezidruhová komplementace blastocyst [23] a metoda organogenní niky [24]. Goto a kol. injikoval mESC divokého typu do blastocyst anefrických potkanů Sall1(−/−) a podařilo se jim interspecificky generovat myšiledvinyu hostitelské krysy [23]. Fujimoto a kol. vyvinuli metodu buněčné transplantace, jejímž prostřednictvím byly do hiPSC odvozené NPC transplantoványledvinavývojová oblast (tj. organogenní nika) myších embryí v děloze, ve které transplantované a hostitelské NPC společně přispěly k mezenchymu chimérické čepičky, který byl spojen s hostitelskou myší UB [24]. Nicméně, zatímco MM odvozené glomeruly arena1 tubulu byly odvozeny z injikovaných PSC nebo NPC, zbývající typy buněk tvořících ledvinu, jako jsou sběrné kanálky odvozené od UB a buňky dolních močových cest a cév, byly z hostitelských zvířat v těchto dvou strategiích.
Modelování nemocíTechnologie iPSC umožnila vytvořit in vitro modely onemocnění, ve kterých jsou hiPSC specifické pro onemocnění odvozené ze somatických buněk pacienta nebo úpravou kauzativních genů v hiPSC odvozených od zdravých dárců diferencovány na typy poraněných buněk, aby napodobily fenotypy onemocnění [2 ] (obr. 3a). Dřívější práce Freedmana et al. generovaly hiPSC od pacientů s autozomálně dominantní polycystickounemoc ledvin(ADPKD), která je způsobena mutacemi v genu PKD1, a zjistili, že hiPSC a jejich diferencované buňky vykazovaly downregulaci polycystinu 2, což objasňuje nový mechanismus, ve kterém polycystin 1 kódovaný genem PKD1 reguluje expresi polycystinu 2 [25]. Naše skupina vytvořila hiPSC od pacientů s ADPKD, včetně těch komplikovaných intrakraniálními aneuryzmaty, a potvrdila, že vaskulární buňky diferencované od hiPSC vykazovaly změněnou manipulaci s intracelulárním vápníkem a expresi genů souvisejících s extracelulární matricí, což je v souladu s vaskulárními buňkami myších modelů ADPKD aledvinovécysty získané od pacientů s ADPKD [26].
Nedávné pokroky v generování nefronových organoidů z hiPSC umožnily modelováníledvinaporuchy, jako je nefronoftóza [27], kongenitální nefrotický syndrom [28] a autozomálně recesivní polycystickánemoc ledvin(ARPKD) [29].Renálnícystové modely ADPKD využívající nefronové organoidy byly vytvořeny z genově upravených homozygotních PKD1/2- mutantních hESC [30]. Tyto modely však nerekapitulovalyledvinovéfenotypy cyst pozorované u ADPKD při použití ADPKD heterozygotních PKD1-mutovaných hiPSCs odvozených od pacientů nebo genově upravených. Na rozdíl od toho jsme nedávno vytvořili nefronové organoidy z heterozygotů a homozygotů odvozených od pacientů s ADPKD a genově upravených
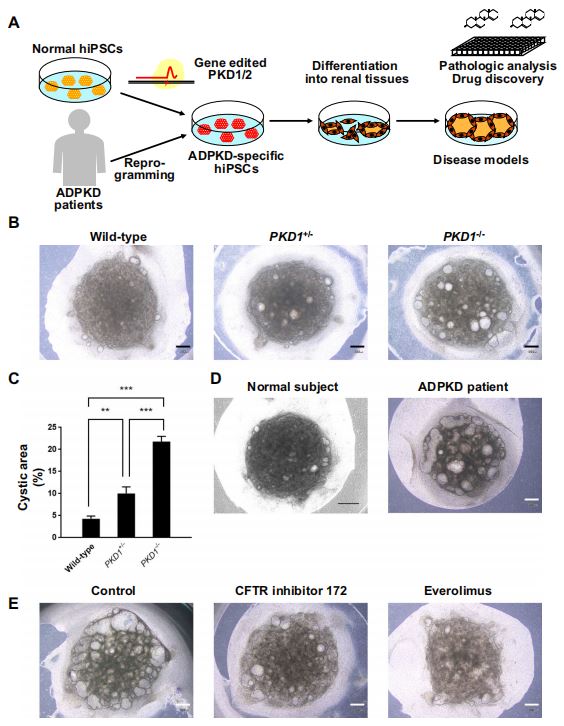
Obr. 3 Modelování ADPKD pomocí hiPSC specifických pro onemocnění. a Schéma ukazující výzkum modelování onemocnění pro ADPKD. HiPSC specifické pro onemocnění jsou odvozeny přeprogramováním somatických buněk pacientů s ADPKD nebo úpravou genů PKD1/2 v hiPSC odvozených od zdravých dárců. Modely onemocnění jsou generovány diferenciací hiPSC specifických pro ADPKDledvinovétkáně pro patologickou analýzu a objev léků. b Reprezentativní snímky světlého pole divokého typu a genově upraveného PKD1-mutanta odvozeného od hiPSCledvinaorganoidy po 7 dnech léčby forskolinem. c Kvantifikace cystických oblastíledvinaorganoidy v (b). Data jsou reprezentována jako průměr ± SE ze tří nezávislých experimentů se čtyřmi replikáty v každém. **str<0.005 and=""><0.001 by="" one-way="" anova="" and="" bonferroni's="" method.="" d="" representative="" bright-feld="" images="" of="" normal="" subject-="" and="" adpkd="" patient-derived="">ledvinaorganoidy po 7 dnech léčby forskolinem. e Reprezentativní snímky s jasným polem odvozené od pacientaledvinaorganoidy po 7 dnech léčby inhibitorem CFTR 172 (100 μM) nebo everolimem (10 μM) v přítomnosti forskolinu. Měřítko, 300 μm v (b), (d, vpravo) a (e) a 500 μm v (d, vlevo). Upraveno podle Shimizu et al. [31]
PKD1-mutované hiPSC k reprodukciledvinovécystové legie pro léčbu skolin [31]. Nutno podotknout, že jsme to potvrdililedvinovécysty mohou být vytvořeny ze všech tří typů hiPSC (obr. 3b-d). Tyto ledvinové cysty reagovaly na některá léčiva, o kterých je známo, že inhibují tvorbu cyst u ADPKD, jako je savčí cíl rapamycinu (mTOR), což naznačuje, že tyto modely lze použít ke screeningu léčivých sloučenin, které zabraňujíledvinovétvorba cyst [31] (obr. 3e). V současné době vytváříme vysoce výkonné systémy chemického screeningu modifikací modelů cyst pro objev terapeutického léku pro ADPKD.
Řešení komplikací onemocnění ledvin Hlavní komplikace spojené s chronickýmnemoc ledvin(CKD) zahrnujíledvinovéanémie způsobená nedostatečnou tvorbou hematopoetického hormonu erytropoetinu (EPO)ledviny. AčkoliledvinovéAnémie byla úspěšně léčena intermitentním podáváním rekombinantních lidských EPO činidel, je zapotřebí více fyziologických terapií. Vzhledem k tomu, že EPO je produkován také játry v embryonálních stádiích nebo v případě těžké anémie dokonce i u dospělých, upravili jsme dříve publikovaný protokol jaterní diferenciace a podařilo se nám vytvořit buňky produkující EPO z hiPSC (buňky hiPSC-EPO) [32 ] (obr. 4a). Tyto hiPSC-EPO buňky upregulují produkci EPO v reakci na hypoxické stimuly, což napodobuje jejich in vivo protějšky (obr. 4b, c). Protein EPO obsažený v kultivačním supernatantu vykazoval účinky podporující diferenciaci na erytroidní linie na základě testu tvorby kolonií za použití lidských hematopoetických progenitorů (obr. 4d). Kromě toho se tyto hiPSC-EPO buňky zlepšilyledvinovéanémie po dobu 7 měsíců po transplantaci u myších modelů vyvolaná podáváním adeninu (obr. 4e). Buňky hiPSC-EPO by tedy mohly být použity k objevování nových léků a vývoji buněčných terapií proti renální anémii [32].
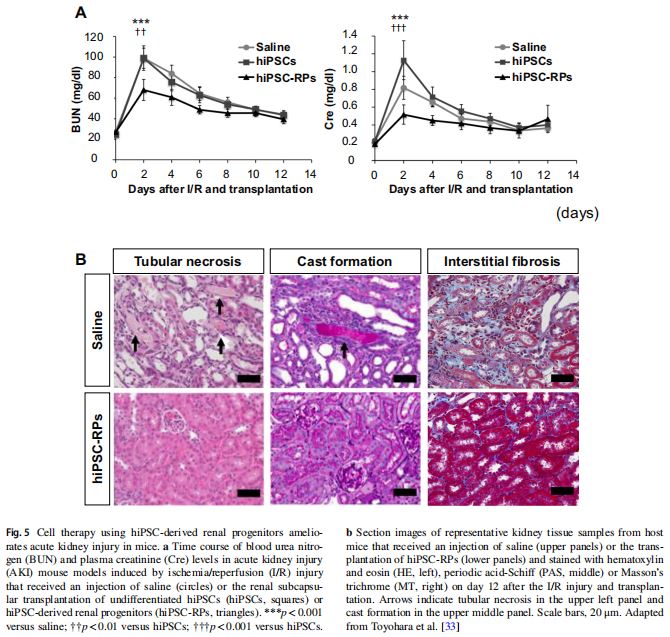
Buněčná terapieVýzkum směrem k buněčné terapii pomocí hiPSC-odvozené embryonálníledvinaprogenitorů byla provedena. Ve snaze prozkoumat jejich terapeutický potenciál protionemocnění ledvin, transplantovali jsme podobné NPCledvinovéprogenitory generované z hiPSC naší diferenciační metodou do subkapsle akutníporanění ledvin(AKI) myších modelech indukovaných ischemickým/reperfuzním poškozením, přičemž bylo zjištěno, že transplantace významně potlačila ine (Cre) u hostitelských myší [33] (obr. 5a). Kromě toho léčba významně zlepšila histologická poškození způsobená AKI, jako je tubulární nekróza (obr. 5b). Významně se také podařilo zabránit intersticiální fibróze, která odráží progresi do chronického onemocnění. Transplantované progenitory zlepšily AKI, aniž by byly integrovány do hostiteleledvinatkání, což naznačuje, že parakrinní účinky renotrofních faktorů vylučovaných z hiPSCledvinovéprogenitory jsou primární příčinou terapeutických přínosů. Objasnění těchto faktorů by přispělo k vývoji buněčné terapie i nových léků proti AKI [33, 34].
Imberti a kol. také uvedli terapeutické výhody buněčné terapie pomocí hiPSC odvozenéledvinovéprogenitory proti myším modelům AKI indukovaným cisplatinou [35]. Aplikovali injekci podobné NPC odvozeným od hiPSCledvinovéprogenitory generované pomocí jejich protokolu do myších modelů AKI přes ocasní žílu. Tato transplantační terapie také významně zlepšila AKI, jak dokazují snížené hladiny BUN a histologické nálezy. Ačkoli diferenciační protokoly pro generováníledvinovéprogenitory a modely myší AKI byly odlišné, tyto dvě zprávy poprvé ukázaly potenciální terapeutické přínosy buněčné terapie pomocí renálních progenitorů odvozených od hiPSC naonemocnění ledvin.
Závěr a výhled do budoucna Podstatný pokrok v generaci embryonálníchledvinapředchůdci aledvinatkáně z hPSC. Před klinickou aplikací však existují překážky, které je třeba překonat. Ohledně rekonstrukceledvina, generace většíledvinatkáně aledvinovéstruktury podobné pánvi a močovodu, do kterých se shromažďují sběrné kanálky, nebylo dosaženo. Kromě toho integrace odvozená od hiPSCledvinaje zapotřebí struktur pro velká plavidla. Buněčná terapie pomocí hiPSC-odvozenéledvinovéprogenitory by měly být také vyšetřeny pomocí modelů CKD. Nakonec byly pro některé vyvinuty modely založené na hiPSConemocnění ledvinvčetně ADPKD a identifikace kandidátních léčivých sloučenin protionemocnění ledvinse očekává.

Obr. 4 Diferenciace buněk produkujících EPO a buněčné terapie protiledvinovéanémie. a Imunobarvení buněk produkujících EPO odvozené z hiPSC (buňky hiPSC-EPO) na EPO (zelená) a AFP (červená). b Analýza časového průběhu exprese EPO mRNA (vlevo) a sekrece proteinu (vpravo) buňkami hiPSC-EPO kultivovanými za podmínek nízkého (1 procento) a normálního kyslíku (21 procent). Exprese EPO mRNA a sekrece proteinu byly analyzovány pomocí qRT-PCR a ELISA, v daném pořadí. c Účinky inhibitorů PHD na expresi mRNA EPO (vlevo) a sekreci proteinů (vpravo) v buňkách HepG2 a hiPSC-EPO. d Reprezentativní snímky erytroidní jednotky tvořící burst (BFU-E) indukované rekombinantním lidským EPO (rhEPO; horní) a hiPSC-EPO proteinem (dolní) v klonogenních hematopoetických progenitorových testech s použitím polotuhého média na bázi methylcelulózy. e Hodnoty hematokritu byly hodnoceny po dobu až 28 týdnů po transplantaci buněk hiPSC-EPO do adeninem indukovanýchledvinovémyši s anémií s imunodeficiencí (NOD. CB17-myši Prkdcscid/J). Šedá stínovaná oblast označuje normální rozsahy hematokritu. Měřítko, 40 μm v (a) a 200 μm v (d). Převzato z Hitomi et al. [32]
Poděkování Autor by rád poděkoval všem členům CiRA, Kyoto University, zejména Dr. Peteru Karagiannisovi za kritické přečtení a revizi rukopisu a paní Misaki Ochiuda za nakreslení ilustrací, a omlouvá se autorům, jejichž studie nemohly být citovány z důvodu prostorová omezení. Výzkum autora je podporován Japonskou agenturou pro lékařský výzkum a vývoj (AMED) prostřednictvím svého výzkumného grantu „Core Center for iPS Cell Research, Technology Development and The Acceleration Program for Intractable Diseases Research using Disease-specific iPS cells, Research Síť center pro realizaci regenerativní medicíny“.
Dodržování etických norem
Konflikt zájmůKO je zakladatelem a členem bez platu vědeckých poradních sborů společnosti iPS Portal, Inc. a zakladatelem a hlavním vědeckým poradcem společnosti RegeNephro Co., Ltd.Lidská a zvířecí právaVšechny experimenty s iPSC byly schváleny institucionálními etickými komisemi a prováděny v souladu s pokyny institucí a Helsinskou deklarací. Všechny pokusy na zvířatech byly schváleny institucionálními výbory pro pokusy na zvířatech a prováděny v souladu s institucionálními směrnicemi.Informovaný souhlasInformovaný souhlas byl získán od všech jedinců, jejichž iPSC byly použity ve studiích.
Otevřený přístupTento článek je licencován podle Creative Commons Attribution 4.{1}} Mezinárodní licence, která umožňuje použití, sdílení, adaptaci, distribuci a reprodukci na jakémkoli médiu nebo formátu, pokud uvedete příslušné jméno původního autora (autorů) a zdroj, uveďte odkaz na licenci Creative Commons a uveďte, zda byly provedeny změny. Obrázky nebo jiný materiál třetích stran v tomto článku jsou zahrnuty v licenci Creative Commons k článku, pokud není uvedeno jinak v kreditní hranici k materiálu. Pokud materiál není zahrnut v licenci Creative Commons článku a vaše zamýšlené použití není povoleno zákonnými předpisy nebo překračuje povolené použití, budete muset získat povolení přímo od držitele autorských práv. Chcete-li zobrazit kopii této licence.


