HydroZitLa inhibuje tvorbu kamenů šťavelanu vápenatého u nefrolitických potkanů a podporuje dlouhověkost u háďátek Caenorhabditis Elegans, část 2
Jul 31, 2023
Glykosid cistanche může také zvýšit aktivitu SOD v srdeční a jaterní tkáni a významně snížit obsah lipofuscinu a MDA v každé tkáni, účinně zachycovat různé reaktivní kyslíkové radikály (OH-, H₂O₂ atd.) a chránit před způsobeným poškozením DNA. OH-radikály. Cystanche fenylethanoidové glykosidy mají silnou schopnost vychytávání volných radikálů, vyšší redukční schopnost než vitamín C, zlepšují aktivitu SOD v suspenzi spermií, snižují obsah MDA a mají určitý ochranný účinek na funkci membrány spermií. Polysacharidy Cistanche mohou zvýšit aktivitu SOD a GSH-Px v erytrocytech a plicních tkáních experimentálně senescentních myší způsobených D-galaktózou, stejně jako snížit obsah MDA a kolagenu v plicích a plazmě a zvýšit obsah elastinu. dobrý čisticí účinek na DPPH, prodlužuje dobu hypoxie u senescentních myší, zlepšuje aktivitu SOD v séru a oddaluje fyziologickou degeneraci plic u experimentálně senescentních myší Experimenty prokázaly, že Cistanche má dobrou antioxidační schopnost s buněčnou morfologickou degenerací a má potenciál být lékem k prevenci a léčbě nemocí stárnutí kůže. Zároveň má echinakosid v Cistanche významnou schopnost vychytávat volné radikály DPPH a má schopnost vychytávat reaktivní formy kyslíku a bránit volnými radikály indukované degradaci kolagenu a má také dobrý reparační účinek na poškození aniontů volnými radikály thyminu.

Klikněte na Cistanche Norge
【Další informace:george.deng@wecistanche.com / WhatApp:{0}}】
Na základě našich současných zjištění HydroZitLa vykonávala antipatogenní funkci prostřednictvím alespoň dvou cest. Za prvé snížil vylučování oxalátu močí, snížil kapacitu krystalizace CaOx v moči a dodal citrát. Za druhé, obsahoval rostlinné polyfenoly, které byly schopny zmírnit oxidační stres a zánět, a tím inhibovat litogenezi CaOx. Oxalát je v zásadě endogenně syntetizován v játrech pomocí glyoxylátu jako prominentního prekurzoru41. Glyoxylát je syntetizován z glykolátu enzymem glykolát oxidáza (GO) a dále je přeměněn na oxalát pomocí laktátdehydrogenázy (LDH). Zjistili jsme, že HydroZitLa významně snížilo vylučování oxalátu močí u potkanů léčených EG. Spekulovali jsme, že HydroZitLa inhibuje syntetickou dráhu oxalátu v játrech prostřednictvím downregulace jaterních enzymů zapojených do metabolismu glyoxylátů, zejména LDH a GO. Předchozí studie Kailashe a Varalakshmiho prokázala, že extrakt z banánových stonků snížil hladiny GO a LDH v játrech u hyperoxalurických potkanů vyvolaných glykolátem sodným27. Poonguzhali a Chegu také uvedli, že surový extrakt z banánových stonků redukoval močový oxalát, kyselinu glykolovou a kyselinu glyoxylovou u hyperoxalurických potkanů vyvolaných glykolátem30. Nedávno Patankar a spol. prokázali, že jejich bylinná formulace nazvaná Herbmed Plus (obsahující stonku banánu) snižuje hladinu aktivity LDH v jaterních a ledvinových tkáních42. Pro ověření naší spekulace by měla být dále prozkoumána exprese jaterních a ledvinových enzymů zapojených do syntézy oxalátů u EG potkanů léčených HydroZitLa.
Několik linií důkazů silně podporuje, že oxidační stres, zánět a renální tubulární poškození jsou kriticky zapojeny do litogeneze CaOx3,4,15,43–45. Oxidační stres vyvolaný krystaly oxalátu a/nebo CaOx způsobuje renální tubulární poškození, které vytváří místa pro nukleaci krystalů, adhezi, retenci, agregaci a nakonec tvorbu nidu43,46,47. Kromě toho oxidační stres aktivuje zánětlivou reakci, která zase urychluje litogenní proces4,47,48. Fytomedicína, která má antioxidační a protizánětlivé vlastnosti, je tedy slibným opatřením pro prevenci tvorby ledvinových kamenů24. Aggarwal a kol. prokázali na EG-indukovaném nefrolitickém potkaním modelu, že bergenin (bioaktivní fenolická sloučenina izolovaná z Bergenia ligulata) má silný antipatogenní účinek na zmírnění oxidačního stresu, zlepšení mitochondriální dysfunkce a snížení tubulárního poškození a zánětu49. Ukázalo se, že rutin a kurkumin (dobře známé domácí fytochemikálie s antioxidačními a protizánětlivými vlastnostmi) inhibují tubulointersticiální poškození a usazování krystalů u EG-indukovaných nefrolitických potkanů50. Bylo také prokázáno, že polyfenoly z hroznových semen inhibují intrarenální ukládání krystalů CaOx u EG-indukovaných litiázových krys, pravděpodobně prostřednictvím jejich antioxidační aktivity51. Bylo prokázáno, že ájurvédská bylinná formulace Herbmed snižuje zánětlivé poškození a usazeniny krystalů v ledvinách nefrolitických potkanů vyvolaných EG42. V této studii jsme ukázali, že HydroZitLa snižoval intrarenální oxidační stres, zánět a usazeniny krystalů CaOx, což naznačuje, že HydroZitLa má antioxidační a protizánětlivé účinky, aby zabránil tvorbě ledvinových kamenů CaOx.
U několika rostlinných polyfenolů bylo experimentálně prokázáno, že jsou prospěšné pro prodloužení životnosti a zpomalení stárnutí52. Resveratrol je nejlépe charakterizovaná polyfenolická sloučenina prodlužující životnost. Primárně působí prostřednictvím aktivace sirtuinu a zmírnění oxidačního stresu53. Účinek dlouhověkosti resveratrolu testovaný na modelu C. elegans se mezi studiemi liší se zvýšením střední délky života v rozmezí od 10 do 65 procent 54,55. HydroZitLa významně prodloužila životnost divokého typu C. elegans až o 34 procent bez známek toxicity, což naznačuje, že účinek HydroZitLa prodlužující životnost byl srovnatelný s účinkem resveratrolu. Dietní omezení je známým klíčovým mechanismem dlouhověkosti56. Rychlosti faryngeálního čerpání ve srovnání mezi červy HydroZitLa a kontrolními červy byly srovnatelné, což naznačuje, že prodloužení životnosti pomocí HydroZitLa nebylo výsledkem dietního omezení.
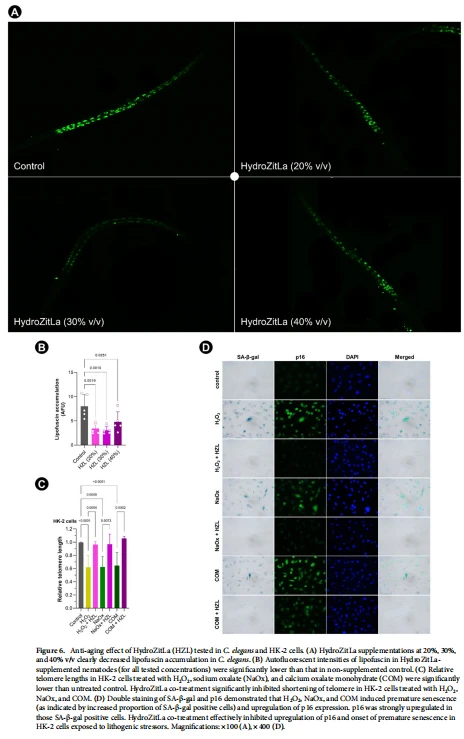
HydroZitLa významně snížila akumulaci autofluorescenčního věkového pigmentu lipofuscinu v C. elegans, což naznačuje účinek proti stárnutí. ROS a oxidační stres jsou dobře známé induktory SIPS a oxidační stres urychluje zkracování telomer57. Nedávno jsme prokázali, že oxalát, COM a moč od pacientů s CaOx kameny indukovaly předčasné stárnutí, upregulaci p16 a opotřebování telomer v renálních tubulárních buňkách prostřednictvím oxidačního stresu 58. V této studii jsme ukázali, že HydroZitLa inhibovala opotřebování telomer, upregulaci p16 a předčasné stárnutí v HK-2 buňkách vystavených H2O2, oxalátu a COM. Ačkoli molekulární mechanismus pro tento účinek proti stárnutí nebyl propracován, bylo navrženo, aby HydroZitLa mechanicky zabránil předčasnému stárnutí prostřednictvím inhibice zkracování telomer a downregulace exprese p16.
Přestože se bylinné přípravky a fytomedicína postupně stávají populárními a celosvětově uznávanými, musí být poskytnuty vědecké důkazy o účinnosti a bezpečnosti, které by neměly být ohroženy. Interakce bylina-lék je stěží předvídatelná, protože se mezi jednotlivci velmi liší v závislosti na několika faktorech, jako jsou polymorfismy enzymu cytochromu P450 a transportérů léčiv a stávajících zdravotních stavech59. Nežádoucí účinky současného podávání bylin a léčiv musí být pečlivě sledovány, aby bylo možné identifikovat potenciální interakce bylina-lék. Mezi nejznámější byliny, které vážně interagovaly s drogami, patří česnek, Baizhi, Danggui, ženšen, ginkgo, lékořice, třezalka tečkovaná, Kava, černý a dlouhý pepř, Danshen, Huangqin a ostropestřec mariánský59. Pokud je nám známo, nebyly hlášeny žádné závažné vedlejší účinky nebo lékové interakce u stonku banánu, květu motýla modrého hrášku a dřeva sappanu. V Thajsku se stonky banánů konzumují jako potravinová složka. Přílišné pití (nadměrná konzumace) šťávy z banánových stonků může způsobit alergii, bolesti břicha a zvracení, proto se doporučuje umírněná konzumace. Květ modrého hrachu se běžně používá v potravinách jako přírodní barvivo a používá se také k přípravě čaje. Nežádoucí účinky nadměrné konzumace čaje z květu motýlo modrého hrášku, například žaludeční nevolnost, nevolnost a alergické reakce, jsou hlášeny zřídka. Sappanové dřevo se také často používá jako přírodní potravinářské barvivo a v komunitách (včetně komunit v Thajsku) se běžně konzumuje jako zdravý nápoj. Antikoncepční funkce (antifertilita u samců) extraktu ze sappanového dřeva je však prokázána na potkaním modelu, protože zasahuje do spermatogeneze60. Na druhé straně se jádrové dřevo Caesalpinia sappan L. používá k léčbě gynekologických symptomů, včetně oligomenorey a amenorey61. Bezpečnost dlouhodobé konzumace HydroZitLa u lidí je proto třeba ověřit v klinické studii.
Tato studie má určitá omezení. Přesné aktivní sloučeniny odpovědné za inhibiční funkci CaOx kamenů nebyly identifikovány a charakterizovány. Přesné mechanismy HydroZitLa k inhibici tvorby CaOx kamenů u potkanů nebyly rozsáhle zkoumány. Antipatogenní účinek HydroZitLa v závislosti na dávce nebyl zkoumán. Dávka HydroZitLa, která by mohla významně zvýšit hladiny citrátu v moči u nefrolitických potkanů, nebyla zkoumána. Fenolický profil HydroZitLa by měl být dále zkoumán. Mechanismus podpory dlouhověkosti pomocí HydroZitLa u C. elegans nebyl intenzivně prozkoumán. A konečně, konkrétní sloučeniny v HydroZitLa odpovědné za dlouhověkost a anti-aging nebyly identifikovány a charakterizovány.
Závěrem lze říci, že HydroZitLa byl vyvinut za účelem současné normalizace rizikových faktorů tvorby CaOx kamenů dodáním tekutiny, citrátu a přírodních antioxidantů. Experimentálně HydroZitLa inhiboval intrarenální ukládání CaOx u nefrolitických potkanů. Inhibiční účinnost na CaOx kameny u HydroZitLa byla ekvivalentní v současnosti používanému citrátu draselnému (Uralyt-U). HydroZitLa účinně zmírňuje oxidační stres in vitro i in vivo. Je pozoruhodné, že HydroZitLa prodloužila životnost a oddálila nástup stárnutí u C. elegans. Kromě toho HydroZitLa významně inhibovala zkracování telomer, expresi p16 a předčasné stárnutí v lidských ledvinových buňkách. Tato preklinická zjištění naznačují, že HydroZitLa je klinicky slibnou alternativou pro léčbu CaOx nefrolitiázy doprovázenou podporou dlouhověkosti a výhodami proti stárnutí. K zajištění terapeutické účinnosti HydroZitLa u lidí jsou nezbytné klinické studie.
Materiály a metody
Produkce HydroZitLa, obsah antioxidantů a nutriční fakt. HydroZitLa je nápojový koncentrát získaný z léčivých rostlin lokálně dostupný v Tailand32. Nápoj se připravuje zředěním koncentrátu HydroZitLa (55 ml v uzavřeném sáčku) pitnou vodou (na konečný objem 500 ml). Má růžovofialovou barvu s lahodnou kyselou a sladkou chutí. Hlavními složkami HydroZitLa byly vodní extrakt z banánových stonků (Musa sapientum L.) a kyselina citrónová (16 mEq/sáček). Tradiční léčivé rostliny Tai včetně Clitoria ternatea L. (prášek z květů motýlů modrého) a Caesalpinia sappan L. (prášek ze dřeva Sappan) byly použity jako přírodní barviva. Stévie a sukralóza byly sladidla. Produkt byl schválen Tai FDA dne 10. dubna 2019 v kategorii nápoje v uzavřené nádobě (potravinové sériové č. 10–1-02,244–5-0005).
Celková antioxidační kapacita (TAC) HydroZitLa byla 21,87±7,96 mg ekvivalentní antioxidační kapacity vitaminu C na sáček (doplňkový obrázek 8). Celkový obsah fenolů (TPC) byl 19,99 ±0,83 mg ekvivalentu kyseliny gallové/10}0 g. Celkový obsah favonoidů (TFC) byl 4,59 ± 0,31 mg ekvivalentu katechinu/100 g. Pro kontrolu kvality byly jako parametry kontroly kvality použity TAC, TPC a TFC. Hladiny TAC, TPC a TFC ve výtažcích z banánového stonku, květu motýla modrého a dřeva sappanu se mezi šaržemi a časovými body skladování významně nelišily. Při výrobě HydroZitLa byly jako parametry kontroly kvality použity hodnoty TAC, TPC, TFC a Brix (17±2), aby byla zachována konzistence mezi šaržemi.
Celková energie HydroZitLa na sáček (porci) byla 25 kcal. Nebyl zjištěn žádný obsah bílkovin, tuků a cholesterolu. Celkový sacharid byl 6 g, cukr ano<1 g, and sodium was 10 mg. The potassium content was 240 mg/100 g. Soluble and insoluble dietary fibers were 0.74 and 0.43 g/100 g, respectively. Te pH of HydroZitLa was 3.4.
Hodnocení toxicity.Přítomnost Escherichia coli, Clostridium spp., Salmonella spp. a Staphylococcus aureus v HydroZitLa byla analyzována Úřadem pro kvalitu a bezpečnost potravin, Ministerstvo veřejného zdraví, Thajsko. Kovový profil HydroZitLa byl analyzován pomocí ICP-OES.
Akutní toxicita HydroZitLa in vivo u myší byla testována Ústavem pro výzkum léčivých rostlin, Ministerstvo veřejného zdraví, Thajsko. HydroZitLa nebo voda (kontrola) byla orálně podávána myším v dávce 20 ml/kg (n=10 na skupinu). Myši byly pozorovány 14 dní před pitvou. Velké léze ve viscerálních orgánech byly vyšetřeny a porovnány mezi HydroZitLa a kontrolní skupinou.
Test agregace CaOx.Očkovací COM krystaly byly připraveny62 a zředěny na 50 mg/ml v 0.05M Tris/0.15 NaCl, pH 6,5. HydroZitLa nebo BSA nebo destilovaná voda (slepý pokus) (200 ul) byla přidána k čerstvě připravené pracovní suspenzi COM (2 ml). Po smíchání byla měřena absorbance při 620 nm jako základní linie (AT0). Po inkubaci při 37 stupních po dobu 10 minut byla znovu změřena absorbance při 620 nm (AT10). Agregační koeficient (AC) byl vypočten následovně: AC=((AT0− AT10)/10)×1000. Vyšší hodnota AC znamená vyšší agregaci COM.
Stanovení buněčné linie, cytotoxicity a intracelulárního ROS.HK{{0}} buňky (ATCC, VA, USA) byly udržovány v DMEM doplněném 10 procenty fetálního bovinního séra a 1 procentem Pen-Strep pod 37 stupňů, 5 procenty CO2 a 95 procenty vlhkosti. Cytotoxicita HydroZitLa v buňkách HK-2 byla hodnocena testem MTT63. HK-2 buňky byly nasazeny (200 buněk/jamka), pěstovány přes noc na 96-jamkové destičce a ošetřeny různými koncentracemi HydroZitLa (0 jako kontrola, 1,25 procenta, 2,5 procenta, 5 procent, 10 procent , 20 procent , 40 procent , 50 procent , 80 procent a 100 procent v/v) po dobu 24 hodin. Po promytí byl přidán roztok MTT, inkubován po dobu 1 hodiny a poté zlikvidován. K rozpuštění formazanových krystalů byl přidán dimethylsulfoxid. Byla měřena absorpce při 570 nm. Životaschopnost buněk (procenta) byla vypočtena s použitím neošetřených buněk jako kontroly (100% životaschopnost).
Inhibice intracelulární produkce ROS pomocí HydroZitLa byla stanovena testem dichlor-dihydro-fluorescein diacetátu (DCFH-DA) na 96-jamkové destičce 64,65. HK-2 buňky byly smíchány s 0.1 M roztokem DCFH-DA a inkubovány při 37 stupních po dobu 30 min. Po promytí byly buňky stimulovány H202 nebo COM (s a bez 10 procent v/v HydroZitLa). Intenzita fluorescence (excitovaná při 485 nm a emitovaná při 535 nm) byla měřena na začátku (TO) a 60 min (T60). Arbitrární fluorescenční jednotka (AFU), která indikovala úroveň tvorby ROS, byla vypočtena následovně: AFU= T60/T0.
Měření karbonylace proteinů.Obsah karbonylu proteinu jako indikátor oxidace proteinu byl měřen podle našich dřívějších zpráv64–66. Ošetřené HK-2 buňky (v 100-mm misce) byly lyžovány radioimunoprecipitačním testovacím pufrem obsahujícím koktejl inhibitorů proteázy. Celková koncentrace proteinu byla měřena Bradfordovým testem. Buněčný lyzát byl inkubován s 10 mM roztokem dinitrofenylhydrazinu (DNPH) nebo 2N HC1 po dobu 1 hodiny ve tmě. Byla přidána studená 20% kyselina trichloroctová a inkubována po dobu 10 minut na ledu. Pelety byly shromážděny centrifugací, promyty ethylacetátem:ethanolem (1:1) a znovu rozpuštěny v 6M guanidin HC1. Byla měřena absorbance (A) při 375 nm. Obsah karbonylu proteinu normalizovaný celkovou koncentrací proteinu byl vypočten následovně: ((ADNPH – AHCl)×45,45)/koncentrace proteinu.

Krysí model pro CaOx nefrolitiázu.EG (1 procento v/v) doplněné v pitné vodě (volný přístup ad libitum, po dobu 35 dnů) byly použity pro indukci CaOx nefrolitiázy u potkanů. Samci potkanů Wistar (ve věku 6–8 týdnů, 180–300 g) byli rozděleni do čtyř skupin, konkrétně EG (n=6), EG plus HydroZitLa (n=6), EG plus Uralyt-U (n=6) a normální kontrolní skupiny (n=2). Všechny krysy byly umístěny v klecích z nerezové oceli při 25 stupních v cyklu světlo-tma 12:12 h. Dvě kontrolní krysy byly záměrně použity pouze pro srovnání depozit CaOx v ledvinách krys a imunohistochemii, nikoli pro chemii moči. HydroZitLa a Uralyt-U byly nuceně krmeny dvakrát denně (ráno a večer) v celkové dávce citrátu 2 mEq denně. Tato podaná dávka citrátu byla ekvivalentní 60,8 mEq citrátu u lidí, vypočítané na základě konverze dávky navržené Reaganem-Shawem a kol.67. 24-h vzorky moči byly odebrány na konci intervence (35. den) s použitím thymolu jako konzervačního činidla. Krysy byly anestetizovány isofluranem a usmrceny. Obě ledviny byly odstraněny, rozříznuty a fixovány v 10% neutrálním formalínovém pufru pro histologickou studii.
Všechny krysy byly zakoupeny od National Laboratory Animal Center, Salaya Campus Mahidol University, Nakhonpathom, Thajsko. Experimentální postupy byly prováděny podle pokynů pro experimentální zvířata Thajské národní výzkumné rady a schváleny Institutional Animal Care & Use Committee, Medical Faculty, Chulalongkorn University (č. 022/2560). Naše studie byla provedena v souladu s pokyny ARRIVE.
Depozice CaOx v řezech ledvin polarizovanou mikroskopií.Řezy krysích ledvin fixované v parafinu fixované ve formalínu byly připraveny automatizovaným tkáňovým procesorem. H&E barvení bylo provedeno podle standardního postupu. Dvojlomné depozity krystalů CaOx v řezech obarvených H&E byly vizualizovány pomocí mikroskopu s polarizovaným světlem (OLYMPUS BX50, Japonsko).
Yasueovo barvení pro histochemii CaOx.Řezy renální tkáně byly zbaveny parafinu, rehydratovány, ponořeny do 5% kyseliny octové na 30 minut, aby se odstranil fosforečnan vápenatý a uhličitan vápenatý, a promyty destilovanou vodou 68. Řezy byly inkubovány s 5% AgNO3 po dobu 12 minut, promyty a inkubovány s nasyceným rubeanem kyseliny v 10% amoniaku po dobu 1 min. Obarvené řezy byly opláchnuty 50% ethanolem, promyty destilovanou vodou, dehydratovány, vyčištěny a upevněny. Černé precipitáty CaOx byly vizualizovány pod světelným mikroskopem69.
Imunohistochemické barvení.Po deparafinizaci a rehydrataci se provedlo získání antigenu varem v pufru citrátu sodného za použití mikrovln. Endogenní H2O2 byla inaktivována inkubací s 0,3 % H2O2 po dobu 30 minut. Nespecifická vazba byla blokována inkubací s normálním koňským sérem po dobu 20 minut. Řezy byly poté inkubovány s primární protilátkou 1:1,000 4-HNE (ab46545, Abcam, Cambridge, Spojené království) nebo štěpenou kaspázou-3 (5A1E, Cell Signaling Technology, MA, USA) při 4 stupních přes noc, následuje inkubace se sekundární protilátkou při 37 stupních po dobu 30 minut. Po promytí byly řezy inkubovány s činidlem ABC (souprava VECTASTAIN® ABC) po dobu 30 minut, namočeny v 1% diaminobenzidinovém barvicím činidle po dobu 5 minut a kontrastně obarveny hematoxylinem po dobu 5 minut. Nakonec byly řezy dehydratovány, vyčištěny, upevněny a vizualizovány pod světelným mikroskopem.
Měření močového citrátu, oxalátu, kyseliny močové a iCOCI. Hladina citrátu v moči byla stanovena vysokoúčinnou kapalinovou chromatografií (Varian Medical Systems, CA, USA) s použitím kolony ROAorganic Acid H plus (300×7,8 mm) (Phenomenex, CA, USA) a eluována pomocí 5 mM H2SO4 při průtoku 0,5 ml/min. Hladiny oxalátu a kyseliny močové v moči byly měřeny kapilární elektroforézou (Beckman Coulter, CA, USA) oddělenou při 25 stupních s napětím -20 kV. Močový iCOCI test byl proveden podle naší předchozí zprávy 38.
Kmen a údržba C. elegans.Divoký kmen C. elegans Bristol N2 a jeho laboratorní potravinový zdroj E. coli OP50 byly získány z Caenorhabditis Genetics Center, University of Minnesota, USA. Byly pěstovány a udržovány na agarových plotnách s růstovým médiem háďátek s trávníkem E. coli OP50 při 20 stupních 70 °C. Všechny experimenty byly prováděny na věkově synchronizovaných mladých dospělých červech.
Test životnosti.Analýza životnosti byla provedena v kapalném médiu71. Stručně řečeno, 10 věkově synchronizovaných mladých dospělých háďátek bylo přeneseno do 24-jamkové destičky s pufrem M9 spolu s E. coli OP50 a 5-fuoro-2′-deoxyuridinem pro prevenci produkce potomstva. Byly přidány různé koncentrace HydroZitLa s použitím destilované vody jako kontroly vehikula. Živá háďátka byla počítána každých 24 hodin. Hlístice byly považovány za mrtvé, když nereagovaly na jemné popichování pomocí platinové smyčky.
Test faryngální pumpy.Pumpování hltanu (ukazatel schopnosti přijímat potravu) bylo měřeno u mladých dospělých hlístic (~10) ve srovnání mezi kontrolou a suplementací HydroZitLa sledováním kontrakce hltanu po dobu 30 s každých 24 hodin pod stereomikroskopem (SMZ{ {3}}, Motic, Čína) ve dnech 0 (před doplněním), 5., 10. a 1572.
Lipofuscinový test.Byla sledována akumulace lipofuscinu u hlístic divokého typu po suplementaci různými koncentracemi HydroZitLa (20 procent, 30 procent, 40 procent v/v) po dobu 5 dnů. Jako kontrola byli použiti červi krmení E. coli OP50-. Po zásahu se červi několikrát promyli pufrem M9 a umístili na podložní sklíčko do kapky azidu sodného. Fluorescenční zobrazování bylo provedeno pomocí konfokálního mikroskopu ZEISS LSM 700. Obrázky byly dále analyzovány pomocí softwaru Image J a intenzita fluorescence byla prezentována jako arbitrární jednotky (AU)72.
Měření relativní délky telomer. Relativní délka telomer (RTL) byla měřena v HK-2 buňkách ošetřených H2O2 (25 µM), oxalátem sodným (NaOx, 900 µM) a COM (25 µg/cm2) s nebo bez HydroZitLa (10 procent v /proti). RTL byla stanovena kvantitativní polymerázovou řetězovou reakcí v reálném čase (qPCR)73. Vypočítá se na základě poměru počtu kopií telomerních repetic k počtu kopií genu s jednou kopií (gen 36B4), který je úměrný průměrné délce telomer. Použité primery byly následující: Telomere (dopředu) 5′-CGGTTTGTTTGGGTTTGGGTTTGGGTTTGGGTTTGGGTT-3′, Telomere (reverzní) 5′-GGC TTGCCTTACCCTTACCCTTACCCTTACCCTTACCCTTACCCTTACCCTTACCCTTACCCTTACCTA}forward) CACCCT,′4B{1CCCT{101} AGTGGGAAGGTGT AATCC{{23 }}′ a 36B4 (reverzní) 5′-CCCATTTCTATCATCAACGGGTACAA-3′. PCR byla amplifikována při 95 stupních po dobu 10 minut, poté následovalo 40 cyklů 95 stupňů po dobu 15 s a 54 stupňů po dobu 1 minuty.
Dvojité barvení SA‑-gal a p16.HK{{0}} buňky pěstované na krycích sklíčkách byly ošetřeny H2O2, NaOx a COM s a bez 10% v/v HydroZitLa po dobu 72 hodin pro indukci SIPS. Po ošetření byly buňky fixovány a obarveny čerstvě připraveným roztokem X-gal (Vivantis, Malajsie) po dobu 12–16 hodin, promyty, permeabilizovány 0,1% Tritonem X-100 (Amresco, TX, USA) po dobu 3 minut a blokovány pro nespecifickou vazbu 1% normálním koňským sérem (Gibco, MA, USA) při 37 stupních po dobu 1 hodiny. Buňky byly poté inkubovány s 1:10,000 primární protilátkou p16 (ab108349, Abcam) při 4 stupních přes noc, následovanou 1:10,000 Alexa Fluor® 488-konjugovanou sekundární protilátkou ( Cell Signaling Technology) při 37 stupních po dobu 30 minut. Obarvené krycí sklíčko bylo připevněno montážním médiem Fluoroshield s 4′,6-diamidino-2-fenylindolem (Abcam). SA- -gal-pozitivní senescentní buňky (modré) a buňky exprimující p16- (zelené) byly vizualizovány a zobrazeny pomocí zobrazovacího systému EVOS FL Auto 2 (Thermo Fisher Scientific, MA, USA).
Statistická analýza.Všechna data byla prezentována jako průměr ± standardní odchylka nebo medián (interkvartilní rozmezí), podle potřeby. K testování rozdílu mezi těmito dvěma skupinami byl proveden dvouvzorkový t-test nebo Mann–Whitney test. K testování rozdílu mezi třemi nebo více skupinami byla použita jednosměrná analýza rozptylu nebo Kruskal-Wallisův test, následovaný testem vícenásobného srovnání. Pro výpočty a grafy byl použit software GraphPad Prism verze 9 (GraphPad Sofware Inc., CA, USA). P<0.05 was considered significant.
Reference
1. Michell, AR Urolitiáza – historické, komparativní a patofyziologické aspekty: Přehled. JR Soc. Med. 82, 669-672 (1989).
2. Shah, J. & Whitfield, HN Urolitiáza v průběhu věků. BJU Int. 89, 801-810 (2002).
3. Boonla, C. a kol. Exprese mediátorové RNA monocytového chemoatraktantu proteinu-1 a interleukinu-6 v ledvinách obsahujících kameny. BJU Int. 101, 1170–1177 (2008).
4. Boonla, C. a kol. Fibróza a důkazy epiteliálně-mezenchymálního přechodu v ledvinách pacientů s jelenovitými konkrementy. BJU Int. 108, 1336–1345 (2011).
5. Chuang, TF a kol. Riziko chronického onemocnění ledvin u pacientů s ledvinovými kameny – celostátní kohortová studie. BMC Nephrol. 21, 292 (2020).
6. Dhondup, T. a kol. Riziko ESRD a úmrtnost u tvůrců ledvinových a močových kamenů. Dopoledne. J. Kidney Dis. 72, 790–797 (2018).
7. Kum, F. a kol. Zabíjejí ještě kameny? Analýza úmrtí na kamenné onemocnění v letech 1999–2013 v Anglii a Walesu. BJU Int. 118, 140–144 (2016).
8. Geraghty, RM, Cook, P., Walker, V. & Somani, BK Hodnocení ekonomické zátěže onemocnění ledvinovými kameny ve Velké Británii: Retrospektivní kohortová studie s průměrnou dobou sledování 19 let. BJU Int. 125, 586–594 (2020).
9. C. Türk (předseda), AN, A. Petrik, C. Seitz, A. Skolarikos (místopředseda), K. Tomas & Guidelines Spolupracovníci: NF Davis, JFD, R. Lombardo, N. Grivas, Y. Ruhayel. Směrnice Evropské urologické asociace (EAU) o urolitiáze.
10. Jendle-Bengten, C. & Tiselius, HG Dlouhodobé sledování konkrementů léčených nízkou dávkou citrátu sodno-draselného. Scand. J. Urol. Nephrol. 34, 36-41 (2000).
11. Schwille, PO, Herrmann, U., Wolf, C., Berger, I. & Meister, R. Citrát a recidivující idiopatická kalciová urolitiáza. Dlouhodobá pilotní studie metabolických účinků perorálního citrátu draselného podávaného během krátkodobé, střednědobé a dlouhodobé medikace pacientům s kameny. Urol. Res. 20, 145-155 (1992).
12. Tracy, ČR a Pearle, MS Aktualizace lékařského managementu kamenných onemocnění. Curr. Opin. Urol. 19, 200–204 (2009).
13. Mechlin, C., Kalorin, C., Asplin, J. & White, M. Splenda® zlepšuje toleranci perorální suplementace citrátem draselným pro prevenci tvorby kamenů: Výsledky randomizované dvojitě zaslepené studie. J. Endourol. 25, 1541–1545 (2011).
14. Boonla, C. Oxidační stres u urolitiázy, reaktivní druhy kyslíku (ROS) v živých buňkách, Cristiana Filip a Elena Albu, IntechOpen.
15. Boonla, C., Wunsuwan, R., Tungsanga, K. & Tosukhowong, P. U pacientů s nefrolitiázou je zvýšený 8-hydroxydeoxyguanosin v moči. Urol. Res. 35, 185–191 (2007).
16. Khan, SR Oxidační stres vyvolaný hyperoxalurií a antioxidanty pro ochranu ledvin. Urol. Res. 33, 349-357 (2005).
17. Khan, SR Reaktivní formy kyslíku jako molekulární modulátory tvorby ledvinových kamenů ze šťavelanu vápenatého: Důkazy z klinických a experimentálních výzkumů. J. Urol. 189, 803–811 (2013).
18. Kittikowit, W. a kol. Zvýšené oxidační poškození DNA pozorované v renálních biopsiích sousedících s kameny u pacientů s nefrolitiázou. Urolitiáza 42, 387–394 (2014).
19. Yasui, T. a kol. Léčba urolitiázy založená na patofyziologii. Int. J. Urol. 24, 32–38 (2017).
20. Huang, HS, Ma, MC & Chen, J. Dieta s nízkým obsahem vitaminu E zhoršuje tvorbu krystalů šťavelanu vápenatého prostřednictvím zvýšeného oxidačního stresu v hyperoxalurických ledvinách potkana. Dopoledne. J. Physiol. Renální. Physiol. 296, F34-45 (2009).
21. Huang, HS, Chen, J., Chen, CF & Ma, MC Vitamin E zeslabuje tvorbu krystalů v ledvinách potkana: Role smrti renálních tubulárních buněk a inhibitory krystalizace. Kidney Int. 70, 699-710 (2006).
22. Tamilselvan, S. & Menon, M. Léčba vitaminem E zabraňuje usazování krystalů oxalátu vápenatého v ledvinách vyvolané hyperoxalurií zlepšením antioxidačního stavu renální tkáně. BJU Int. 96, 117-126 (2005).
23. Tamilselvan, S. & Selvam, R. Vliv vitaminu E a mannitolu na renální retenci oxalátu vápenatého u experimentální nefrolitiázy. Indian J. Biochem. Biophys. 34, 319-323 (1997).
24. Butterweck, V. & Khan, SR Rostlinné léky v léčbě urolitiázy: Alternativní nebo doplňkové? Planta Med. 75, 1095-1103 (2009).
25. Kasote, DM, Jagtap, SD, Tapa, D., Khyade, MS & Russell, WR Bylinné přípravky na močové kameny používané v Indii a Číně: Přehled. J. Ethnopharmacol. 203, 55–68 (2017).
26. Abu Zarin, M., Tan, JS, Murugan, P. & Ahmad, R. Výzkum potenciální antiurolitiázové aktivity z různých typů extraktů pseudokmenů Musa při inhibici krystalizace šťavelanu vápenatého. BMC Complement Med. Ter. 20, 317 (2020).
27. Kailash, P. & Varalakshmi, P. Vliv šťávy z banánových stonků na biochemické změny v játrech normálních a hyperoxalurických potkanů. Indian J. Exp. Biol. 30, 440-442 (1992).
28. Prasad, KV, Bharathi, K. & Srinivasan, KK Hodnocení Musa (rajský kultivar Linn.) – „Puttubale“ stonkové šťávy pro antilithiatickou aktivitu u albínských krys. Indian J. Physiol. Pharmacol. 37, 337-341 (1993).
29. Panigrahi, PN, Dey, S., Sahoo, M. & Dan, A. Antiurolitická a antioxidační účinnost pseudostemu Musa paradisiaca na nefrolitiázu vyvolanou ethylenglykolem u potkanů. Indian J. Pharmacol. 49, 77–83 (2017).
30. Poonguzhali, PK & Chegu, H. Vliv extraktu z banánových stonků na močové rizikové faktory pro kameny u normálních a hyperoxalurických potkanů. Br. J. Urol. 74, 23-25 (1994).
31. Pillai, RG Jádro pseudostonku Musa při léčbě močových kamenů. Život Anc Sci. 15, 2-6 (1995).
32. Lordumrongkiat, N., Chotechuang, N., Madared, N., Jindatip, D. & Boonla, C. Celkové fenolické látky, celkový flavonoid a celková antioxidační kapacita nápoje z léčivých rostlin: HydroZitLa. Chula Med. J. 64, 381–388 (2020).
33. Sakhaee, K. Farmakologie kamenné nemoci. Adv. Chronické onemocnění ledvin. 16, 30–38 (2009).
34. Baumann, JM & Afolter, B. Paradoxní úloha makromolekul v moči při agregaci šťavelanu vápenatého: Další prosba o zvýšení diurézy při metafylaxi konkrementů. Urolitiáza 44, 311–317 (2016).
35. Reddy, AJ a kol. Antikonvulzivní a antioxidační účinky extraktu z kmene Musa sapientum na akutní a chronické experimentální modely epilepsie. Pharmacogn. Res. 10, 49–54 (2018).
36. Jaafar, NF, Ramli, ME & Mohd Salleh, R. Optimální podmínky extrakce Clitorea ternatea fower na antioxidační aktivity, obsah celkových fenolů, celkových flavonoidů a celkových anthokyanů. Trop. Life Sci. Res. 31, 1–17 (2020).
37. Nirmal, NP, Rajput, MS, Prasad, RG & Ahmad, M. Brazilin z Caesalpinia sappan heartwood a jeho farmakologické aktivity: Přehled. Asijský Pac. J. Trop. Med. 8, 421–430 (2015).
38. More-Krong, P. a kol. Klinická validace testu indexu krystalizace oxalátu oxalátu vápenatého (iCOCI) v moči pro diagnostiku urolitiázy oxalátu vápenatého. Sci. Rep. 10, 8334 (2020).
39. Yasui, T. a kol. Účinky citrátu na tvorbu ledvinových kamenů a expresi osteopontinu v modelu krysí urolitiázy. Urol. Res. 29, 50-56 (2001).
40. Ghaeni, FA, Amin, B., Hariri, AT, Meybodi, NT & Hosseinzadeh, H. Antilithiatické účinky crocinu na ethylenglykolem indukovanou litiázu u potkanů. Urolitiáza 42, 549–558 (2014).
41. Holmes, RP & Assimos, DG Glyoxylátová syntéza a její modulace a vliv na syntézu oxalátů. J. Urol. 160, 1617–1624 (1998).
42. Patankar, S., Fanthome, B. & Bhalerao, SS Účinnost herbed plus u urolitických krys: Experimentální studie. J. Ayurveda Integr. Med. 11, 250–255 (2020).
43. Chaiyarit, S. & Tongboonkerd, V. Mitochondriální dysfunkce a onemocnění ledvinových kamenů. Přední Physiol. 11, 566506 (2020).
44. Holoch, PA & Tracy, ČR Antioxidanty a vlastní historie ledvinových kamenů: The National Health and Nutrition Examination Survey. J. Endourol. 25, 1903–1908 (2011).
45. Khan, SR Je oxidační stres spojnicí mezi nefrolitiázou a obezitou, hypertenzí, cukrovkou, chronickým onemocněním ledvin, metabolickým syndromem? Urol. Res. 40, 95–112 (2012).
46. Hirose, M. a kol. Poškození renálních tubulárních epiteliálních buněk a oxidační stres indukují tvorbu krystalů šťavelanu vápenatého v myších ledvinách. Int. J. Urol. 17, 83–92 (2010).
47. Khan, SR Reaktivní formy kyslíku, zánět a nefrolitiáza šťavelanu vápenatého. Přel. Androl. Urol. 3, 256–276 (2014).
48. Boonla, C. a kol. Zánětlivé a fibrotické proteiny proteomicky identifikované jako klíčové proteinové složky v moči a kamenné matrici pacientů s ledvinovými kameny. Clin. Chim. Acta 429, 81–89 (2014).
49. Aggarwal, D., Gautam, D., Sharma, M. & Singla, SK Bergenin zmírňuje poškození ledvin zvrácením mitochondriální dysfunkce v modelu hyperoxalurické krysy vyvolané ethylenglykolem. Eur. J. Pharmacol. 791, 611–621 (2016).
50. Ghodasara, J., Pawar, A., Deshmukh, C. & Kuchekar, B. Inhibiční účinek rutinu a kurkuminu na experimentálně indukovanou kalciumoxalátovou urolitiázu u potkanů. Pharmacogn. Res. 2, 388–392 (2010).
51. Grases, F. a kol. Účinky polyfenolů z hroznových semen na ledvinovou litiázu. Oxid. Med. Buňka. Longev. 2015, 813737 (2015).
52. Cherniack, EP Potenciální vliv rostlinných polyfenolů na proces stárnutí. Forsch Komplementmed. 17, 181–187 (2010).
53. Wood, JG a kol. Aktivátory sirtuinu napodobují kalorickou restrikci a zpomalují stárnutí u metazoanů. Nature 430, 686–689 (2004).
54. Bonkowski, MS & Sinclair, DA Zpomalení stárnutí podle návrhu: Vzestup NAD (plus) a sloučenin aktivujících sirtuin. Nat. Mol. Buňka. Biol. 17, 679–690 (2016).
55. Bhullar, KS & Hubbard, BP Prodloužení životnosti a zdraví pomocí resveratrolu. Biochim. Biophys. Acta. 1852, 1209–1218 (2015).
56. von Frieling, J. & Roeder, T. Faktory, které ovlivňují převod dietního omezení do delšího života. IUBMB Life 72, 814–824 (2020).
57. von Zglinicki, T. Oxidační stres zkracuje telomery. Trends Biochem Sci. 27, 339-344 (2002).
58. Chuenwisad, K. a kol. Předčasná senescence a zkrácení telomer vyvolané oxidačním stresem z oxalátu, monohydrátu šťavelanu vápenatého a moči pacientů s nefrolitiázou šťavelanu vápenatého. Přední. Immunol. 12, 696486 (2021).
59. Hu, Z. a kol. Interakce mezi bylinami a léčivy: Přehled literatury. Drugs 65, 1239–1282 (2005).
60. Susanti, S. & Imannura, P. Vliv extraktu Secang Wood (Ceasalpinia Sappan L.) na morfologii spermií a reverzibilní proces u samců potkanů. In Proceeding in Te 2nd Joint International Conferences. ISBN: 978-602-5842-03-0 (2018).
61. Kim, BS a kol. Caesalpinia sappan indukuje apoptotickou buněčnou smrt v ektopických endometriálních 12Z buňkách potlačením exprese pyruvátdehydrogenázy kinázy 1. Exp. Ter. Med. 21, 357 (2021).
62. Boonla, C., Youngjermchan, P., Pumpaisanchai, S., Tungsanga, K. & Tosukhowong, P. Lithogenní aktivita a klinický význam lipidů extrahovaných z moči a kamenů pacientů s nefrolitiázou. Urol. Res. 39, 9–19 (2011).
63. Kloypan, C., Srisa-art, M., Mutirangura, A. & Boonla, C. LINE-1 hypomethylace vyvolaná reaktivními formami kyslíku je zprostředkována vyčerpáním S-adenosylmethioninu. Cell Biochem. Funct. 33, 375–385 (2015).
64. Whongsiri, P., Phoyen, S. & Boonla, C. Oxidační stres v uroteliální karcinogenezi: Měření karbonylace proteinů a intracelulární produkce reaktivních forem kyslíku. Metody Mol. Biol. 1655, 109–117 (2018).
65. Whongsiri, P. a kol. Oxidační stres a LINE-1 reaktivace u rakoviny močového měchýře jsou epigeneticky spojeny prostřednictvím aktivní tvorby chromatinu. Volný Radic. Biol. Med. 134, 419–428 (2019).
66. Whongsiri, P. a kol. Protein LINE-1 ORF1 je up-regulován reaktivními formami kyslíku a je spojen s progresí uroteliálního karcinomu močového měchýře. Genom rakoviny. Proteom. 15, 143–151 (2018).
67. Reagan-Shaw, S., Nihal, M. & Ahmad, N. Překlad dávky ze studií na zvířatech na člověka. FASEB J. 22, 659–661 (2008).
68. Yasue, T. Histochemická identifikace šťavelanu vápenatého. Acta Histochem. Cytochem. 2, 83-95 (1969).
69. Evan, AP a kol. Randallův plak u pacientů s nefrolitiázou začíná v bazálních membránách tenkých Henleových kliček. J. Clin. Investovat. 111, 607-616 (2003).
70. Prasanth, MI, Santoshram, GS, Bhaskar, JP & Balamurugan, K. Ultraviolet-A spouští fotostárnutí u modelového háďátka Caenorhabditis elegans v dráze závislé na DAF-16. Věk (Dordr) 38, 27 (2016).
71. Brimson, JM, Prasanth, MI, Plaingam, W. & Tencomnao, T. Bacopa monnieri (L.) wettst. Extrakt chrání před toxicitou glutamátu a zvyšuje životnost Caenorhabditis elegans. J. Tradit. Komplex. Med. 10, 460–470 (2020).
72. Prasanth, MI, Brimson, JM, Chuchawankul, S., Sukprasansap, M. & Tencomnao, T. Antiaging, odolnost vůči stresu a neuroprotektivní účinnost Cleistocalyx nervosum var. extrakty z plodů všeléka pomocí modelu Caenorhabditis elegans. Oxid. Med. Buňka. Longev. 2019, 7024785 (2019).
73. Cawthon, RM Měření telomer pomocí kvantitativní PCR. Nucleic Acids Res. 30, e47 (2002).
Poděkování
Studii finančně podpořil Research Gap Fund Ministerstva vědy a technologie, Národní agentura pro vědecký a technologický rozvoj (NSTDA) a Chulalongkorn University (GB-rgf_60_2905_0003 až CB) a Thajský vědecký výzkum a Innovation, Industry Division (RDG6150088 to CB) a Lékařská fakulta, Chulalongkorn University (Matching Fund). NL obdržela 90. výročí univerzitního fondu Chulalongkorn (Ratchadaphiseksomphot Endowment Fund). Autoři vděčně oceňují podporu výzkumu a inovací poskytovanou technologickým centrem Chulalongkorn University a Thajským vědeckým výzkumným a inovačním fondem (TSRI) (CU_FRB640001_01_2). Děkuji slečně Natcha Madared za jejich vynikající pomoc. Buďte vděční personálu ve zvířecím zařízení Lékařské fakulty Univerzity Chulalongkorn. Děkujeme asistentovi Prof. Dr. Sitthichai Ukritchonovi a Prof. Dr. Manathipu Osirimu za jejich podporu použití polarizované mikroskopie.
Autorské příspěvky
NL: Prováděli buněčné a potkaní experimenty a sbírali data. NC: Shromáždil data a pomohl vytvořit myšlenku výzkumu a analýzu dat. MP: Vymyslel a provedl experiment C. elegans a provedl analýzu dat C. elegans. DJ: Pomáhal při imunohistochemických experimentech a zobrazování. CM: Pomohl při řezání tkání. KC: Provedeny experimenty se zkracováním telomer a senescencí. AL: Podařilo se získat přístup do zvířecího zařízení pro pokus s potkany. TT: Pomohli koncipovat a navrhnout experiment C. elegans. CB: Vymyslel a navrhl studii, provedl statistickou analýzu a napsal rukopis. Všichni autoři rukopis recenzovali.
Konkurenční zájmy
CB, NC a NL jsou vynálezci HydroZitLa. Univerzita Chulalongkorn a vynálezci vlastní duševní vlastnictví společnosti HydroZitLa. Žádný z ostatních autorů nemá žádný střet zájmů, který by mohl o této práci prohlásit.
Dodatečné informace
Doplňkové informaceOnline verze obsahuje doplňkový materiál dostupný na webových stránkách.
Korespondencea požadavky na materiály by měly být adresovány CB
Dotisky a informace o oprávněníchje k dispozici na webových stránkách.
Poznámka vydavateleSpringer Nature zůstává neutrální ohledně jurisdikčních nároků v publikovaných mapách a institucionálních přidruženích.
【Další informace:george.deng@wecistanche.com / WhatApp:{0}}】