Dieta s vysokým obsahem fosforu indukuje upregulaci exprese Bmp2 a Spp1 MRNA v ledvinách potkana
Mar 04, 2022
Hiroshi Matsuzaki, Kikue Mori, Shinichi Katsumata
Abychom objasnili mechanismus rozvoje nefrokalcinózy vyvolané dietou s vysokým obsahem fosforu (P), zaměřili jsme se na proteiny související s kostmi, jako je kostní morfogenetický protein 2 a osteopontin. Tato studie zkoumala účinky stravy s vysokým obsahem P na expresi mRNA Bmp2 a Spp1 u potkanůledvina. Krysy Wistar byly rozděleny do dvou skupin a krmeny kontrolní dietou (kontrolní skupina) nebo dietou s vysokým P (skupina s vysokým P).ledvinykoncentrace vápníku a P byly významně zvýšeny ve skupině s vysokým P ve srovnání s kontrolní skupinou. Exprese mRNA Bmp2 i Sppl byla významně zvýšena ve skupině s vysokým P ve srovnání s kontrolní skupinou. Tyto výsledky naznačují, že dieta s vysokým obsahem P indukuje upregulaci Bmp2 a Spp1 mRNA vledvina.
Klíčová slova: dieta s vysokým obsahem fosforu, nefrokalcinóza, Bmp2, Spp1,ledvina, krysa
Pro více informací prosím kontaktujte:emily.li@wecistanche.com
cistanche k léčbě onemocnění ledvin
Úvod
Nefrokalcinóza je onemocnění charakterizované ukládáním vápníku (Ca) v renálním parenchymu. Stěžejním faktorem ve vývoji této poruchy je zejména dietní fosfor (P). Ukázalo se, že podávání diety s vysokým obsahem P má za následek zvýšenou koncentraci Ca vledvinaa ukládání Ca v renálním parenchymu1-6). Ačkoli byl vliv diety s vysokým obsahem P na rozvoj nefrokalcinózy středem zájmu probíhající studie, o mechanismu odpovědném za rozvoj této poruchy je známo jen málo. Proto je potřeba tento problém včas vyřešit.
Uvedli jsme, že při histologickém vyšetření pomocí transmisní elektronové mikroskopie byly v renálních tubulech potkanů krmených dietou s vysokým P6, 7), pozorovány jehličkovité krystaly podobné hydroxyapatitu. Rentgenová mikroanalýza ukázala, že depozita Ca indukovaná dietou s vysokým obsahem P se skládají hlavně z Ca a P7). Tyto výsledky odhalily, že usazeniny Ca vyvolané dietou s vysokým obsahem P jsou formou hydroxyapatitu. Na základě tohoto zjištění předpokládáme, že rozvoj nefrokalcinózy je řízen mechanismem podobným tomu při tvorbě kosti. Proto se tato studie zaměřila na proteiny spojené s kostmi, jako je kostní morfogenetický protein 2 (BMP2). BMP2 je osteogenní faktor, který vykazuje aktivitu indukující osteogenezi8, 9). Je pozoruhodné, že BMP2 byl identifikován jako faktor vyvolávající mimoděložníkostformace10, 11). Předpokládali jsme tedy, že pokud BMP2 hraje důležitou roli v rozvoji nefrokalcinózy, exprese tohoto proteinu vledvinaby byly upregulovány dietou s vysokým P. Cílem této studie bylo zjistit, zda strava s vysokým obsahem P ovlivňuje expresi mRNA Bmp2 vledvina.
Mezitím naše předchozí studie uvedla, že dieta s vysokým obsahem P zvyšuje expresi osteopontinu (OPN) v renálních tubulech pomocí imunohistochemické analýzy, což naznačuje, že OPN se může podílet na vývoji depozit Ca indukovaných dietou s vysokým obsahem P12). Proto jsme zkoumali změny v expresi Sppl mRNA vledvinataké.
Výsledky této studie mohou poskytnout cenné poznatky o mechanismu odpovědném za rozvoj nefrokalcinózy vyvolané dietou s vysokým obsahem P.
Materiály a metody
Zvířata a diety.
Tato studie byla schválena Výborem pro používání zvířat Tokijské zemědělské univerzity a všechna zvířata byla chována v souladu s univerzitními směrnicemi pro péči a používání laboratorních zvířat (č. schválení 300049).
Je důležité poznamenat, že u samic potkanů se nefrokalcinóza rozvine snadněji než u samců potkanů13, 14). Kromě toho jsme uvedli, že dieta s vysokým obsahem P zvyšuje expresi OPN v renálních tubulech samic potkanů12). Tato studie pak použila samice potkanů jako experimentální zvířata. Čtyřtýdenní samice potkanů Wistar (Clea Japan, Tokio, Japonsko) byly umístěny v individuálních klecích z drátěného pletiva z nerezové oceli. Během experimentálního období byly klece umístěny v místnosti s řízeným osvětlením pod 12-h cyklus světla: tma (světlo, 0800-2000 h), teplota 22 ± 1 stupeň a relativní vlhkost 60 procent na 65 procent.
Složení experimentálních diet je uvedeno vTabe 1. Experimentální diety byly připraveny s odkazem na dietu AIN{{0}}G15). Experimentální diety obsahovaly dvě různé koncentrace P (kontrolní dieta, 0,3 procenta; dieta s vysokým obsahem P, 1,5 procenta). Koncentrace P ve stravě s vysokým obsahem P byla nastavena na 1,5 procenta, protože naše předchozí studie zjistily, že koncentrace P ve stravě 1,5 procenta indukuje

těžká nefrokalcinóza6, 7, 12, 14)a vysoká exprese OPN12). Všechny experimentální diety měly stejnou koncentraci Ca (0,5 procenta). Koncentrace P a Ca, jak byly stanoveny analýzou experimentálních diet, jsou uvedeny vTabe 1. Před začátkem studie byly všechny krysy aklimatizovány po dobu 7 dnů, během této doby jim byl umožněn volný přístup ke kontrolní dietě a deionizované vodě. Po aklimatizačním období byly krysy náhodně rozděleny do dvou skupin s podobnou střední tělesnou hmotností a krmeny buď kontrolní dietou (kontrolní skupina) nebo dietou s vysokým P (skupina s vysokým P) po dobu 14 dnů. Potkani měli po celou dobu experimentu volný přístup k přidělené experimentální stravě a deionizované vodě. Na konci experimentálního období byly krysy usmrceny intraperitoneální injekcí anestetické směsi (medetomidin, midazolam a butorfanol) a krve aledvinavzorky byly odebrány pro analýzu. Vzorky krve byly odstředěny a supernatanty byly použity jako vzorky séra. Ledviny byly odstraněny a ledvinové pouzdro bylo zlikvidováno. Sérum aledvinavzorky byly skladovány při teplotě -80 stupňů, dokud nebyly potřebné pro analýzu. Pravá ledvina byla použita pro kvantitativní analýzu Bmp2 a Sppl mRNA a leváledvinabyl použit pro analýzu koncentrací Ca a P.
Analýza minerálů.
Ukázky experimentálních diet aledvinybyly spalovány při 550 stupních po dobu 48 hodin v muflové peci a minerály byly extrahovány v 1 mol/l HCl pro analýzu. Koncentrace Ca v experimentálních dietách aledvinybyly stanoveny atomovou absorpční spektrofotometrií16). Koncentrace P v experimentálních dietách aledvinybyly analyzovány metodou Gomori17).
Kvantitativní analýza Bmp2 a Sppl mRNA.
Celková RNA byla izolována z homogenizované ledviny pomocí činidla TRIzol (Life Technologies, CA, USA) podle specifikací výrobce. Množství a čistota RNA byly hodnoceny pomocí NanoDrop 2000c (Thermo Fisher Scientific, MA, USA). cDNA byla syntetizována pomocí SuperScript III First-Strand Synthesis SuperMix pro qRT-PCR (Life Technologies) a poté podrobena kvantitativní RT-PCR v reálném čase pomocí SYBR Select Master Mix (Life Technologies). Specifické primery18-20)byly použity pro analýzu Bmp2 (dopředu, 5'-ACCGTGCTCAGCTTCCATCAC-3'; reverzní, 5'-TTCCTGCATTTGTTCCCGAAA-3'), Spp1 (dopředu, 5'- TGAGACTGGCAGTGGTTTGC-3'; zpět, 5'-CCACTTTCACCGGGAGACA-3') a Gapdh (vpřed, 5'-TGGGAAGCTGGTCATCAAC-3'; zpět, 5'-GCAT-CACCCCATTTGATGTT{{266}GATGTT{{26} }'). Reakce PCR v reálném čase byla provedena pomocí systému StepOne Real-Time PCR System (Applied Biosystems, CA, USA) a hladiny exprese mRNA byly normalizovány na hladiny mRNA Gapdh. Hodnota kontrolní skupiny byla považována za 1,00.
Statistická analýza.
Výsledky jsou uvedeny jako průměr ± SEM pro každou skupinu 6 krys. Po provedení F-testu pro stanovení homogenity rozptylů byl použit Studentův t-test ke stanovení významných rozdílů mezi těmito dvěma skupinami. Pokud homogenita rozptylů nebyla stejná, byl místo Studentova t-testu použit Welchův t-test. Rozdíly byly považovány za významné při p < 0,05
Výsledek
Tělesná hmotnost, příjem potravy a analýza séra.
Konečná tělesná hmotnost a příjem potravy byly významně sníženy ve skupině s vysokým P ve srovnání s kontrolní skupinou (Stůl 2). ledvinyhmotnost a koncentrace minerálů.ledvinymokré a suché hmotnosti byly významně zvýšeny ve skupině s vysokým P ve srovnání s kontrolní skupinou (Stůl 3). ledvinyKoncentrace Ca a P byly také významně zvýšeny ve skupině s vysokým P ve srovnání s kontrolní skupinou.
Renální Bmp2 a Spp1 mRNA exprese.
Hladiny Bmp2 mRNA ve skupině s vysokým P byly významně zvýšeny ve srovnání s kontrolní skupinou (Obr.1A). Exprese mRNA Sppl byla také významně zvýšena ve skupině s vysokým P ve srovnání s kontrolní skupinou (Obr. 1B).

Diskuse
Jedním z dobře známých fyziologických účinků diety s vysokým obsahem P je rozvoj nefrokalcinózy. V této studii byly koncentrace Ca a P v ledvinách zvýšeny ve skupině s vysokým P ve srovnání s kontrolní skupinou, což je v souladu s výsledky předchozích studií1-6). Předchozí studie uváděly, že histologické skóre nefrokalcinózy pozitivně korelovalo s koncentracemi Ca a P v ledvinách4, 21). Ačkoliv tedy v této studii nebylo provedeno žádné histologické pozorování ledvin, zvýšené koncentrace Ca a P v ledvinách naznačují, že nefrokalcinóza byla vyvolána dietou s vysokým obsahem P.
Protože se depozita Ca vyvolaná dietou s vysokým obsahem P obecně považují za formu hydroxyapatitu6, 7), předpokládali jsme, že vývoj nefrokalcinózy je řízen mechanismem podobným mechanismu osteogeneze. Zkoumali jsme tedy účinky stravy s vysokým obsahem P na expresi mRNA Bmp2 v ledvinách. Výsledky

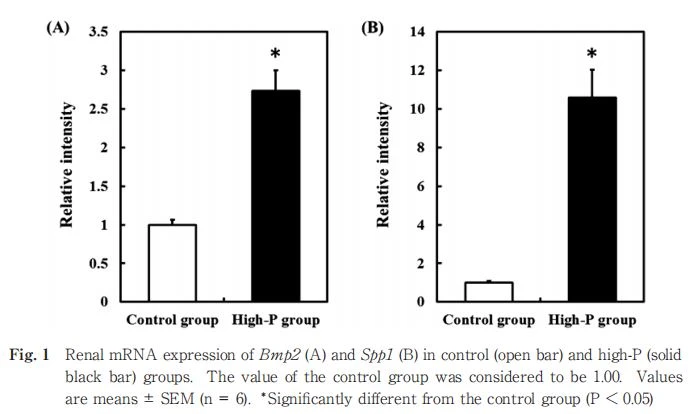
ukázali, že renální exprese Bmp2 mRNA byla zvýšena ve skupině s vysokým P a že dieta s vysokým P indukuje upregulaci exprese Bmp2 mRNA v ledvinách. Toto zjištění může pomoci vysvětlit mechanismus rozvoje nefrokalcinózy vyvolaný dietou s vysokým obsahem P. Ačkoli definitivní důkazy podporující naši hypotézu chybí, jednou z možností je, že exprese osteogenních transkripčních faktorů je zvýšená v kalcifikovaných oblastech ledvin. BMP2 indukuje diferenciaci osteoblastů a tvorbu kosti regulací osteogenních transkripčních faktorů, jako jsou Osterix, Runx2 a Msx28, 9); BMP2 tedy může podporovat nefrokalcinózu prostřednictvím regulace takových osteogenních transkripčních faktorů. V současné době zůstává podrobná role BMP2 v rozvoji nefrokalcinózy nejasná. Kromě toho, protože v této studii byla měřena pouze exprese mRNA Bmp2, není známo, zda existuje rozdíl v expresi proteinu BMP2. Naše výsledky však naznačují možný mechanismus, kterým změny v expresi BMP2 hrají silnou roli v patogenezi nefrokalcinózy vyvolané dietou s vysokým obsahem P.
Tato studie se kromě exprese Bmp2 mRNA zaměřila na expresi Sp1 mRNA. Naše předchozí studie využívající imunohistochemickou analýzu ukázala vysoké hladiny exprese OPN v renálních tubulech potkanů krmených dietou s vysokým P12). Tato studie zjistila, že exprese Spp1 mRNA byla zvýšena přibližně 10-krát ve skupině s vysokým P. Výsledky současných a předchozích studií ukazují, že dieta s vysokým obsahem P indukuje expresi OPN v ledvinách. Na druhou stranu jiní vědci prokázali, že OPN jako kamenná matrice je důležitým faktorem při tvorbě močových kamenů22, 23); naše předchozí zpráva tedy naznačila, že OPN může hrát roli jako matricová složka při tvorbě depozit Ca2 vyvolaných dietou s vysokým obsahem P12). Nicméně Paloian a kol. nedávno oznámili, že OPN hraje roli v prevenci nefrokalcinózy vyvolané dietou s vysokým P u myší OPN KO24). Konkrétně se zdá, že fyziologická úloha OPN na nefrokalcinózu vyvolanou dietou s vysokým obsahem P je spíše supresí než podporou kalcifikace vledvina. Kromě toho jsou v předchozích zprávách popsány, že hladiny OPN se zvyšují, aby kompenzovaly další patologickou ektopickou kalcifikaciledvinaa vaskulatura, protože OPN je upregulován v místě patologické kalcifikace.
Jak bylo uvedeno výše, tato studie naznačila význam BMP2 a OPN u nefrokalcinózy vyvolané dietou s vysokým P. Je pozoruhodné, že se předpokládá, že účinky BMP2 a OPN na rozvoj nefrokalcinózy jsou regulovány různými mechanismy. Tyto mechanické rozdíly mohou naznačovat, že základní mechanismus nefrokalcinózy je komplikovaný. Dalším bodem, který je třeba vzít v úvahu, je, že inhibice růstu mohla ovlivnit expresi mRNA Bmp2 a Sppl vledvinaprotože tato studie pozorovala snížení konečné tělesné hmotnosti ve skupině s vysokým P. Pozorování v našich předchozích12) a současných studiích mohou pomoci vysvětlit tento bod. Již dříve jsme uváděli zvýšenou expresi proteinu OPN v renálních tubulech krys, jejichž růst
nebyla inhibována dietou s vysokým P12). Kromě toho tato studie ukázala inhibici růstu ve skupině s vysokým P, ale vysoké hladiny exprese Sppl mRNA v ledvinách. Na základě těchto pozorování se zdá, že tato studie má malý účinek na inhibici růstu Bmp2 a Sppl mRNA exprese. Podrobnosti vztahu mezi inhibicí růstu a expresí genů Bmp2 a Sp1 však zůstávají nejasné. K objasnění tohoto bodu jsou proto zapotřebí další výzkumy.
Abychom objasnili mechanismus rozvoje nefrokalcinózy indukované dietou s vysokým obsahem P, tato studie stanovila účinky diety s vysokým obsahem P na expresi Bmp2 a Spp1 mRNA vledvina. Koncentrace Ca a P v ledvinách byly významně zvýšeny ve skupině s vysokým P ve srovnání s kontrolní skupinou. Dále, mRNA exprese Bmp2 a Sppl byla významně zvýšena ve skupině s vysokým P ve srovnání s kontrolní skupinou. Tyto výsledky naznačují, že dieta s vysokým obsahem P podporuje upregulaci exprese mRNA Bmp2 a Sp1 vledvina.
Reference
1) Hitchman AJ, má nějakou SA, Hitchman A, Harrison JE, Tam C: Kalcifikace ledvin u potkanů vyvolaná fosfáty. Can J Physiol Pharmacol 57: 92-97, 1979
2) Parker HE: Vzájemné vztahy hořčíku a fosforu při dostatečné hladině fosforu ve stravě. Nutr Rep Int 32: 1311-1318, 1985
3) Ritskes-Hoitinga J, Lemmens AG, Danse LHJC, Beynen AC: Fosforem indukovaná nefrokalcinóza a funkce ledvin u samic potkanů. J Nutr 119: 1423-1431, 1989
4) Cockell KA, L'Abbe MR, Belonje B: Koncentrace a poměr vápníku a fosforu v potravě ovlivňují rozvoj nefrokalcinózy u samic potkanů. J Nutr 132: 252-256, 2002
5) Katsumata S, Matsuzaki H, Uehara M, Suzuki K: Účinky suplementace vápníku ve stravě na metabolismus kostí, koncentraci minerálů v ledvinách a funkci ledvin u potkanů krmených stravou s vysokým obsahem fosforu. J Nutr Sci Vitaminol 61: 195-200, 2015
6) Matsuzaki H, Uehara M, Suzuki K, Liu QL, Sato S, Kanke Y, Goto S: Dieta s vysokým obsahem fosforu rychle vyvolává nefrokalcinózu a poškození proximálních tubulů u potkanů. J Nutr Sci Vitaminol 43: 627-641, 1997
7) Liu QL, Sato S, Kishikawa T, Matsuzaki H, Yamanaka N: Účinnost tradiční čínské medicíny, Wulingsan, při potlačování rozvoje nefrokalcinózy vyvolané dietou s vysokým obsahem fosforu u mladých potkanů. Med Electron Microsc 34: 103-114, 2001
8) Sirard C, Kim S, Mirtsos C, Tadich P, Hoodless PA, Its A, Maxson R, Wrana JL, Mak TW: Cílené narušení v myších buňkách odhaluje proměnlivý požadavek na Smad4 v signalizaci související s transformujícím růstovým faktorem. J Biol Chem 275: 2063-2070, 2000
9) Matsubara T, Kida K, Yamaguchi A, Hata K, Ichida F, Meguro H, Aburatani H, Nishimura R, Yoneda T: BMP2 reguluje Osterix prostřednictvím Msx2 a Runx2 během diferenciace osteoblastů. J Biol Chem 283: 29119-29125, 2008
10) Urist MR: Kost: Tvorba autoindukcí. Science 150: 893-899, 1965
11) Wozney JM, Rosen V, Celeste AJ, Mitsock LM, Whitters MJ, Kriz RW, Hewick RM, Wang EA: Nové regulátory tvorby kostí: Molekulární klony a aktivity. Science 242: 1528-1534, 1988
12) Matsuzaki H, Katsumata S, Uehara M, Suzuki S, Miwa M: dieta s vysokým obsahem fosforu indukuje expresi osteopontinu v renálních tubulech u potkanů. J Clin Biochem Nutr 41: 179-183, 2007
13) Cousins FB, Geary CPM: Kalcifikace ledvin u potkanů podmíněná pohlavím. Nature 211: 980-981, 1966
14) Matsuzaki H, Katsumata S, Masuyama R, Uehara M, Nakamura K, Suzuki K: Pohlavní rozdíly v koncentracích minerálů v ledvinách a vylučování albuminu močí u potkanů, kterým byla podávána strava s vysokým obsahem fosforu. Biosci Biotechnol Biochem 66: 1737-1739, 2002
15) Reeves PG, Nielsen FH, Fahey GC Jr: AIN-93 purifikované diety pro laboratorní hlodavce: Závěrečná zpráva Amerického institutu pro výživu ad hoc pro psaní AIN-76diety pro hlodavce . J Nutr 123: 1939-1951, 1993
16)Gimblet EG, Marney AF, Bonsnes RW: Stanovení vápníku a hořčíku v séru, moči, stravě a stolici atomovou absorpční spektrofotometrií. Clin Chem 13: 204-214, 1967
17)Gomori G: Modifikace kolorimetrického stanovení fosforu pro použití s fotoelektrickým kolorimetrem. J Lab Clin Med 27: 955-960, 1942
18) Ming LG, Lv X, Ma XN, Ge BF, Zhen P, Song P, Zhou J, Ma HP, Xian CJ, Chen KM: Prenylová skupina přispívá k aktivitám fytoestrogenu 8-prenynaringeninu při posilování tvorby kostí a inhibici kostní resorpce in vitro. Endocrinology 154: 1202-1214, 2013
19)Kreke MR, Huckle WR, Goldstein AS: Proudění tekutin stimuluje expresi osteopontinu a kostního sialoproteinu buňkami stromatu kostní dřeně časově závislým způsobem. Kost 36: 1047-1055, 2005
20)Drechsler J, Grotzinger J, Hermanns HM: Charakterizace krysího onkostatinového receptorového komplexu M, který se podobá lidskému, ale liší se od myšího cytokinového receptoru. PLoS One 7: e43155, 2012
21)Hoek AC, Lemmens AG, Mullink JWMA, Beynen AC: Vliv poměru vápníku a fosforu ve stravě na vylučování minerálů a nefrokalcinózu u samic potkanů. J Nutr 118: 1210-1216, 1988
22) Kohri K, Suzuki Y, Yoshida K, Yamamoto K, Amasaki N, Yamate T, Umekawa T, Iguchi M, Shinohara H, Kurita T: Molekulární klonování a sekvenování cDNA kódující protein močového kamene, který je identický s osteopontinem. Biochem Biophys Res Commun 184: 859-864, 1992
23)Kohri K, Nomura S, Kitamura Y, Nagata T, Yoshioka K, Iguchi M, Yamate T, Umekawa T, Suzuki Y, Shinohara H, Kurita T: Struktura a exprese mRNA kódující protein močového kamene (Osteopontin). J Biol Chem 268: 15180-15184, 1993
24)Paloian NJ, Leaf EM, Giachelli CM: Osteopontinové protesty proti nefrokalcinóze vyvolané vysokými fosfáty a vaskulární kalcifikaci. Kidney Int 89: 1027-1036, 2016
25)Giachelli CM, Bae N, Almeida M, Denhardt DT, Alpers CE, Schwartz SM: Osteopontin je zvýšen během tvorby neointimy v krysích tepnách a je novou složkou lidských aterosklerotických plátů. J Clin Invest 92: 1686-1696, 1993