Gossypitrin, přirozeně se vyskytující flavonoid, zmírňuje poškození neuronů a mitochondrií vyvolané železem, část 1
Mar 16, 2022
Prosím kontaktujteoscar.xiao@wecistanche.comPro více informací
Abstraktní:Narušení homeostázy železa je důležitým faktorem při ztrátě mitochondriální funkce v nervových buňkách, což vede k neurodegeneraci. Zde jsme hodnotili ochranný účinek gossypitrinu (Gos), přirozeně se vyskytujícího flavonoidu, na poškození neuronových buněk vyvolané železem pomocí myších hipokampálních HT-22 buněk a mitochondrií izolovaných z mozků potkanů. Gos byl schopen zachránit buňky HT22 před poškozením vyvolaným 100 uM Fe()-citrátem (EC50 8,6 uM). Tato ochrana byla spojena s prevencí jak železem indukované disipace mitochondriálního membránového potenciálu, tak deplece ATP. V izolovaných mitochondriích vyvolal Gos (50 uM) téměř úplnou ochranu proti mitochondriálnímu otoku vyvolanému železem, ztrátě mitochondriálního transmembránového potenciálu a depleci ATP. Gos také zabránil Fe(Ⅱ)-citrátem indukované mitochondriální lipidové peroxidaci s hodnotou ICso (12,45 μM), která byla asi devětkrát nižší než u terc-butylhydroperoxidem indukovanéoxidace. Kromě toho byl flavonoid účinný při inhibici degradace jak 15, tak 1,5 mM 2-deoxyribózy. S časem také snižoval koncentraci Fe(II), zatímco zvyšoval spotřebu O2 a zhoršoval redukci Fe(II) askorbátem. Komplexy Gos-Fe(I) byly detekovány UV-VIS a IR spektroskopií se zjevnou stechiometrií Gos-železo 2:1. Výsledky naznačují, že Gos obecně nepůsobí jako klasický antioxidant, ale přímo ovlivňuje železo tím, že jej udržuje ve železité formě po stimulaci oxidace Fe(II). Kovové ionty by se proto nemohly zúčastnit reakce Fentonova typu a fáze propagace peroxidace lipidů. Gos by tedy mohl být použit k léčbě neuronálních onemocnění spojených s oxidativním stresem vyvolaným železem a poškozením mitochondrií.
klíčová slova: gossypitrin; žehlička; HT-22 buňky; mitochondrie;neurodegenerace; neuroprotekce
1. Úvod
Železo je nezbytným kofaktorem v mnoha klíčových biologických procesech, jako je syntéza a obnova DNA, transport kyslíku, buněčné dýchání, metabolismus xenobiotik a syntéza hormonů [1. Na vysokých intracelulárních úrovních však může zvýšit buněčné reaktivní formy kyslíku s modifikací buněčných redoxních potenciálů [2,3]. Dyshomeostáza železa je pozorována téměř u každého neurologického stavu, jako je Parkinsonova choroba (PD), Alzheimerova choroba (AD), Huntingtonova choroba (HD), roztroušená skleróza, Friedreichova ataxie, epilepsie, syndrom neklidných nohou a mrtvice [4,5]. Zejména u intracerebrálního krvácení, kde dochází k prasknutí mikrovaskulatury a uvolněná krev způsobuje expozici nervových buněk železem z krve, jsou hlavními mechanismy neurodegenerace železem a hemem indukovaná produkce ROS, zánět a excitotoxicita [6] ,7]. Experimentální modely mozkového krvácení in vitro a in vivo prokázaly přítomnost feroptózy, formy regulované nekrózy závislé na železe [8]. Kromě toho přibývající důkazy naznačují, že narušení homeostázy železa je zásadní pro ztrátu mitochondriální funkce v nervových buňkách [9,10], což by následně mohlo vést k neurodegeneraci [11-14. Nedávno byl popsán vztah mezi časným nástupem formy Parkinsonovy choroby s dysregulací metabolismu železa a mitochondriální poruchou [15]. Koexistence relativně vysokého množství železa a ROS v mitochondriálních kompartmentech činí tuto organelu citlivou k poškození zprostředkovanému hydroxylovými radikály. Farmakologická činidla zaměřující se na regulaci mozkového železa a na mitochondriální poškození zprostředkované železem mohou být proto terapeuticky užitečná proti neurodegeneraci. Bylo zjištěno, že několik činidel chelatujících železo vykazuje neuroprotektivní účinky v různých experimentálních modelech [16-19]. Na druhé straně existuje mnoho zpráv o neuroprotektivním potenciálu přirozeně se vyskytujících polyfenolů v důsledku jejich antioxidačních účinků založených na kombinaci chelace železa a aktivit vychytávání volných radikálů [20,21]. Naše skupina pozorovala, že polyfenoly obsahující katechol, jako je mangiferin, guttiferon-A a rapanon, interagují se železem in vitro i in vivo, čímž anulují jeho katalytickou roli při podpoře ROS [22-28]. Nedávno jsme také uvedli silné antioxidační účinky gossypitrinu (Gos), přirozeně se vyskytujícího flavonoidu (obrázek 1), což naznačuje jeho potenciální použití jako neuroprotektivního činidla [29]. Nicméně o mechanismech podílejících se na těchto antioxidačních účincích je známo jen málo. Přítomnost planárního šestičlenného cyklického systému s delokalizací elektronů, katecholovou skupinou a třemi dalšími aromatickými hydroxylovými skupinami (dvě z nich sousedící s karbonylovou skupinou) silně naznačuje, že tato molekula by mohla působit jako činidlo chelatující železo, protože tyto jsou strukturní rysy, které podporují chelaci železa flavonoidy 30]. Účelem této studie je tedy vyhodnotit schopnost Gos chránit HT-22neuronální buňkya izolované mitochondrie krysího mozku z železem zprostředkovanéhooxidační poškození. Pro další charakterizaci povahy interakce Gos-železo byly provedeny další studie v systémech bez buněk/mitochondrií.

2. Výsledky
2.1. Gos zachraňuje HT-22 buňky před buněčnou smrtí vyvolanou Fe(I).
Fe(II) (100 μM) snížilo přežití HT-22 buněk na 17,4 procenta po 24 hodinách expozice, jak bylo odhadnuto pomocí testu MTT. Gos zabránil smrti hipokampálních buněk způsobem závislým na dávce. EC50 byla 8,64 ± 1,58 μM (obrázek 2A, vložka). Úplná ochrana buněk byla pozorována se 100 μM Gos byl účinnější než Trolox (500 uM), dobře známý antioxidant rozpustný ve vodě, který zabránil buněčné smrti o 74 procent.
Expozice HT-22 železu po dobu 2 hodin (před provedením buněčné smrti) vyvolala disipaci mitochondriálního membránového potenciálu, jak se odhaduje na základě retence rhodaminu 123 v organelách (obrázek 2B) a deplece ATP (obrázek 2C ). To naznačuje možnou souvislost mezi toxickými železem zprostředkovanými účinky na mitochondrie a životaschopností buněk. Gos zabránil železem indukovanému poškození mitochondrií v závislosti na dávce podle vzorců životaschopnosti neuronů, které ukázaly, že může zabránit železem indukované smrti HT-22 buněk prostřednictvím mitochondriální ochrany.
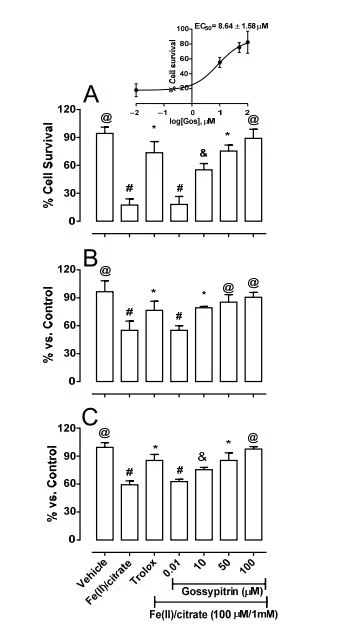
Obrázek 2.Ochrana Gos před poškozením neuronových buněk vyvolaným železem. Účinky Gos na přežití hipokampálních neuronů u HT-22 myší (A), buněčný mitochondriální membránový potenciál (B) a hladiny buněčného ATP(C). Gos (0-100 μM) nebo Trolox (500 μM) byly společně inkubovány po dobu 24 hodin (životaschopnost) nebo 2 h (potenciál mitochondriální membrány a hladiny ATP) se 100 μM FeCl2/ 1 mM citrát. Podmínky testu jsou popsány v části 4. Poškozené kontrolní buňky (bez Gos) obsahovaly DMSO (0,001 procenta) plus směs citrátu železa. Výsledky jsou vyjádřeny jako procento buněčné smrti ve vztahu k nepoškozené kontrole (obsahující DMSO 0,001 procenta jako vehikulum). Hodnoty jsou průměry ± SD ze tří různých experimentů. Různé symboly označují statistické rozdíly na str<0.05 when="" comparing="" all="" pairs="" of="" experimental="" groups="" according="" to="" the="" anova="" and="" post="" hoc="" newman-keuls="" tests.="" (if="" the="" symbols="" are="" different="" among="" groups="" indicate="" statistical="" differences,="" when="" they="" are="" equal,="" there="" is="">

Cistanche může zlepšit imunitu
2.2. Gos Rescues Rat-Brain Mitochondria from Iron-Induced Mitochondrial Lipoperoxidation Brain mitochondria incubated with Fe()-citrate (50 μM) underwent a marked lipoperoxidation expressed by an increase in the formation of the thiobarbituric acid reactive substance(Figure 3A). Gos inhibited the iron-mediated mitochondrial lipid peroxidation in a concentration-dependent manner (IC50 value of 12.45±1.24 μM) (Figure 3A, inset). The effects of Gos on tert-butyl hydroperoxide(300 μM)-induced mitochondrial lipid peroxidation(IC50 value>100 μM) ukazuje, že je účinnější v prevenci peroxidace lipidů vyvolané železem než peroxidace lipidů vyvolané peroxylem, což naznačuje jeho schopnost působit přímo na železo (obrázek 3B).
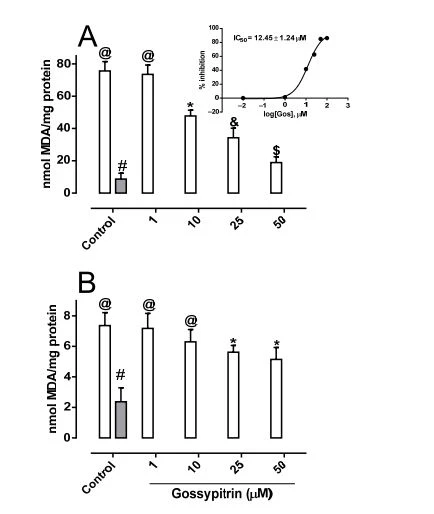
Obrázek 3. Gos inhibuje tvorbu malondialdehydu v mitochondriích, indukovanou 50 uM Fe()-citrátem (A) nebo 300 μM terc-butylhydroperoxidem (B). Mitochondrie potkaního mozku (1 mg/ml) byly inkubovány v reakčním médiu obsahujícím 125 mM sacharózu, 65 mM KCl, 10 mM HEPES pufr (pH 7,4), 2 mM sukcinát a 2,5 uM rotenonu, s nebo bez Gos ({{14}) uM). Experimenty začaly přidáním 50 μM Fe(II) nebo 300 μM terc-butylhydroperoxidu, kromě nepoškozené kontroly (šedé sloupce). Inkubační doba byla 20 minut při 28 °C. Hodnoty jsou průměry ±SD (n=6). Různé symboly označují statistické rozdíly na str<0.05 when="" comparing="" all="" experimental="" groups="" according="" to="" the="" anova="" and="" posthoc="" newman-keuls="" tests.="" (if="" the="" symbols="" are="" different="" among="" groups="" indicate="" statistical="" differences,="" when="" they="" are="" equal,="" there="" is="">
2.3. Gos zabraňuje mitochondriálnímu otoku zprostředkovanému železem a úbytku ATP

Obrázek 4A ukazuje, že 50μM Fe(I)-citrátový komplex vyvolal mitochondriální otok, jak je vyjádřeno snížením absorbance při 540nm (čára f versus čára a). Bylo to spojeno se spontánní a úplnou depolarizací △Y (obrázek 4B, čára versus čára a) a deplecí ATP (obrázek 4C, sloupec Fe()/citrát). Gos inhiboval proces bobtnání vyvolaný železem a disipaci AY způsobem závislým na koncentraci (obrázek 4A, B čáry). Hodnoty absorbance (průměr ± SD po 7 minutách) z panelu A byly: 0,482±0.013 (řádek a), 0,459± { {23}}.011 (řádek b),0,445± 0.007 (řádek c),0,435±0,015( čára d), 0,360 ± 0,011 (čára e) a 0,338 ± 0,012 (čára f). Hodnoty fluorescence z panelu B (průměr ± SD po 7 minutách) byly 15,03 ± 1,71 (řádek a), 19,41 ± 2,07 (řádek b), 22,29 ± 2,58 (řádek c), 45,505 ± 4,47 (řádek d), 118,468 ± 5,76 (přímka e) a 146,201±5,83 (přímka f). Byly zjištěny statisticky významné rozdíly mezi přímkou f a ostatními čarami, na p<0.05. the="" naturally="" occurring="" flavonoids="" also="" prevented="" iron-mediated="" atp="" depletion="" in="" a="" concentration-dependent="" manner(figure="" 4c).="" a="" strong="" interaction="" of="" gos="" with="" iron="" is="" suggested="" as="" the="" key="" mechanism="" for="" neuroprotection="" against="" iron-induced="" damage,="" both="" in="" ht-22="" neuronal="" cells="" and="" in="" brain="" mitochondria.="" to="" further="" characterize="" this="" gos-iron="" interaction,="" different="" experiments="" on="" a="" cell/mitochondria-free="" system="" were="">
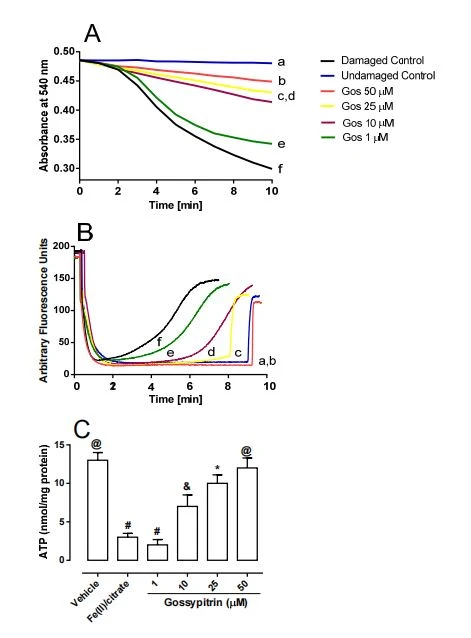
Obrázek 4. (A) Indukce přechodu mitochondriální permeability, (B)ztráta potenciálu mitochondriální membrány (AH) a (C) snížení hladin ATP vyvolané 50 μM Fe(II)-citrátem. A byla odhadnuta pomocí fluorescenční sondy safranin (5 uM). Inhibiční účinky Gos 50, 25, 10 a 1 μM jsou uvedeny v řádcích (b), (c), (d) a (e). Čáry (a) a (f) představují nepoškozené ovládací prvky (bez železa) a poškozené ovládací prvky (bez Gos). V místech označených šipkami byly přidány mitochondrie krysího mozku (RBM-0,5 mg/ml), Fe(II) a 1 μM CCCP. Různé symboly v grafu(C)označují statistické rozdíly atp<0.05 when="" comparing="" all="" pairs="" of="" experimental="" groups="" according="" to="" the="" anova="" and="" post="" hoc="" newman-keuls="" tests.(if="" the="" symbols="" are="" different="" among="" groups="" indicate="" statistical="" differences,="" when="" they="" are="" equal,="" there="" is="">
2.4. Gos indukuje Fe(II)-citrát autooxidaci a O, spotřebu
Gos snížil koncentraci Fe() (1-min předinkubace) v reakčním médiu obsahujícím 2 mM citrát (bez mitochondrií) způsobem závislým na dávce (obrázek 5A, černé kroužky). 5-min preinkubační doba (Obrázek 5A, červené rámečky) ještě více snížily koncentraci Fe(II). Gos také zvýšil rychlost spotřeby O2, pravděpodobně v důsledku oxidace Fe(ll) na Fe(ⅡII) (obrázek 5B,C). Tyto výsledky naznačují, že Gos by mohl odstraňovat Fe(II) z citrátového komplexu a oxidovat jej na železitou formu v procesu, který vyžaduje O2 jako akceptor elektronů. V souladu s tím by Gos mohl bránit tvorbě "OH radikálů inaktivací Fe (II) nezbytného pro reakci Fenton-Haber-Weissova typu, která může iniciovat peroxidaci lipidů mitochondriální membrány.
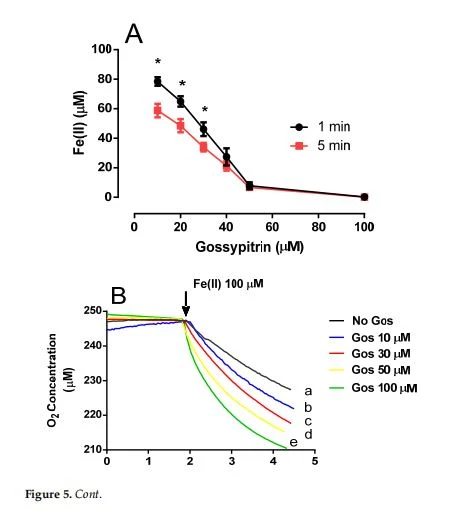
Obrázek 5. (A)Gos stimuluje autooxidaci Fe(Ⅲl) v nepřítomnosti mitochondrií krysího mozku ve standardním médiu doplněném 1 mM citrátem a 5 mM1,10-fenantrolinu.1,10-fenantrolinu přidány 1 nebo 5 minut po inkubační době Gos-Fe(II) a absorbance byly odečteny při 510 nm. Hodnoty jsou průměrem tří stanovení. * statistický rozdíl na str<0.05 when="" comparing="" 1="" vs.="" 5min="" incubation.="" (b)effects="" of="" gos="" on="" o,="" consumption="" mediated="" fe(il)="" autoxidation="" in="" a="" standard="" medium="" supplemented="" with="" 1="" mm="" citrate="" under="" the="" following="" conditions:(a)="" no="" gos,(b)10="" um="" gos,="" (c)="" 30μm="" gos,="" (d)50="" μm="" gos,and="" (e)100μm="" gos.="" fe(ii)="" (50μm)="" was="" added="" where="" indicated="" by="" the="" arrow.="" results="" are="" representative="" of="" three="" experiments.="" (c)="" oxygen="" consumption="" rate="" (nmol="" o2/min/ml)1="" min="" after="" fe()="" addition.legends="" are="" the="" same="" as="" in(b).="" different="" symbols="" indicate="" statistical="" differences="" at=""><0.05 when="" comparing="" all="" pairs="" of="" experimental="" groups="" (in="" the="" same="" cell="" type)="" according="" to="" the="" anova="" and="" post="" hoc="" newman-keuls="" tests.="" (if="" the="" symbols="" are="" different="" among="" groups="" indicate="" statistical="" differences,="" when="" they="" are="" equal,="" there="" is="">
Tento článek je extrahován z Molecules 2021, 26, 3364. https://doi.org/10.3390/molecules26113364 https://www.mdpi.com/journal/molecules