Návrh, syntéza a antimelanogenní účinky derivátů (2-substituovaného fenyl-1,3-dithiolan-4-yl)methanolu
Mar 22, 2022
Kontakt: Audrey Hu Whatsapp/hp: 0086 13880143964 E-mail:audrey.hu@wecistanche.com
Do Hyun Kim1Su Jeong Kim1Sultan Ullah1Hwi Young Yun1Pusoon Chun2Hyung Ryong Moon1
Abstraktní:Autoři navrhli a syntetizovali 17 derivátů (2-substituovaný fenyl-1,3-dithiolan-4-yl)methanol (PDTM) za účelem nalezení nového chemického lešení, které vykazuje vynikajícíinhibitory tyrosinázyaktivita. Jejich aktivity inhibující tyrosinázu byly hodnoceny proti houbové tyrosináze při 50 μM a bylo zjištěno, že pět z derivátů PDTM (PDTM3, PDTM7–PDTM9 a PDTM13) inhibuje houby.tyrosinázavíce než kyselina kojová nebo arbutin, pozitivní kontroly. Ze sedmnácti PDTM vykazoval PDTM3 (polovina maximální inhibiční koncentrace 13,94±1,76 μM) s 2,4-dihydroxyfenylovou skupinou největší inhibiční účinky (poloviční maximální inhibiční koncentrace kyseliny kojové 18.86± 2,14 uM). Je zajímavé, že sloučeniny PDTM bez hydroxylové skupiny, PDTM7–PDTM9, měly také silnější inhibiční aktivity než kyselina kojová. In silico studie interakcí mezi tyrosinázou a pěti PDTM naznačovaly, že jejich vazebné afinity úzce souvisely s jejich inhibičními aktivitami vůči tyrosináze. Experimenty na buňkách provedené s použitím buněk melanomu myší kůže B16F10 ukázaly, že PDTM3 účinně inhibovalmelanogenezea buněčnétyrosinázaaktivita. Studie buněčné životaschopnosti provedená s použitím buněk B16F10 ukázala, že antimelanogenní účinek PDTM3 nelze připsat jeho cytotoxicitě. Kinetické studie ukázaly, že PDTM3 kompetitivně inhibuje tyrosinázu, což ukazuje na vazbu k aktivnímu místu tyrosinázy. Zjistili jsme, že PDTM3 s novým chemickým lešením by mohl být slibným kandidátem na činidla pro bělení kůže a že 1,3-dithiolanový kruh by mohl být použit jako chemický skelet pro silnou inhibici tyrosinázy.klíčová slova:inhibitor tyrosinázy, melanogeneze, 1,3-dithiolan, PDTM

Cistanche je inhibitor tyrosinázy.
Úvod
Za posledních několik desetiletí,inhibitory tyrosinázybyly velmi zajímavé kvůli klíčové roli, kterou hraje tyrosinázamelanogeneze. Melanin se vyrábí kombinací enzymaticky katalyzovaných a chemických reakcí. Biosyntetická dráha zodpovědná za produkci melaninu byla původně objasněna Raper1 a Mason2 a nedávno upravena Cooksey et al3 a Schallreuter et al.4 Melanogeneze je iniciována enzymem tyrosinázou, která katalyzuje první dva oxidační kroky v biosyntetické cestě melaninu: oxidace l-tyrosinu na l-dopa a následně l-dopa na l-dopachinon (obrázek 1). Tyto dva kroky jsou také kroky určující rychlost v biosyntéze melaninu, protože fyziologické pH může spontánně pokračovat v dalších krocích.5 Dopachinon produkovaný ve druhém kroku je glutathionem nebo cysteinem přeměněn na cysteinyldopu a nakonec na feomelanin, který je zodpovědný za žlutou až červené barvy kůže savců nebo na dopachrom autooxidací a nakonec eumelanin, který je zodpovědný za hnědé/černé barvy kůže savců (obrázek 1). Melanin chrání lidskou pokožku před škodlivým ultrafialovým zářením a také určuje fenotypový vzhled. Na druhé straně nadměrné hromadění melaninu v kůži může způsobit onemocnění spojená s hyperpigmentací a kosmetické problémy, jako jsou pihy, melasma a senilní lentiginy.
tyrosinázaje široce rozšířen v bakteriích, houbách, hmyzu, rostlinách a zvířatech, včetně člověka, a je zodpovědný za barvu lidské kůže a vlasů a nežádoucí hnědnutí ovoce a zeleniny.6 Nežádoucí enzymatické hnědnutí a onemocnění spojená s hyperpigmentací v kůži povzbudili vědce, aby hledali nové účinné inhibitory tyrosinázy pro použití jako činidla pro bělení kůže a proti zhnědnutí. Mnohoinhibitory tyrosinázybyly dosud objeveny,7–9, ale relativně málo jich bylo schváleno jako materiály pro bělení kůže kvůli obavám o bezpečnost nebo slabým bělícím účinkům.
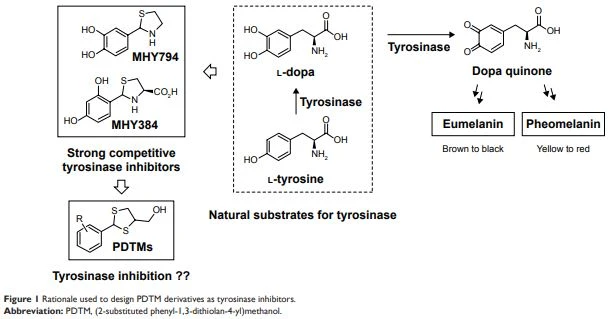
V našich předchozích studiích jsme na základě struktur l-tyrosinu a l-dopa, přirozených substrátů tyrosinázy, navrhli dva potenciální inhibitory tyrosinázy s thiazolidinovým kruhem (MHY384 a MHY794; obrázek 1) a syntetizovali jsme je kondenzací vhodného benzaldehyd a l-cystein nebo cysteamin hydrochlorid. Tyto dvě sloučeniny byly identifikovány jako silně konkurenčníinhibitory tyrosinázya účinně snižovat melanogenezi u myší bez srsti HRM2.10,11 Kromě přímé inhibice aktivity tyrosinázy inhibovala MHY384 expresi tyrosinázy potlačením cest cyklického adenosinmonofosfátu–PKA10 a NO-indukovaného cyklického guanosinmonofosfátu–PKG12,13, a také potlačila MHY794tyrosinázaexprese indukovaná NO-zprostředkovanoumelanogenezesignalizace.11Tyto pozitivní výsledky a skutečnost, že dvojmocný –S– je klasickým izosterem dvojmocného –NH– nás povzbudil k syntéze derivátů s dithiolanovým kruhem jako náhradou za thiazolidinový kruh běžně existující v MHY384 a MHY794, abychom našli nové inhibitory tyrosinázy.
V této studii, jako součást našeho pokračujícího úsilí o nalezení nového a silného chemického skafoldu pro inhibici tyrosinázy a vývoj novýchinhibitory tyrosinázysyntetizovali jsme třídu strukturně nových derivátů (2-substituovaný fenyl-1,3-dithiolan-4-yl)methanol (PDTM) (obrázek 1) a zkoumali jsme jejich antimelanogenní účinky pomocí houbová tyrosináza a testy založené na buňkách. V této studii byly kyselina kojová a arbutin použity jako pozitivní kontrola inhibiční aktivity tyrosinázy, protože kyselina kojová je jednou z nejčastěji používaných pozitivních kontrol pro hodnocení inhibice tyrosinázy a arbutin se klinicky používá jako bělící činidlo.
Materiály a metody
Materiály
Pokud není uvedeno jinak, všechna komerčně dostupná činidla – l-tyrosin (kód T3754), l-dopa (kód PHR1271), kyselina kojová (kód K3125), MTT (3-(4,5-dimethyl{{ 8}}thiazolyl)-2,5-difenyl-2H-tetrazoliumbromid) (kód M2128), PMSF (fenylmethylsulfonylfluorid) (kód P7626), Triton X-100 ( 4-(1,1,3,3-tetramethylbutyl)fenylpolyethylenglykol) (kód T8787), hydrogenfosforečnan draselný (kód P9666), dihydrogenfosforečnan draselný (kód PHR1330), 2,3- dimerkapto-1-propanol (kód 64046), 1,{29}}dioxan (kód 296309), kyselina sírová (kód 339741) a benzaldehydy – byly zakoupeny od společnosti Sigma-Aldrich (St Louis, MO, USA). Fetální bovinní sérum, Dulbecco's Modified Eagle's Medium, fosfátem pufrovaný fyziologický roztok (PBS), penicilin, streptomycin a trypsin byly zakoupeny od Thermo Fisher Scientific (Waltham, MA, USA). Houbatyrosináza(kód T3824) a -melanocyty stimulující hormon (-MSH; kód M4135) byly také zakoupeny od Sigma-Aldrich. Spektra 1H a 13C nukleární magnetické rezonance (NMR) byla zaznamenána na přístrojích Varian Unity Inova 400 a Varian Unity AS 500 (Agilent Technologies, Santa Clara, CA, USA). Hmotnostní spektrometrie s nízkým rozlišením (MS) a data MS s vysokým rozlišením byla získána na Expression CMS (Advion, Ithaca, NY, USA) a 6530 Accurate Mass quadrupole time-of-flight hmotnostní spektrometr kapalinové chromatografie (Agilent). . Syntéza PDTM1–PDTM17 byla provedena v naší laboratoři.
extrakt z cistanche
Obecný postup pro syntézu PDTM1–PDTM17
Do míchaného roztoku 2,3-dimerkapto-1-propanolu (100 mg, 0,80 mmol) v 1,4-dioxanu (1 ml) byly přidány následně se přidal roztok kyseliny sírové (0,1 ekvivalence) v 1,4-dioxanu (1 ml) a příslušný benzaldehyd (1,1 ekvivalence). Po míchání při teplotě místnosti po dobu 10 minut byla reakční směs míchána při teplotě 70 stupňů po dobu 40 minut až 1 hodiny. Směs se poté rozdělí mezi ethylacetát a vodu a organická vrstva se suší nad bezvodým MgS04, filtruje se a odpaří se. Získaný zbytek byl přečištěn pomocí sloupcové chromatografie na silikagelu, čímž byly získány čisté produkty PDTM: PDTM1–PDTM17.14 Strukturní charakterizace (1H a 13C NMR a hmotnostní údaje všech PDTM a 1-D a 2-D NMR spektra některých PDTM) syntetizovaných sloučenin jsou uvedeny v doplňkových materiálech.
Inhibice hubtyrosinázaod PDTM1–PDTM17
Inhibiční účinky analogů PDTM na houbovou tyrosinázu byly zkoumány s malými modifikacemi, jak bylo popsáno dříve v naší práci.15 Každá sloučenina (10 μl, konečná koncentrace 50 μM) byla smíchána s roztokem substrátu (170 μl), připraveným z 14,7 mM fosforečnanu draselného. pufr (pH 6,5) a 293 uM roztok l-tyrosinu (1:1, v/v), v každé jamce 96-jamkové destičky. Do každé jamky byl přidán roztok houbové tyrosinázy (20 ul, 1,000 U/ml) a inkubován po dobu 30 minut při 37 stupních. Obsahy dopacromu vytvořeného v jamkách byly stanoveny měřením optických hustot při 475 nm pomocí čtečky mikrodestiček VersaMax (Molecular Devices, Sunnyvale, CA, USA). Kyselina kojová a arbutin byly použity jako pozitivní kontroly. Všechny experimenty byly provedeny trojmo. Míry inhibicetyrosinázabyly vypočteny takto:
Inhibice ( procenta )=× 100 [ ( 1 − AB/ )] (1)
kde A označuje optickou hustotu testované sloučeniny a B představuje optickou hustotu kontroly.
Poloviční maximální inhibiční koncentrace (IC50) je koncentrace sloučeniny, která inhibuje standardní 50procentní odezvu. IC50 je odvozena z osy x na křivce koncentrace inhibitoru versus tvorba produktu a je určena z vyrovnání křivky dávka-odpověď na závislé ose y. V této studii byly experimenty inhibice závislé na dávce provedeny trojmo, aby se stanovila IC50 sloučenin. Podle procenta inhibice pěti dávek (konečná koncentrace 10, 20, 30, 40 a 50 uM) v každém experimentu byly stanoveny log-lineární křivky a jejich rovnice. Jednotlivé hodnoty IC50 pak byly vypočteny jako koncentrace, kdy se osa y rovnala 50procentní inhibici. Jsou ukázány výsledky ze tří experimentů.
Analýza povahy inhibice tyrosinázy hub
K objasnění povahy inhibičního účinku PDTM3 na houbovou tyrosinázu byly provedeny kinetické studie. PDTM3 (10 μl [0, 5, 10 nebo 25 μM konečná koncentrace]) byl přidán do 170 μl roztoku l-tyrosinu (konečná koncentrace 0,5, 1, 2 nebo 4 mM) a poté smícháme s houbamityrosinázaroztoku (20 μl, 1,000 U/ml) v každé jamce 96-jamkové destičky. Poté, co byla směs inkubována po dobu 30 minut při 37 stupních, byly obsahy dopacromu produkovaného v jamkách stanoveny měřením optických hustot při 475 nm pomocí čtečky mikrodestiček. Všechny experimenty byly provedeny trojmo. Pro stanovení povahy inhibice byl použit Lineweaver-Burkův graf.

extrakt z cistanche výhoda
Simulace dokování PDTM3 nebo kyseliny kojové s tyrosinázou
Simulace in silico dokování protein-ligand byla provedena pomocí AutoDock Vina za použití systematické vyhledávací techniky a 3-D struktury Agaricus bisporustyrosináza(Protein Data Bank ID 2Y9X).16,17 V krystalové struktuře tyrosinázy bylo vazebné místo l-tyrosinu použito jako dokovací kapsa. Výsledky simulace byly získány z dokování mezi tyrosinázou a syntetickými sloučeninami (PDTM3, PDTM7, PDTM8, PDTM9 a PDTM13) nebo kyselinou kojovou. Před provedením simulace dokování se sloučeninami byly 2-D struktury sloučenin transformovány na 3-D struktury, byly stanoveny náboje sloučenin a pomocí ChemOffice byly vloženy atomy vodíku. LigandScout 3.1.2 byl použit pro predikci možných interakcí mezi ligandy a tyrosinázou a identifikaci farmakoforů. Obrázky simulace dokování 17 PDTM jsou uvedeny v doplňkových materiálech.
Stanovení úrovně melanogeneze v buňkách B16F10
Testy obsahu melaninu s menšími modifikacemi byly použity v buňkách B16F10 pro inhibiční účinky PDTM3 namelanogeneze.19 Buňky nasazené v hustotě 5×10⁴ buňky/jamka v 24-jamkové destičce byly ponechány adherovat při 37 stupních ve zvlhčené atmosféře obsahující 5 procent CO2 přes noc. Následující den byly buňky vystaveny působení -MSH (1 uM) a PDTM3 (0, 5, 10 nebo 25 uM) nebo kyselině kojové (25 uM) a destička byla inkubována po dobu 24 hodin za stejných podmínek. Po dvojnásobném promytí PBS byly buňky odděleny inkubací při 60 stupních ve 200 ul 1N NaOH po dobu 1 hodiny. Lyzáty byly přesunuty do 96-jamkové destičky a optické hustoty byly měřeny při 405 nm čtečkou pro imunosorbentní test s enzymatickým spojením pro výpočet průměrného procenta inhibice kyseliny kojové a PDTM3. Všechny experimenty byly provedeny trojmo.
Test tyrosinázové aktivity v buňkách B16F10
Odhadem rychlosti oxidace l-dopa,tyrosinázaaktivity byly vyhodnoceny s menšími úpravami, jak je popsáno v předchozí práci.20 Buňky nasazené v hustotě 5×10⁴ buňky/jamku v 24-jamkové destičce byly ponechány držet při 37 stupních ve zvlhčené atmosféře obsahující 5 procent CO2 po dobu 24 hodin. Buňky byly vystaveny působení -MSH (1 uM) a PDTM3 (0, 5, 10 nebo 25 uM) nebo kyselině kojové (25 uM) a destička byla inkubována za stejných podmínek po dobu 24 hodin. Po dvojnásobném promytí PBS byly buňky lyžovány 100 ul lyzačního pufru obsahujícího 0,1 mM PMSF (5 ul), 50 mM PBS (90 ul, pH 6,8) a 1 procento Tritonu X-100 (5 ul) a zmrazit na -80 stupeň po dobu 30 minut. Lyzáty byly rozmraženy a centrifugovány při 12,000 g po dobu 30 minut při 4 stupních a supernatanty (80 μl) byly smíchány s 10 mM l-dopa (20 μl) v 96-jamkové destičce, která byla poté inkubována po dobu 30 minut při 37 stupních. Optické hustoty byly vypočteny při 500 nm a inhibiční aktivity tyrosinázy byly stanoveny takto:
Inhibice ( procenta )=× 100 ([A−B] − [C−D] /[ A−B ] ) (2)
kde B a A jsou optické hustoty slepého vzorku před a po inkubaci a D a C jsou optické hustoty testované sloučeniny před a po inkubaci.
Statistická analýza
Jednosměrná analýza rozptylu následovaná Dunnettovým testem byla použita k určení, zda se průměry skupiny významně lišily od průměrů kontrol. Welchův nepárový t-test byl použit ke stanovení, zda byly účinky PDTM3 a kyseliny kojové významně odlišné. Statistická analýza byla provedena pomocí GraphPad (GraphPad Software, La Jolla, CA, USA). Všechny výsledky jsou uvedeny jako průměr ± standardní chyba tří nezávislých experimentů. Dvoustranné P-hodnoty 0,05 byly považovány za statisticky významné.
Výsledky a diskuse
Příprava PDTM1–PDTM17PDTM1–PDTM17 byly syntetizovány podle schématu 1. Zahřívání 2,3-dimerkapto-1-propanolu a četných vhodně substituovaných benzaldehydů (1–17) v 1,4-dioxanu v přítomnost kyseliny sírové poskytla požadované produkty PDTM jako pevné látky nebo lepkavý olej. Struktury finálních produktů byly potvrzeny 1H a 13C NMR, korelační spektroskopií, heteronukleární jednokvantovou korelační spektroskopií, heteronukleární multi-vazebnou korelační spektroskopií a MS s nízkým a vysokým rozlišením. Přítomnost singletu odpovídajícího protonu –SCH(Ph)S– při δ=6,09–5,56 ppm v 1H NMR spektrech potvrdila vznik dithiolanového kruhu mezi benzaldehydy a 2,3-merkapto -1-propanol. V 1H NMR spektroskopických datech PDTM se pík 2-H jevil více v sestupném poli než píky protonů připojených k atomům uhlíku sp3 a píky 4-H exomethylenu a 5-H2 byly pozorovány více upfield v pojmenovaném pořadí. V 13C NMR spektroskopických datech, kromě píku z fenylového kruhu, byl uhlíkový pík exomethylenu (~64 ppm) nejvíce dolů, následovaný v pořadí 4-C (~58 ppm), 2-C (~55,3 ppm) a 5-C (~41 ppm). Čtyři produkty – PDTM6, PDTM12, PDTM13 a PDTM15 – byly získány každý jako jeden racemát, zatímco ostatní byly získány jako směs dvou racemátů ([2R,4R]/[2S,4S] a [2R,4S]/ [2S,4R], 1:1–1:1,5), jejichž poměry byly vypočteny pomocí 1H NMR spektroskopických dat. Jev při tvorbě produktu nelze vysvětlit jednoduše stérickými, elektronickými a/nebo stereoelektronickými efekty. Theinhibice tyrosinázytest byl proveden bez separace racemátů.

Inhibiční účinky PDTM1–PDTM17 na tyrosinázu hub
Potenciály 17 syntetizovaných produktů, PDTM1–PDTM17, inhibovat aktivitu houbové tyrosinázy byly zkoumány pomocí kyseliny kojové22 a arbutinu23 jako pozitivní kontroly. Inhibice byly stanoveny za použití 293 uM l-tyrosinu jako substrátu a syntetických sloučenin v koncentraci 50 uM.tyrosinázainhibice kyselinou kojovou a arbutinem byly stanoveny při 50 a 500 uM, v daném pořadí.
Tři sloučeniny – PDTM11 (3,4,5-trimethoxyfenyl), PDTM15 (4-hydroxy-3-methylfenyl) a PDTM17 (3,5-di-t-butyl{{ 12}}hydroxymethyl) – inhiboval tyrosinázu ve stejné míře jako kyselina kojová a inhiboval ji více než arbutin (tabulka 1). Pět derivátů PDTM – PDTM3 (2,4-dihydroxyfenyl), PDTM7 (4-methoxyfenyl), PDTM8 (3,4-dimethoxyfenyl), PDTM9 (2,4-dimethoxyfenyl), a PDTM13 (3-brom-4-hydroxyfenyl) – inhibovaly tyrosinázu účinněji než kyselina kojová. Hodnoty IC50 těchto sloučenin byly zkoumány: 13,94 ± 1,76 uM (PDTM3), 16,47 ± 2,36 uM (PDTM7), 16,97 ± 2,99 uM (PDTM8), 27,85 ± 1,47 uM (PDTM19) a 15,53 ± 3,3. Nízké hodnoty IC50 PDTM3, PDTM7, PDTM8 a PDTM13 naznačovaly, že účinnost byla silnější než účinnost kyseliny kojové (1886±2,14 uM) a arbutinu (381,26±3,22 uM), které byly použity jako pozitivní kontroly . Je zajímavé, že tento výsledek se shoduje s naším předchozím zjištěním, že mnoho analogů s 2,4-dihydroxyfenylovou skupinou má vyššíinhibitory tyrosinázyaktivitu než kyselina kojová.10,13,24–32
Zbývající deriváty PDTM neměly žádný (PDTM1 a PDTM2) nebo nízký inhibiční účinek (PDTM4, PDTM5, PDTM6, PDTM10, PDTM12, PDTM14 a PDTM16) ve srovnání s kyselinou kojovou. Podle našich nashromážděných údajů o vztahu struktura-aktivita byly analogy s alespoň jednou hydroxylovou skupinou schopnější inhibovat tyrosinázu. Poněkud překvapivě čtyři deriváty PDTM bez hydroxylové skupiny inhibovaly aktivitu tyrosinázy stejně nebo účinněji než kyselina kojová. Jednalo se o PDTM7 (4-methoxyfenyl), PDTM8 (3,4-dimethoxyfenyl), PDTM9 (2,4-dimethoxyfenyl) a PDTM11 (3,4,5-trimethoxyfenyl) . Sloučeniny (PDTM1-2, PDTM4-5 a PDTM12) pouze s 4-hydroxylovou skupinou na fenylovém kruhu nebo alkoxy nebo hydroxylovou skupinou v poloze 3 s 4-hydroxylem skupina měla nízkou nebo žádnou aktivitu, zatímco sloučeniny (PDTM13–PDTM17) s alkylovou nebo bromovou skupinou v poloze 3 s 4-hydroxylovou skupinou vykazovaly středně vysokou inhibiční aktivitu vůči tyrosináze. Tyto výsledky vztahu struktura-aktivita podporují hypotézu, žeinhibitor tyrosinázyaktivita sloučenin s 4-hydroxylovou skupinou je značně ovlivněna typem 3-substituentu.

cistanchevýhoda: proti stárnutí
Způsob inhibice houbové tyrosinázy pomocí PDTM3
Protože PDTM3 inhiboval houbutyrosinázavětšinou byl k určení povahy jeho inhibičního účinku použit Lineweaver-Burkův graf. Jak je znázorněno na obrázku 2, byl získán dvojitý reciproký graf a všechny čáry s různými sklony protínaly osu y ve stejném bodě. Proto se hodnoty Km (Michaelisova konstanta) postupně zvyšovaly s koncentrací PDTM3. Podrobné hodnoty kinetických parametrů jsou uvedeny v tabulce 2. Na druhou stranu maximální reakční rychlost (Vmax) nebyla ovlivněna koncentrací PDTM3. Tato zjištění prokazují, že PDTM3 inhibuje tyrosinázu v závislosti na dávce a kompetitivně.
Simulace in silico dokování asociace tyrosinázy s PDTM3, PDTM7–PDTM9, PDTM13 a kyselinou kojovou
AutoDock Vina byl použit ke stanovení, zda syntetizované analogy PDTM přímo inhibovaly tyrosinázu prostřednictvím vazby na její aktivní místo. Kyselina kojová a pět analogů PDTM (PDTM3, PDTM7–PDTM9 a PDTM13), u kterých bylo zjištěno, že mají silné houbyinhibitory tyrosinázyaktivity, byly použity jako ligandy pro simulaci dokování. Každý z těchto analogů PDTM by mohl mít čtyři stereoizomery a vazebné energie stereoizomerů jsou uvedeny na obrázku 3A. Bylo zjištěno, že všech pět analogů PDTM má podobnou nebo vyšší afinitu k aktivnímu místu tyrosinázy ve srovnání s kyselinou kojovou (-5,4 kcal/mol) a PDTM3 vykazoval největší afinitu. Tento výsledek ukázal, že silné inhibiční účinky těchto pěti derivátů PDTM lze připsat jejich vazebné afinitě s tyrosinázou a ukázal úzký vztah mezi vazebnou afinitou, jak bylo stanoveno simulací dokování, a inhibicí tyrosinázy.
K identifikaci byl použit LigandScout 3.1.2tyrosinázaaminokyselinové zbytky, které interagují s analogy PDTM. Jak je znázorněno na obrázcích 3B a C, 4-hydroxylová skupina na fenylovém kruhu PDTM3 interagovala s His85 tyrosinázy prostřednictvím vodíkové vazby a fenylový kruh interagoval s Val283 a Ala286 prostřednictvím hydrofobních interakcí a s His263 prostřednictvím π–π stohovací interakce. Vodíková vazba mezi alkoholovou hydroxylovou skupinou a aminokyselinovými zbytky tyrosinázy byla detekována pouze pro PDTM7 a PDTM8. Alkoholická hydroxylová skupina obou analogů PDTM však interagovala s různými aminokyselinovými zbytky, např. PDTM7 interagoval s His244 a Asn260, zatímco PDTM8 interagoval s Gly281. Kromě toho se Val283 tyrosinázy podílel na hydrofobních interakcích se všemi pěti analogy.
Testy na obsah melaninu
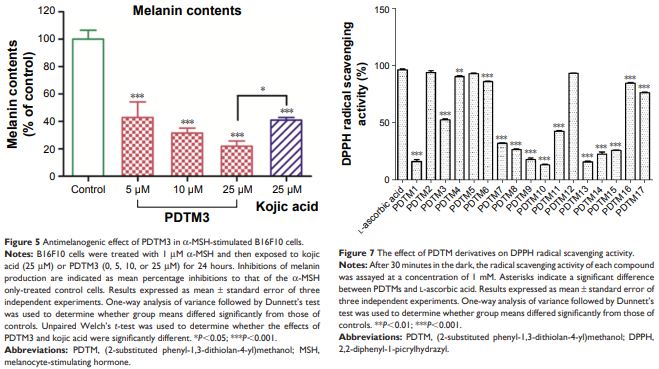
Buňky B16F10 byly použity k vyhodnocení depigmentačních aktivit analogů PDTM. PDTM3 byl vybrán pro experimenty založené na buňkách kvůli jeho silné houběinhibitory tyrosinázyúčinek a jeho nedostatek toxicity pro buňky B16F10. PDTM3 byl hodnocen na svůj inhibiční účinek proti stimulaci -MSHmelanogenezev buňkách B16F10 stanovením hladin melaninu v buňkách. Hladiny melaninu byly významně sníženy poté, co byly buňky společně ošetřeny PDTM3 a -MSH ve srovnání s buňkami ošetřenými pouze -MSH. V koncentračním rozmezí 0–25 μM vykazoval PDTM3 významný antimelanogenní účinek závislý na dávce. Kromě toho při koncentraci pouze 10 uM vykazoval PDTM3 vyšší inhibiční účinnost než kyselina kojová při 25 uM, jak je znázorněno na obrázku 5. Tyto výsledky naznačují, že antimelanogenní účinek PDTM3 v buňkách B16F10 nesouvisí s cytotoxicitou.
Test tyrosinázové aktivity v buňkách B16F10
Inhibiční účinek PDTM3 na aktivitu buněčné tyrosinázy byl zkoumán na buňkách B16F10 předem stimulovaných -MSH. PDTM3 inhibován v závislosti na dávcetyrosinázaaktivita v rozsahu koncentrací 0–25 μM (obrázek 6). Kromě toho tyto výsledky dobře odpovídaly výsledkům obsahu melaninu, což naznačuje, že antimelanogenní účinek PDTM3 lze připsat inhibici tyrosinázy.
Závěr
V této práci byly syntetizovány různé analogy PDTM a hodnoceny z hlediska jejich účinků namelanogenezea aktivitu tyrosinázy v buňkách B16F10. Osm analogů vykazovalo stejně nebo více účinnou inhibici proti houbové tyrosináze než kyselina kojová a PDTM3 měl největší inhibiční aktivitu. V buňkách B16F10 PDTM3 významně inhiboval biosyntézu melaninu způsobem závislým na dávce atyrosinázaaktivita v rozmezí koncentrací 0–25 μM bez cytotoxického účinku. Při koncentraci 10 μM PDTM3 snižoval biosyntézu melaninu a aktivitu tyrosinázy významně více než kyselina kojová při 25 μM. Vzhledem k našemu pozorování, že mnoho analogů PDTM vykazovalo silné inhibiční účinky na tyrosinázu, navrhujeme, aby byl 1,3-dithiolan považován za vhodný skelet proinhibitory tyrosinázyaktivita. Nyní hledáme separační podmínky každé PDTM směsi dvou racemátů a separační podmínky a antimelanogenní účinek každého jednotlivého racemátu budou včas oznámeny.
Kupte si doplňky stravy cistanche