

Endogenní kmenové buňky v homeostáze a stárnutí, část 2
Jul 11, 2023
3,2 oxytocin
Oxytocin je cirkulující hormon a neuropeptid, jehož hladina v plazmě se stárnutím klesá. Svalová regenerace u mladých zvířat se snížila, když byl oxytocin inhibován, a systémové podávání oxytocinu zvýšilo aktivaci a proliferaci starých svalových kmenových buněk aktivací signální dráhy MAPK/ERK, což zvýšilo regeneraci svalů [14]. Jako lék schválený FDA je oxytocin považován za potenciální terapeutický a bezpečný způsob léčby stárnutí svalů. Navíc se při objímání nebo spojování uvolňuje oxytocin, což může mít také výhody proti stárnutí.
Glykosid cistanche může také zvýšit aktivitu SOD v srdeční a jaterní tkáni a významně snížit obsah lipofuscinu a MDA v každé tkáni, účinně zachycovat různé reaktivní kyslíkové radikály (OH-, H₂O₂ atd.) a chránit před způsobeným poškozením DNA. OH-radikály. Cystanche fenylethanoidové glykosidy mají silnou schopnost vychytávání volných radikálů, vyšší redukční schopnost než vitamín C, zlepšují aktivitu SOD v suspenzi spermií, snižují obsah MDA a mají určitý ochranný účinek na funkci membrány spermií. Polysacharidy Cistanche mohou zvýšit aktivitu SOD a GSH-Px v erytrocytech a plicních tkáních experimentálně senescentních myší způsobených D-galaktózou, stejně jako snížit obsah MDA a kolagenu v plicích a plazmě a zvýšit obsah elastinu. dobrý čisticí účinek na DPPH, prodlužuje dobu hypoxie u senescentních myší, zlepšuje aktivitu SOD v séru a oddaluje fyziologickou degeneraci plic u experimentálně senescentních myší Experimenty prokázaly, že Cistanche má dobrou antioxidační schopnost s buněčnou morfologickou degenerací a má potenciál být lékem k prevenci a léčbě nemocí stárnutí kůže. Zároveň má echinakosid v Cistanche významnou schopnost vychytávat volné radikály DPPH a dokáže vychytávat reaktivní formy kyslíku, bránit volnými radikály indukované degradaci kolagenu a má také dobrý opravný účinek na poškození aniontů volnými radikály thyminu.

Klikněte na výhody rou cong rong
【Další informace:george.deng@wecistanche.com / WhatApp:{0}}】
3.3 Bursicon
Bursicon je hmyzí hormon a neuroendokrinní hormon. Neurotransmitery uvolňované nervovými buňkami stimulují neuroendokrinní buňky k uvolňování bursikonu do krevního řečiště. Enteroendokrinní buňky v gastrointestinálním traktu vylučují bursikon, který se váže na jeho receptor DLGR2 a inhibuje expresi epidermálního růstového faktoru (EGF). Interakce bursikonu a DLGR2 ve střevě Drosophila udržuje klid střevních kmenových buněk [52]. Bursicon je považován za lokální regulátor pro udržení homeostázy střevních kmenových buněk.
3,4 HGFA
HGF, z mezenchymu odvozený glykoprotein vázající heparin, se váže na c-Met receptor a tato interakce reguluje buněčnou proliferaci, přežití buněk, buněčnou motilitu a regeneraci tkání prostřednictvím tyrosinkinázové dráhy [53, 54]. Mnoho předchozích studií ukázalo, že HGF aktivoval vstup klidových satelitních buněk do buněčného cyklu. V roce 2014 Dr. Thomas Rando a jeho skupina oznámili, že satelitní buňky a extracelulární matrix poškozených svalů vylučují HGF, který podporuje vstup klidových satelitních buněk ze stavu G0 do stádia GAlert prostřednictvím mTORC1 downstream. signální dráha. Buňky GAlert jsou připraveny pro proliferaci a aktivaci. Zraněním indukovaná sekrece nízké hladiny HGF stimuluje klidové satelitní buňky, aby vstoupily do stadia GAlert, zatímco prodloužené poraněním indukované signály HGF rychle podporují proliferaci a aktivaci pro opravu [55]. V roce 2017 skupina Rondo ukázala, že systémová injekce HGFA indukuje proteolytické zpracování pro aktivaci HGF a stimuluje stav GAlert v kmenových buňkách kosterního svalstva. Podáváním HGFA bylo dostatečně dosaženo aktivace kmenových buněk a opravy tkáně; proto je HGFA navržena jako potenciální kandidát pro terapeutické aplikace v regenerativní medicíně [15].
3,5 CCL11
V roce 2011 Tony Wyss-Coray a jeho skupina oznámili, že hladina CCL11 v krevní plazmě byla zvýšena u starých myší a lidí. CCL11 inhibuje neurogenezi a narušuje učení a paměť, takže byl navržen jako cirkulující faktor pro stárnutí pomocí experimentů s heterochronní parabiózou [7]. Stejná skupina se snažila určit systémové faktory spojené se stárnutím a degenerací tkání pomocí proteomického přístupu. Šedesát šest cytokinů, chemokinů a secernovaných signálních proteinů bylo měřeno v plazmě normálně stárnoucích myší pomocí standardizovaných, multiplexních sendvičových enzymových imunosorbentních testů (ELISA; Luminex). Mezi těmito 66 proteiny se u starých myší a mladých myší s heterochronní parabiózou zvýšily CCL2, CCL11, CCL12, CCL19, haptoglobin a b{13}}mikroglobulin (B2M). CCL11 je chemokin zapojený do alergických reakcí, které nebyly hlášeny jako faktor stárnutí. Vysoká hladina CCL11 je však detekována u uživatelů konopí a lidí trpících schizofrenií vyvolanou konopím [56]. Ačkoli se zdá, že CCL11 je systémovou molekulou spojenou se stárnutím, přesně to, jak podporuje proces stárnutí, vyžaduje další studium.
3.6 B2M
Skupina Wyss-Coray a Saul A Villeda také uvedla B2M jako systémový faktor pro stárnutí, který narušuje kognitivní funkce a neurogenezi u myší [57]. B2M je složkou molekul hlavního histokompatibilního komplexu třídy I (MHC I), které jsou zvýšené v krvi a hippocampu stárnoucích lidí a myší. Exogenní injekce B2M systémově nebo lokálně do hipokampu zhoršuje kognitivní funkce a neurogenezi závislou na hipokampu u mladých myší a nepřítomnost endogenního B2M u myší B2m-/- eliminuje kognitivní dysfunkci související s věkem a zvyšuje neurogenezi u starých myší [57]. Dále byla zjištěna zvýšená systémová hladina solubilního B2M v mozkomíšním moku pacientů s HIV demencí [58, 59] nebo Alzheimerovou chorobou [60]. Silná souvislost mezi systémovou úrovní B2M a poklesem kognitivních funkcí naznačuje, že B2M je silným potenciálním systémovým faktorem pro stárnutí. Ačkoli skupina Wyss-Coray a Villeda dosud neizolovala žádné faktory proti stárnutí z mladé plazmy, zjistili, že mladá krev zvrátila poruchy kognitivních funkcí a synaptické plasticity starých myší související s věkem [61]. Kromě toho provedli klinickou studii na lidech, která používala sérii transfuzí plazmy od mladých dárců (\30) až po starší pacienty s Alzheimerovou chorobou [62]. Existuje terapeutický příslib pro omlazující faktory, které by mohly stárnoucím lidem vrátit čas, ale takové faktory jsou pouze výchozím bodem k pochopení stárnutí.
4 Nika kmenových buněk jako pozitivní nebo negativní regulátor
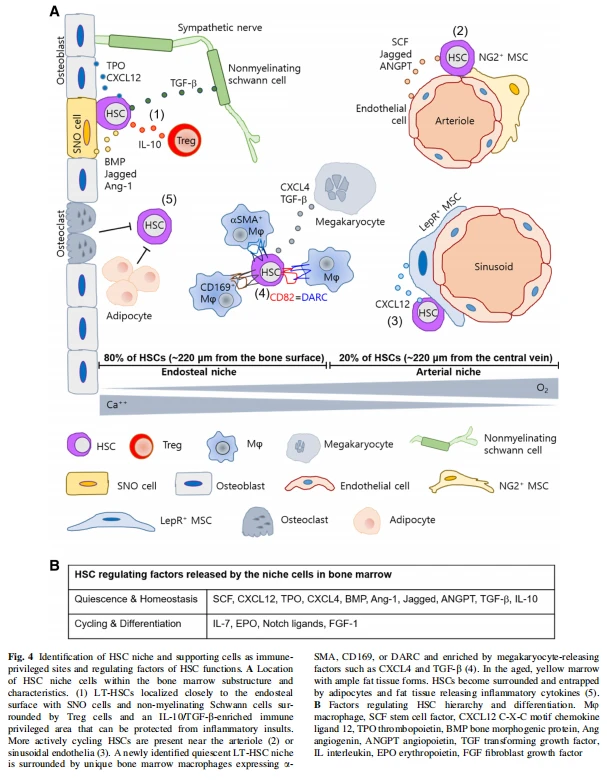
V kostní dřeni existují HSC, BMSC a EPC v přísně kontrolovaném mikroprostředí, výklenku, který přispívá ke kontrole klidu, proliferace, sebeobnovy a diferenciace. Tato nika kmenových buněk se skládá ze specializované populace buněk, která zahrnuje rozpustné faktory, jako jsou cytokiny, chemokiny a růstové faktory, a produkuje chemické, fyzikální a mechanické signály pro napětí kyslíku, extracelulární matrice, smykové síly, teplotu, okolní pH a jednoatomové ionty, které všechny regulují chování kmenových buněk. Tato část se zabývá tím, kolik změn souvisejících s věkem v těchto buněčných nebo mikroenvironmentálních složkách niky ovlivňuje funkci kmenových buněk nebo samotnou niku kmenových buněk.
4.1 HSC Niche v mladé a staré kostní dřeni
Nika kmenových buněk pro HSC, která obsahuje mnoho buněčných složek a jejich sekretů, reguluje homeostázu HSC a obchodování pomocí odlišných mechanismů. BMSC, endoteliální buňky arteriol/kapilár/sinusoid, osteoblasty, sympatický nervový systém, T buňky a makrofágy jsou všechny uznávány jako pozitivní regulátory, zatímco adipocyty a osteoklasty jsou obecně známy jako negativní regulátory (obr. 4). Nestinmid PDGFa? CD51? perivaskulární buňky sídlí v blízkosti HSC a adrenergního nervu a udržují klid HSC sekrecí cytokinového chemokinu (motiv C–X–C), ligandu 12 (CXCL12) a faktoru kmenových buněk (SCF) [63]. CXCL12-hojné retikulární (CAR) buňky, které jsou Nestin? Mx-1? Lepr?Prx-1? Buňky podobné MSC v blízkosti endostu regulují samoobnovu HSC, proliferaci a mobilizaci [64]. Endoteliální buňky na arteriole a sinusoidě podporují HSC sekrecí FGF, EGF, DLL1, IGFBP2, ANGPT1, DHH, pleiotropinu a Jagged-2 [12, 65, 66].
Nika endosteálních kmenových buněk obsahuje specializované hypoxické imunitní privilegované místo, které chrání HSC před zánětlivým poškozením. Přibližně 80 procent Lin-Sca1?- KIT? CD41-CD150?CD48- HSC se nacházejí v blízkosti endosteálního výklenku na povrchu kosti a pouze 20 procent HSC sídlí v blízkosti centrální žíly centra kosti [12]. V endostálním výklenku poskytují specializované osteoblastické buňky (SNO buňky) klidové signály pro udržení HSC. Buňky SNO a HSC tvoří spojení buňka-buňka s N-cadherinem a indukují aktivaci PTEN zprostředkovanou b-cateninem, která blokuje vstup do buněčného cyklu indukovaný PI3K/Akt/mTOR. Jak SNO buňky, tak HSC tvoří adhezivní spojení mezi VCAM a VLA4 a mezi fibronektinem a VLA5. Buňky SNO inhibují aktivaci, diferenciaci a apoptózu HSC poskytováním BMP, Jagged a Ang-1 [67]. Buňky Treg, které se hromadí na povrchu endostu, poskytují HSC privilegia potlačující imunitu tím, že vylučují protizánětlivý cytokin IL-10. Zdá se, že HSC sídlí do 20 lm od CD4.CD25?FoxP3? Treg [68]. Sympatické nervové systémy v kostní dřeni také chrání HSC sekrecí aktivátoru TGF-b z nemyelinizačních Schwannových buněk, který interaguje s receptorem TGF-b na povrchu HSC, aby aktivoval fosforylaci signalizace SMAD2/3 a způsobil udržení a klid. HSC [69]. Adrenergní nerv a Nestin? BMSC vysoce exprimují udržovací geny HSC, včetně CXCL12, ANGPT1, Kit ligandu a VCAM-1, zatímco aktivace adrenergního receptoru snižuje expresi tohoto genu [70].
Nedávno vědci zjistili, že makrofágy hrají důležitou roli v udržování LT-HSC, jejichž deplece faktorem stimulujícím kolonie granulocytů (GCSF) aktivuje sympatický nerv k sekreci norepinefrinu, který způsobuje výstup HSC do krve [71]. CD82/KAI1, který je vysoce exprimován na povrchu LT-HSC, podporuje klidový stav LT-HSC interakcí s DARC (CD234) na makrofázích po signální dráze TGF-b1/Smad3 [72]. Nízká exprese CD82 je spojena s progresí nádoru. Je známo, že endoteliální DARC indukuje stárnutí CD82. nádorové buňky [72]. a-SMA?COX-2? monocyty a makrofágy udržují hematopoetické kmenové progenitorové buňky (HSPC) prostřednictvím produkce prostaglandinu E2, který inhibuje produkci ROS v HSPC omezením exprese chemokinu CXCL12 ve stromálních buňkách [73]. CD169? makrofágy v kostní dřeni se liší od podtypů makrofágů M1/M2 a exprimují CD206, VCAM- 1 a CCL22 [74]. CD169 (Sialo-adhesion) je buněčná adhezní molekula přítomná na povrchu makrofágů. CD169? makrofágy tvoří přibližně 2,6 procenta všech buněk kostní dřeně, podporují niku HSC a podporují retenci HSC pomocí Nestin. BMSC a b-adrenergní neurony v kostní dřeni [75].
Jaké negativní regulátory ovlivňují niku HSC? Po ozáření a při pokročilém stárnutí mají BMSC tendenci diferencovat se na adipocyty a vyplňovat prostor kostní dřeně, což je chápáno jako inhibice funkce HSC. Inhibice adipogeneze zvyšuje regeneraci kostní dřeně [76]. Také v roce 2017 Ambrosi et al. [77] použili kompetitivní repopulační test po letálním ozáření a uvedli, že akumulace adipocytů v kostní dřeni během obezity a stárnutí narušuje hematopoézu a kostní regeneraci založenou na kmenových buňkách. Jako součást tohoto mechanismu navrhli, že adipocytární linie rezidentní v kostech produkovala nadměrné množství dipeptidyl peptidázy-4 (DPP-4), což je cíl pro léčbu diabetu, který by mohl zhoršit niku HSC. Dalším postradatelným typem buněk pro zdravou niku HSC je osteoklast degradující kost. U myší s modelem klienta s osteoprotegerinem, osteoklasty degradují endosteální niku a indukují mobilizaci HSC [78, 79]. Ve stárnoucích tělech může současně docházet k vyčerpání buněk podporujících niku a k upregulaci adipozity v kostní dřeni, což zhoršuje normální homeostázu HSC.
4.2 BMSC/EPC výklenek
Výzkum BMSC po desetiletí zdůrazňoval klíčovou roli BMSC při hojení ran a regeneraci tkání. Současné chápání buněk a signálů, které tvoří výklenek BMSC, je však velmi omezené. BMSC jsou obecně směsi progenitorových buněk v kostní dřeni. CD31? Je známo, že EPC těsně sousedí s BMSC a zvyšují schopnost sebeobnovy BMSC in vivo a in vitro [80]. Konkrétně je známo, že fibronektin v EPC, složka extracelulární matrice pro niku HSC, aktivuje integrin v BMSC a podporuje sebeobnovu [81, 82]. EPC jsou hlavní biologickou složkou výklenku BMSC a ovlivňují biologické procesy BMSC. IGF-1/IGF-2 se váže na IGF-1R/IGF-2R na BMSC a zvyšuje proliferaci a sebeobnovu [83]. CXCL12 zvyšuje kapacitu tvorby kolonií BMSC, která je podporována aktivací b3-adrenergního neuronu a následnou podporou schopnosti vytvářet kolonie EPC [84].
5 Epigenetické změny v kmenových buňkách během stárnutí
Během posledního desetiletí hromadící se důkazy podpořily změny v epigenetické informaci během stárnutí jak v kmenových buňkách, tak v somatických buňkách. Epigenetika označuje všechny dědičné změny v genové expresi, které jsou nezávislé na sekvenování DNA. Epigenetické modifikace v genomu a proteiny asociované s DNA jsou nutné pro udržení biologických stavů, jako je buněčná identita, se zvláště rozsáhlými důsledky pro kmenové buňky. V epigenomu jsou kódovány různé typy epigenetických změn, včetně redukovaných jádrových histonů, posttranslačních modifikací histonů, strukturních a funkčních variant histonů, metylace DNA, remodelace chromatinu a změněné exprese nekódující RNA během stárnutí i stárnutí. Tyto epigenetické změny způsobují aberantní genovou expresi, zkrácení telomer a genomovou nestabilitu [85]. Histonové modifikace, jako je methylace, fosforylace, ubikvitinace a acetylace, mohou působit odděleně nebo synergicky k regulaci genové exprese prostřednictvím změn ve struktuře chromatinu. Metylace histonů je komplexní epigenetická událost, která vede k různým transkripčním výstupům v závislosti na lysinovém (K) zbytku, jako je K4, K9, K20, K27, K36 a K79. Například histon H3 methylovaný na K4 nebo K36 je obecně spojen s aktivními geny, zatímco methylace na K9 a K27 je většinou spojena s represí genů.
Metylace DNA je relativně stabilní epigenetická modifikace omezená na cytosinové zbytky v CpG dinukleotidech pomocí enzymů DNA methyltransferázy (DNMT). Remodelace chromatinu je proteinem zprostředkovaná událost, která vede k přeuspořádání chromatinu a napomáhá přístupu k nukleozomální DNA pomocí proteinů SWItch/sacharóza nefermentovaná (SWI/SNF), polycomb group (PcG) a Trithorax group (TrxG). Na posttranskripční regulaci genové exprese se podílejí nekódující RNA, včetně mikroRNA (miRNA, * 20 nukleotidů) a dlouhé nekódující RNA (lncRNA, * 200 nukleotidů), které nejsou translatovány do proteinů.
5.1 Epigenetický výzkum u různých druhů a modelu progerií
Bezobratlí jsou populární modely pro studie stárnutí, protože mají krátkou životnost a umožňují snadnou genetickou a environmentální manipulaci. Kromě toho se obvykle používají modely obratlovců, jako jsou myši, krysy a zebrafish. U kvasinek odstranění remodelátoru chromatinu SWI/SNF (ISW2) prokázalo prodloužení replikační životnosti a napodobilo kalorická omezení prostřednictvím změn v umístění nukleozomů kritických pro regulaci genové exprese [86]. V posledních 10 letech bylo zjištěno, že regulátory methylace histonů jako H3K4me3, H3K27me3 a H3K36me3 se podílejí na regulaci délky života C. elegans [87–89]. Kromě toho byly během procesu stárnutí potvrzeny zvýšené hladiny klíčových metabolitů, jako je acetyl CoA, a zvýšená globální acetylace histonů, včetně acetylovaného lysinu 12 na histonu H4 (H4K12ac). Mutace H4K12ac prodloužila životnost Drosophila [90]. Především v metabolismu a stárnutí reguluje rodina savčích sirtuinových proteinů (SIRT1–SIRT7) mitochondriální funkci a zvyšuje přežití kmenových buněk. Sirtuiny deacetylují histony a několik regulátorů transkripce v jádře v buněčných kompartmentech [91]. U myší byly provedeny studie příčin stárnutí zkoumáním předčasného stárnutí (progerie), jako je Wernerův syndrom a Hutchinsonův-Gilfordův syndrom progerie (HGPS), genetické poruchy, které vedou ke zkrácení délky života a vyskytují se recesivní mutací Lamin A gen, který vede k modifikaci chromatinu, metabolickým defektům, vyčerpání kmenových buněk, deregulaci buněčného cyklu a zánětu [92, 93].

5.2 Epigenetické změny ve starých kmenových buňkách
Modifikace DNA/histonů a mechanismy zprostředkované nekódující RNA jsou epigenetické události, které hrají důležitou roli v regulaci funkcí kmenových/progenitorových buněk změnou struktury chromatinu. Epigenetické změny v dospělých kmenových buňkách jsou kritické během stárnutí, protože mění funkci, klonální složení a osud kmenových buněk, které byly regulovány vnitřními a vnějšími epigenetickými modifikátory. Aktivační značka H3K4me3 a represivní značka H3K27me3 jsou bivalentní domény, o kterých se předpokládá, že ovlivňují vývojovou genovou expresi. Tyto bivalentní domény také umožňují včasnou aktivaci a represi v nepřítomnosti diferenciačních signálů [94]. Značka H3K27me3 je nezbytná pro udržení potlačené formy těchto genů, zatímco značka H3K4me3/1 by mohla vést k aktivaci po indukci diferenciace prostřednictvím externích signálů.
5.3 Epigenetické změny HSC v hierarchii stárnutí a kmenových buněk
Vzájemná závislost mezi modifikací histonů a metylací DNA by mohla souviset se stárnutím HSC. V kmenových buňkách byla represivní značka H3K27me3 u mladých a starých HSC spolu se dvěma chromatinovými značkami souvisejícími s aktivní transkripcí, H3K4me3 a H3K36me3, epigeneticky profilována pomocí ChIP-seq. Přítomnost H3K4me3 během stárnutí HSC by mohla zvýšit sebeobnovu u starých HSC [95]. Naproti tomu u dospělých kmenových buněk kosterního svalstva nebo satelitních buněk vykazovala přítomnost značek H3K4me3 malý nebo žádný rozdíl u mladých a starých myší [96]. Tento konfliktní výsledek by mohl naznačovat, že represivní značky H3K4me3 jsou příčinou jiných mechanismů, nikoli potlačení transkripce, mezi různými kmenovými buňkami. Navíc jsou HSC spojeny se ztrátou aktivační značky H4K16ac během stárnutí [27]. Navíc se uvádí, že Kdm3a a Kdm5b regulují stárnutí kmenových buněk, protože jejich hladiny se během procesu stárnutí snižují [97, 98]. Knockdown lysindemethylázy Kdm5b (Jarid1b) zvýšil in vitro expanzi HSC a jejich in vivo lymfomyeloidní diferenciační potenciál [99]. Kromě toho je methylace histonů H3K27me3 klíčovým regulátorem hematopoézy. Nedávné studie uvádějí, že mladé HSC vykazovaly nízkou úroveň metylace v genomové oblasti spojené s produkcí krvinek, zatímco staré HSC vykazovaly hypermetylaci DNA v genomových oblastech spojených s lymfoidními/erytroidními liniemi [100].
Epigenetické regulátory, jako jsou enzymy deseti jedenácti translokací (Tet), které regulují demetylaci, a DNMT, které způsobují metylaci motivů CpG, se během stárnutí objevují v kompartmentu HSC. U mladých a starých HSC byly zjištěny různé úrovně exprese pro Tet2 i DNMT [95]. Nedávná studie na myších prokázala, že ztráta Tet2 způsobuje myeloidní transformaci a malignity [101]. DNMT1 hraje roli při udržování methylace a nedostatek DNMT1 v HSC prokázal myeloidní zkreslení a defektní proces sebeobnovy [102, 103]. Kromě toho ztráta funkce DNMT3A a DNMT3B způsobila nedostatek diferenciace HSC [104].
LT-HSC exprimují evolučně konzervovaný shluk miRNA, který zahrnuje miR-99b, let-7e a miR-125a. miR- 125a se podílí na osminásobném zvýšení počtu HSC in vivo a obohacuje lymfoidně vyvážené HSC [105, 106]. lncRNA Xist je nezbytný pro přežití HSC; Xist-deficientní HSC způsobují abnormální hematopoézu a ztrátu závislou na věku [107].
5.4 Epigenetické změny BMSC během ex vivo buněčné expanze a diferenciace
Epigenetické mechanismy BMSC jsou relativně dobře prozkoumány kvůli jejich terapeutickým aplikacím v regenerativní medicíně. Epigenetické změny pomáhají regulovat expresi několika genů spojených s kmenovostí BMSC a diferenciací různých typů buněk obsahujících osteocyty, chondrocyty nebo adipocyty.
Li a kol. [108] porovnávali epigenetické modifikace acetylace histonu H3 v BMSC s časnou a pozdní pasáží. Acetylace histonu H3 je zásadní událostí při regulaci stárnutí a diferenciace BMSC. Hladina acetylace H3 se například shoduje s hladinami genové exprese, takže k acetylaci histonu H3 K9 a K14 dochází v různých genech, včetně Oct4, Sox2, TERT, ALP a Runx2, v pozdní pasáži. Inhibitory histondeacetylázy podporují apoptózu a stárnutí v lidských BMSC [109]. Hladiny metylace DNA klesají během stárnutí BMSC a inhibice DNMT1 a DNMT3b podporuje stárnutí buněk v BMSC z pupečníkové krve prostřednictvím zvýšené exprese p16INK4A a p21CIP1/WAF1 [110].
Nedávno výzkum zkoumal epigenetické mechanismy, které regulují diferenciaci BMSC. V osteogenezi BMSC přispívá hyperacetylace chromatinu, methylace histonů H3K4me3 na promotoru genu HOXA10 a demetylace H3K27me3 k osteogennímu stanovení BMSC indukcí aktivace osteogenního transkripčního faktoru Runx2 [111, 112]. Metylace histonů H3K4 a H3K36 na genu AP-2a zvyšuje osteogenní a odontogenní potenciál BMSC [113]. Acetylace H3 a H4 na genu pro osteokalcin nebo acetylace H3K9 indukuje osteogenní diferenciaci BMSC [114, 115]. Metylace DNA na promotoru osteopontinu klesá během indukce osteogenní diferenciace v BMSC [116]. Kromě toho miR-27a, miR-489, miR-204 a miR- 138 snižují osteogenní diferenciaci snížením exprese alkalické fosfatázy, Runx2 nebo osterixu [117, 118] a miRNA-20A, miR-148b, miRNA-2861 a miR-335 indukují osteogenní diferenciaci aktivací BMP/Runx2 [108, 119, 120].
Během chondrogeneze BMSC by mohly být zahrnuty modifikace histonů a nekódující RNA, spíše než metylace DNA. Geny transkripčně upregulované během chondrogeneze jsou označeny H3K36me3 těla genu, H3K4me3 a H3K9ac 50 konců genů a promotorů a H3K4me1 a H3K27ac [121]. Exprese miR-130b, miR152, miR28 a miR26b se v chondrogenezi zvyšuje [122] a exprese miR-145 klesá, což způsobuje zvýšenou expresi SOX9 [123]. Navíc miR-29 indukuje chondrogenezi regulací FOXO3A [124] a miR-574-3p inhibuje chondrogenezi [125].
Bylo provedeno pouze několik studií o adipogenezi BMSC. K methylaci histonů H3K4me2 dochází u promotoru adipogenních genů, jako je adiponektin, glut4 a leptin [126]. Kromě toho zesilovač methyltransferázy zest 2 (EZH2) indukuje adipogenezi trimethylací H3K27, ale demethyláza KDM6A způsobuje osteogenezi odstraněním methylace H3K27me3. Knockdown EZH2 zvýšil osteogenezi, zatímco knockdown KDM6A zvýšil adipogenezi [127].
5.5 Epigenetické změny EPC v angiogenezi a stárnutí
Zájem o EPC se zvýšil kvůli jejich potenciálu v terapiích kmenovými buňkami pro ischemická poškození k usnadnění revaskularizace. Epigenetické regulátory, které zvyšují vaskulární reparační funkci endoteliálních progenitorových buněk, nabízejí potenciální průlom ve strategiích klinické aplikace. Studuje se použití epigenetických léků ke zvrácení těchto epigenetických známek a posílení revaskularizace.
V histonové modifikaci EPC je plný rozsah bivalentních genů mezi aktivační značkou H3K4me3 a represivní značkou H3K27me3 nejasný. Methylace H3K4 je nezbytná pro angiogenezi, protože lysin-specifická demethyláza 1 (LSD1) potlačuje metastázy a angiogenezi indukcí demetylace H3K4 [128]. EZH2 je negativní regulátor diferenciace endoteliálních buněk, který je nadměrně exprimován v rakovinných buňkách, potlačuje diferenciační geny a udržuje stopku prostřednictvím ukládání represivních značek H3K27me3 [129]. H3K36me3 methyltransferáza je nezbytná pro vaskulární vývoj, diferenciaci a funkci endoteliálních buněk [130]. Epigenetické změny v EPC se zvýšeným H3K4m3 a sníženým H3K9me3 indukují sekreci prozánětlivých cytokinů, jako jsou MCP-1 a IL-6, a narušují angiopoetický fenotyp, což vede ke zvýšenému riziku kardiovaskulárních onemocnění [131] .
Příspěvek methylace/demethylace DNA k regulaci endoteliálního genu zůstává nedostatečně pochopen. Nedávné studie uvádějí represivní H3K27me3 a methylační značky DNA v promotorech eNOS v časné EPC, které lze zvrátit v hypoxických podmínkách, aby se zvýšila exprese eNOS, a tím se zvýšil nábor a diferenciace endotelu [132]. Je také známo, že enzym histon deacetyláza HDAC1 má zásadní roli v inhibici proliferace a diferenciace endotelu [133].
Výzkum nekódujících RNA v EPC neustále pokročil. miR-21, miR-27a, miR-27b, miR-126 a miR{5}}a jsou vyjádřeny v EPC, ale jsou sníženy v cirkulujících EPC. U diabetických pacientů exprimují EPC nízké hladiny miR-126 a miR-130. Inhibice miR-126 snižuje proliferaci a migraci a inhibice miR-130 potlačuje diferenciaci EPC [134, 135]. miR-10A* a miR{13}} progredují stárnutí EPC a blokování těchto miRNA vyvolává proces proti stárnutí a zvyšuje angiogenní kapacitu [136].
6 Zánět a stárnutí
Zánět je klíčový patofyziologický proces, který chrání tělo před infekcí a opravuje zranění. Jak lidé stárnou, zažívají mnoho infekcí a nemocí a vytvářejí antigenní zátěž, která může vyvolat nevyvážené zánětlivé okolnosti. Během stárnutí se zvýšená tuková tkáň způsobená dietou s vysokým obsahem glukózy/tuků, sníženými pohlavními hormony, kouřením a stresem kombinují a způsobují chronický systémový zánět nízkého stupně. Takzvané záněty [8, 9] způsobují onemocnění související s věkem, jako jsou kardiovaskulární onemocnění, rakovina, cukrovka a osteoporóza [137]. Bylo provedeno mnoho studií o vztazích mezi stárnutím, záněty a nemocemi. Hladiny prozánětlivých cytokinů a chemokinů se u starších lidí zvyšují. IL-6, TNF-a, IL-1b a C-reaktivní protein (CRP), který se uvolňuje v játrech v reakci na IL-6, všechny zvyšují sérum starší lidé [137]. Prozánětlivé markery jsou považovány za prediktory onemocnění souvisejících s věkem, jako jsou kardiovaskulární onemocnění, rakovina, diabetes, osteoporóza [137] a neurodegenerativní poruchy, jako je Alzheimerova choroba [138]. U pacientů infikovaných HIV může navíc dojít k předčasnému stárnutí v důsledku chronického zánětu a imunitního stárnutí, což způsobuje dysfunkci T-buněk a vyčerpání progenitorových buněk [139]. Chronický zánět způsobuje oxidační stres, mitochondriální dysfunkci, onemocnění související s věkem, myeloidně zkreslenou diferenciaci, zkrácení telomer, epigenetické modifikace atd. [140]. Stále je záhadou, zda je zánět příčinou nebo výsledkem stárnutí.
6.1 Zánět a stárnutí kmenových buněk
Stárnuté kmenové buňky vykazují downregulaci jednotek tvořících kolonie a uvolňování růstového faktoru/cytokinu/chemokinu. Klid a retenci HSC podporují vaskulární endoteliální růstový faktor (VEGF), TGF-b1 a IL-10, které všechny fungují jako protizánětlivé signály [12]. Ve staré kostní dřeni se však tyto faktory snižují a zánětlivé signály se zvyšují, což vyvolává imunogenicitu. Zánětlivé signály fungují jako nouzové volání pro HSC. Během 1 hodiny po infekci vyvolané injekcí LPS odvozenou od E. Coli se LPS dostane do kostní dřeně, interaguje s TLR4 na HSC a způsobí proliferaci [10, 141]. IFN, jako je IFN-a a IFN-c, působí přímo na HSC, aby přesunuly klidové HSC do fází proliferace a diferenciace. Za stresových podmínek, jako je bakteriální nebo virová infekce, cytotoxický CD8? T buňky a HSC vylučují IFN-c, který způsobuje expresi myeloidních transkripčních faktorů C/EBPa a Runx1 v HSC [142], a CD4. T buňky produkují IFN-c cestou TLR/MyD88 [143]. Aktivované BMSC a HSC produkují IL-1, IL-6, TNF-a, G-CSF a faktor stimulující kolonie granulocytů a makrofágů (GM-CSF) [141], což vede k myeloidnímu zkreslení diferenciace, mobilizace a proliferace [141–144]. Tyto výsledky ukazují, že protizánětlivé terapie, které kontrolují zánětlivé signály v mikroprostředí kostní dřeně, by mohly modulovat osud kmenových buněk.
6.2 Protizánětlivá kontrola stárnutí kmenových buněk
Před deseti lety Bente K Pedersen publikoval článek nazvaný ''Protizánět – jen další slovo pro anti-aging?'' [145]. Uvedl, že u onemocnění souvisejících s věkem a chronických zánětlivých onemocnění, jako je ateroskleróza, diabetes, kardiovaskulární onemocnění, Alzheimerova choroba a rakovina, by podávání nesteroidních protizánětlivých léků v systémových koncentracích snížilo výskyt a působilo proti zánětu vyvolanému inhibice syntézy proteinů u starých lidí [145]. Například salsalát, protizánětlivé léčivo, které inhibuje NF-jB a dimer kyseliny salicylové, snižuje systémový zánět a zabraňuje diabetu 2. typu u obézních dospělých [146]. Dr. Thomas von Zglinicki a jeho skupina studovali nízkostupňové zánětlivé nfkb1-/- knockout myši, které předčasně stárnou a mají sníženou regenerační kapacitu v játrech a střevech [147]. Fibroblasty kb-/- zvýšily NF-kB, COX-2 a ROS prostřednictvím zpětné vazby, což způsobilo poškození DNA, jako je dysfunkce telomer a stárnutí. Podání protizánětlivých nebo antioxidačních látek však obnovilo regeneraci tkáně [147]. Kromě toho jeho tým změřil počet krvinek, metabolismus, funkci jater a ledvin, délku telomer a míru zánětu japonských stoletých lidí [148]. Uvedli, že stoleté staříky vykazovaly delší telomery než běžná populace a také to, že zánět je důležitou příčinou stárnutí u velmi starých lidí. Imunitní modulace a bezpečnější protizánětlivé léky mají hlavní potenciál a jsou dobrými kandidáty na léčbu na podporu zdravého života [148].
7 Samoobnova kmenových buněk a obchodování s nimi: očekávání pro opravu tkání a boj proti stárnutí
Očekává se, že kmenové buňky s rozdílným potenciálem, jako jsou dospělé kmenové buňky, embryonální kmenové buňky a indukované pluripotentní kmenové buňky, budou použity k opravě ztráty tkáně a poranění pro funkční zotavení z různých degenerativních onemocnění a traumat. Několik kritických problémů, jako je dobře řízená diferenciace specifická pro linii, masová produkce kmenových buněk, vysoké náklady na buněčnou kulturu ex vivo, nízké přihojení štěpu v místě transplantace a krátký poločas rozpadu terapeutických buněk, musí být vyřešeny pro klinické účely. přihlášky k postupu. Na druhé straně endogenní dospělé nebo tkáňové kmenové buňky vyhrazené ve tkáni a orgánech těla by mohly být použity k opravě tkáně bez komplikované ex vivo buněčné kultury, pokud lze identifikovat malé molekuly nebo růstové faktory, které regulují sebeobnovu kmenových buněk a obchodování s nimi. .
【Další informace:george.deng@wecistanche.com / WhatApp:{0}}】


