Cistanche: Echinakosidem indukovaná produkce oxidu dusnatého v endoteliálních buňkách: Role androgenního receptoru a cesta PI3K-Akt
Mar 05, 2022
Kontakt: Audrey Hu Whatsapp/hp: 0086 13880143964 E-mail:audrey.hu@wecistanche.com
LI GU, dANHONG LIAN, YIMEI ZHENG, WEI ZHOU, JINLEI GU a XIN LIU
Úvod
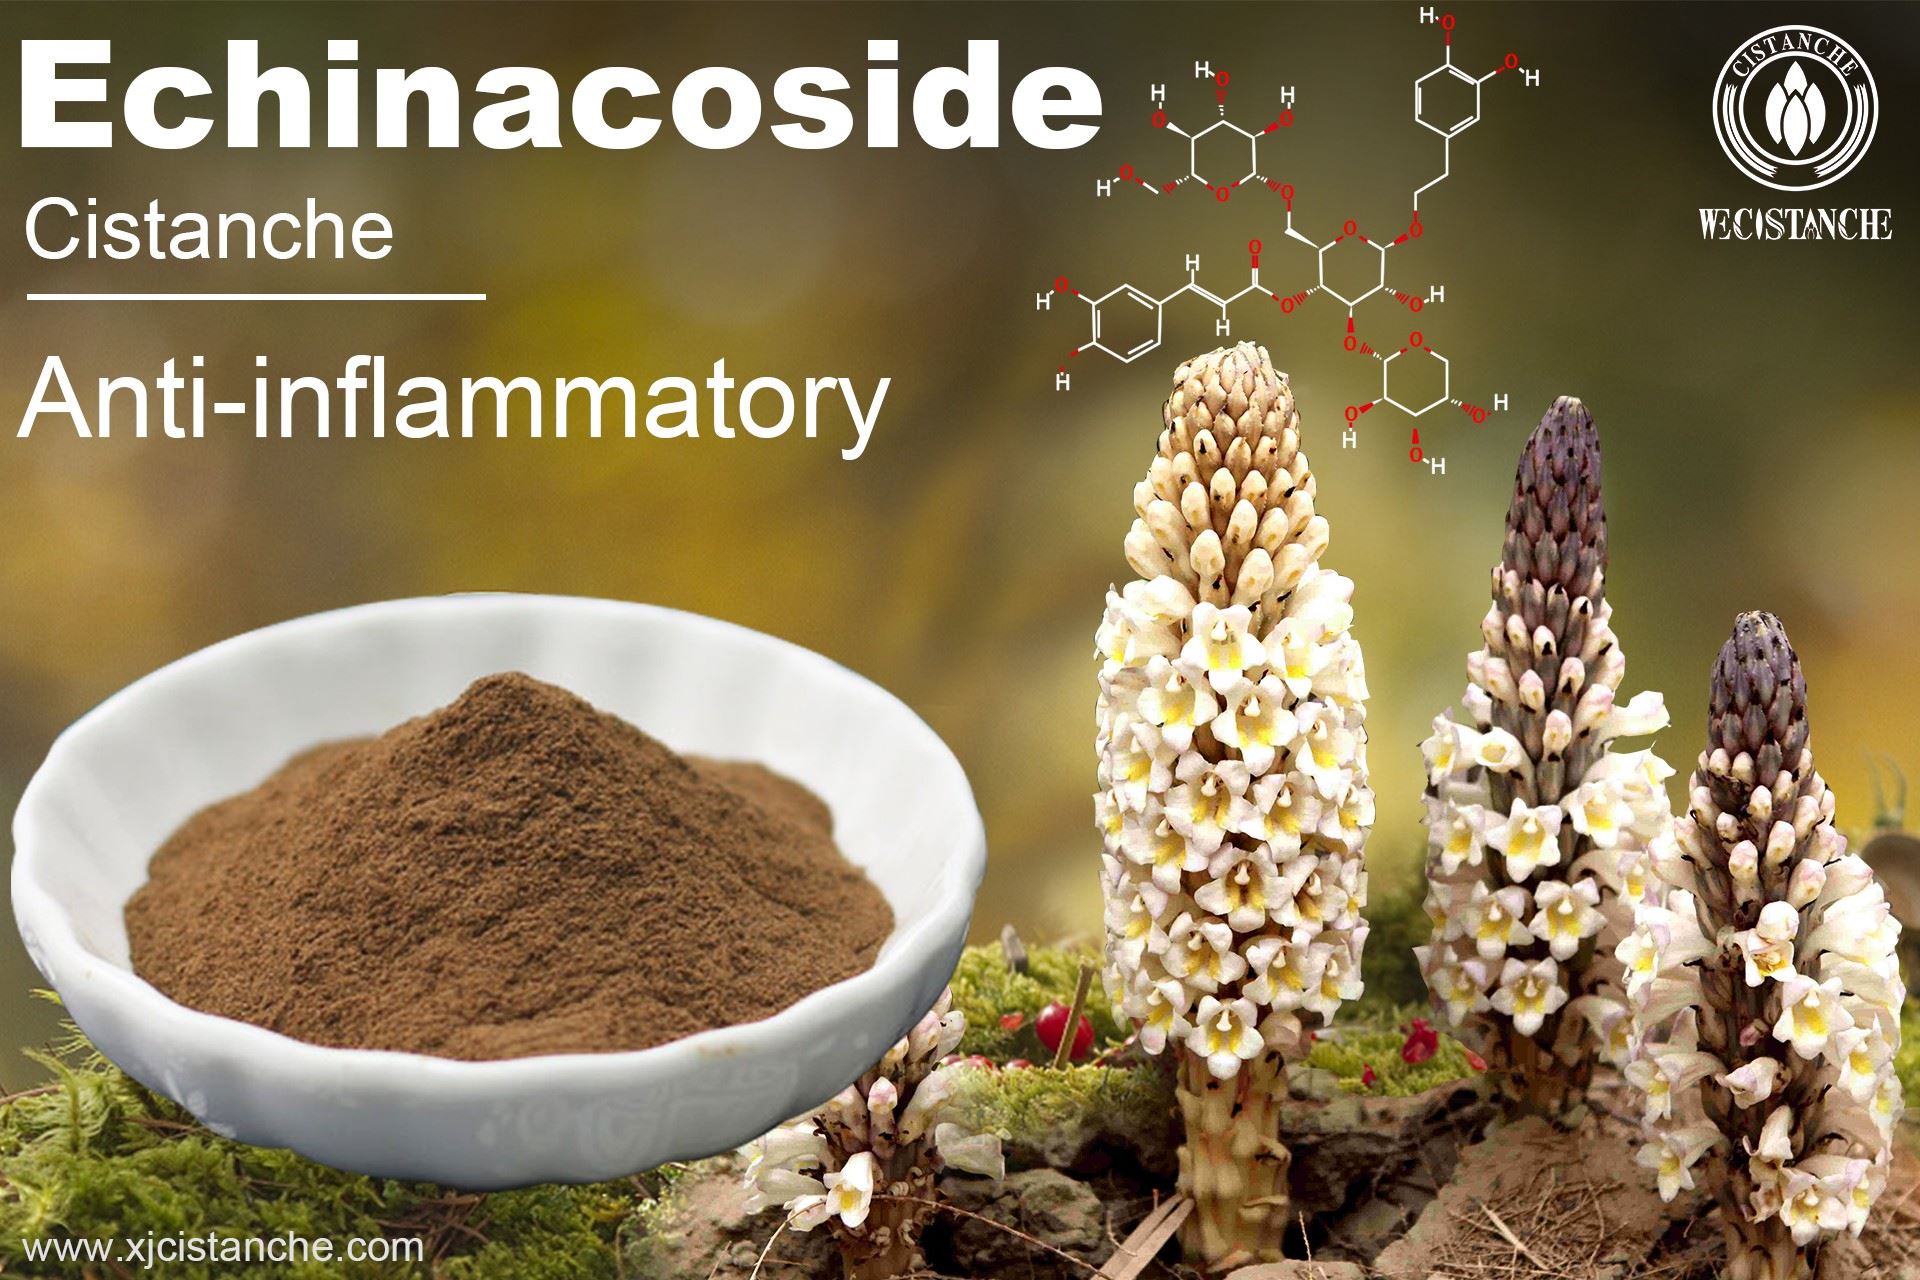
CistancheHoffmg. Et Link je vytrvalá parazitická bylina z čeledi Orobanchaceae. HerbaCistanche, stonekCistanche deserticolaY. c MA aCistanche tubulosa(Schenk) R. Weight byly použity jako tonikum k léčbě ledvinové nedostatečnosti, impotence, chorobné leukorey a senilní zácpy (1), což může být způsobeno jeho androgenem podobným nebo regulačním účinkem na pohlavní hormony (2).Echinakosid(EcH; c35H46020;
molekulová hmotnost, 786,73; Obr. 1), je jedním z fenylethanoidových glykosidů (PhGs) izolovaných ze stonků HerbaCistanchea vykazuje četné biologické vlastnosti, včetně antioxidačních, antiagingových, protizánětlivých, hepatoprotektivních a neuroprotektivních účinků (3). Moderní farmakologické výzkumy prokázaly, že různé složky HerbaCistanche, včetně EcH, akteosidu, kankanózy, kankanosidu F a cistanosidu F, vykazují vazorelaxační aktivitu (4).
Endotel je kritickým regulátorem vaskulatury a oxid dusnatý (NO) je důležitým relaxačním faktorem uvolňovaným endoteliálními buňkami. Difúzí do buněk hladkého svalstva NO aktivuje guanylátcyklázu, zvyšuje hladiny cyklického guanosinmonofosfátu (cGMP) a poté aktivuje cGMP-dependentní proteinkinázy (PKG) k podpoře relaxace hladkého svalstva (5). Již dříve bylo prokázáno, že EcH při 350-400 µM přímo působí na hladké svalstvo cév a inhibuje hypoxií indukovanou proliferaci buněk hladkého svalstva plicní artérie potkana (6), zatímco 30-300 µM EcH způsobil akutní vazorelaxaci endotelu. intaktní prstence způsobem závislým na koncentraci a zvýšenou produkci cGMP v hladkém svalu corpus cavernosum prstenců aorty kontrahovaných fenylefrinem (7). Otevřením kanálů NO-cGMP-PKG-BKca v buňkách hladkého svalstva potlačilo 100 nebo 300 uM EcH noradrenalinem indukovanou kontrakci v plicních tepnách krys, zejména v prstencích s obnaženým endotelem (8). Endoteliální buňky jsou klíčovými regulátory kardiovaskulární funkce a v několika případech bylo zjištěno, že relaxace závislá na endotelu byla způsobena přenosnou látkou, jako je NO, uvolněnou z endotelu (9). Avšak protisměrný molekulární mechanismus produkce NO indukované EcH ve vaskulárních endoteliálních buňkách vyžaduje další výzkum.
Ve vaskulárním endotelu je tvorba NO primárně zprostředkována endoteliální NO syntázou (eNOS). Několik skupin prokázalo, že fosfatidylinositol 3-kinázová (PI3K) dráha aktivuje serin-threonin proteinkinázu B (Akt), která způsobuje přímou fosforylaci eNOS na serinu 1177 (Ser1177) (10). Androgenní receptor (AR) je členem podrodiny jaderných receptorů s3, který kanonicky modifikuje genovou expresi. Podílí se na tom lokalizace AR do kaveol v buněčné membráně
negenomická regulace funkce endoteliálních buněk nebo genové exprese spuštěním kaskády c-Src/PI3K/Akt, která nakonec vede k fosforylaci eNOS a produkci NO (11). V lidských endoteliálních buňkách aorty testosteron aktivuje signalizaci PI3K/Akt a rychle indukuje produkci NO díky přímé interakci AR a podjednotky p85 PI3K na kardiovaskulárním systému (12). Bylo hlášeno, že EcH zhoršuje symptomy související s nedostatkem hormonů a uplatňuje své účinky podobné androgenům díky kompetitivní vazbě na AR namísto testosteronu (2). Tato studie proto předpokládala, že dráha PI3K/Akt se může podílet na produkci NO prostřednictvím fosforylace eNOS závislé na AR indukované EcH. Cílem této studie bylo vyhodnotit následující účinky EcH: i) indukce produkce NO a fosforylace eNOS; ii) zapojení AR do fosforylace eNOS; a iii) aktivace PI3K/Akt dráhy v lidských endoteliálních buňkách pupečníkové žíly (HUVEcs), dobře známý experimentální model pro studium regulace funkcí endotelových buněk a angiogeneze (13).
Materiály a metody
Chemikálie a činidel.EcH (čistota, 92,5 procenta) byl získán z National drug Reference Standards v National Institute for the Food and Drug control. Protilátky proti p-Akt (Ser473; kat. č. ab8805), Akt (kat. č. ab81283), p-eNOS (Ser1177; kat. č. ab184154) a eNOS (kat. č. ab76198) byly zakoupeny od Abcam. Inhibitory nilutamidu a IcI 182780 byly získány od Sigma-Aldrich; Merck KGaA. L-NAME byl zakoupen od Adamas-Beta, Ltd. a wortmannin byl zakoupen od Pribolab.
Buňka kultura a drogu léčba.HUVE byly získány od Sciencell Research Laboratories Inc. a kultivovány v médiu pro endoteliální buňky (EcM; Sciencell Research Laboratories) s 5 % (v/v) fetálního bovinního séra (FBS; Gibco, Thermo Fisher Scientific, Inc.) a 1 % endoteliálních buněk růstový doplněk (ECGS) při 37˚C (5 procent CO2 a 95 procent vlhkosti) (14). Po dosažení konfluence byly buňky štěpeny trypsinem a naneseny v EcM s 1 procentem FBS a 1 procentem EcGS. Pro všechny experimenty byly HUVEc naneseny v koncentraci 1x10⁴/ml a pěstovány až do dosažení konfluence. Před ošetřením EcH nebo jinými stimulátory byly buňky inkubovány v EcM bez fenolové červeně bez FBS a EcGS po dobu 6 hodin pro indukci
zastavení růstu. V inhibičních experimentech byly HUVEc preinkubovány s různými antagonisty nebo inhibitory, včetně 10uM nilutamidu, 10uM IcI 182780, 0,5mM L-NAME nebo 5uM wortmanninu, po dobu 30 minut, s nebo bez ECH, při 37˚C. Ve všech skupinách, včetně kontroly, bylo jako rozpouštědlo použito dMSO ve stejných koncentracích 0,001 procenta.
Měření intracelulární ŽÁDNÁ výroba.
Relativní změny v cytosolické koncentraci NO v HUVEc byly monitorovány pomocí fluorescenční NO sondy DAF‑FM (Cayman Chemical Company), jak již bylo uvedeno (12). Stručně, buňky byly naneseny 5 uM DAF-FM diacetátem po dobu 20 minut při 37 °C v černé mikrotitrační destičce a několikrát promyty PBS (pH 7,4). Fluorescence byla stanovena při excitačních a emisních vlnových délkách 495 a 515 nm pomocí fluorescenční čtečky mikrodestiček (Biotek Synergy H4; BioTek Instruments, Inc.) a kompaktního inverzního mikroskopu (Nikon eclipse Ts2R; Nikon corporation).
Západní skvrna analýza.Jak bylo uvedeno dříve (15), konfluentní monovrstvy buněk byly dvakrát promyty v ledově chladném PBS a lyžovány pufrem RIPA (P0013d; Beyotime Institute of Biotechnology). Koncentrace proteinu v supernatantu byla měřena pomocí testovací metody bicinchonové kyseliny (16). Následně bylo naneseno 30 ug proteinu na dráhu, separováno pomocí 10% polyakrylamidových gelů a přeneseno na polyvinylidendifluoridové membrány. Membrány byly blokovány 5% odstředěným mlékem po dobu 1 hodiny při 25 °C. Po inkubaci s monoklonálními protilátkami proti Akt (1:1, 000 ředění), p-Akt (1:500 ředění), eNOS (1:2, 000 ředění) nebo p-eNOS (1 :1,000 ředění) při teplotě 4 °C přes noc, membrány byly promyty TBST (obsahujícím 0,1 procenta Tween-20) 4krát po dobu ~15 minut na jedno promytí při 25˚C. Následně byly membrány inkubovány se sekundárními protilátkami konjugovanými s křenovou peroxidázou (1:5, 000 ředění; anti-myší protilátka, kat. č. A0216, nebo anti-králičí protilátka, kat. č. A0208, Beyotime Institute biotechnologie) po dobu 1 hodiny při 25 °C a detekováno pomocí vylepšené chemiluminiscenční soupravy (kat. č. 32209, Thermo Fisher Scientific, Inc.). Intenzity pásů byly kvantifikovány pomocí softwaru pro analýzu gelu Image J, verze 1.8.{43}} (National Institutes of Health).
Malý zasahující (si) RNA příprava a transfekce.Dlouhé dvouřetězcové RNA byly syntetizovány cílovou mRNA AR a estrogenového receptoru (ER) se sekvencemi uvedenými v tabulce I. Podmínky pro knockdown siRNA zahrnovaly transfekci HUVEC při 70procentní konfluenci udržované v neantimikrobiálním prostředí. kultivační médium v 60 mm kolagenem potažených kultivačních miskách. Transfekce 5 nM AR-siRNA nebo 10 nM ER-siRNA činidlem Lipofectamine 3000 (Invitrogen; Thermo Fisher Scientific, Inc.) byla provedena samostatně podle protokolů výrobce. Účinnost transfekce byla hodnocena pomocí kvantitativní analýzy PcR reverzní transkripce (RT-qPcR), jak již bylo dříve uvedeno (17). Podmínky termocyklování byly následující: 10 minut při 95 °C; 40 cyklů 95 °C po dobu 5 sekund a 60 °C po dobu 1 minuty a křivka tání při 95 °C po dobu 15 sekund, 60 °C po dobu 1 minuty a 95 °C po dobu 15 sekund; pro každý vzorek byly provedeny tři nezávislé biologické replikáty. Následující experimenty byly prováděny 48 hodin po transfekci. Páry primerů byly navrženy pomocí softwaru Primer Premier v5.0 (PREMIER Biosoft) s následujícími sekvencemi: AR vpřed, 5'-GGTTAcAccAAAGGGcTAGAA-3' a zpět, 5'-GAcTTGTAGAGAGAcAGGGTAGA-3'; ER vpřed, 5'-ccAGTAccA ATGAcA AGG GAAG -3' a zpět, 5'-TcAcAGGAccAGAcTccATAA-3'; a GAPdH vpřed, 5'-cAGGGcTGcTTTTAAcTcTGGTAA-3' a zpět, 5'-GGGTGGAATcATATTGGAAcATGT-3'.

Statistický analýza.Všechny údaje jsou uvedeny jako průměr ± standardní odchylka. Statistická srovnání mezi skupinami byla provedena pomocí Kruskal-Wallisova testu nebo dvoucestné ANOVA s Tukeyho post hoc testem pro vícenásobná srovnání. P<0.05 was="" considered="" to="" indicate="" a="" statistically="" significant="">
Výsledek
ECH navozuje NE Výroba a eNOS fosforylace.Jak je ukázáno na obr. 2A a B, 1 uM ECH významně zvýšilo intracelulární produkci NO v HUVEc ve srovnání s negativními kontrolními buňkami, zatímco stimulační účinek EcH byl zeslaben na kontrolní úroveň předošetřením L-NAME. Pro získání optimální koncentrace byla fosforylace eNOS testována 60 minut po ošetření EcH v koncentracích
z {{0}}, 0.01, 0.1, 1 a 10 µM. Výsledky odhalily, že EcH v koncentracích 0,01-10 µM může významně indukovat fosforylaci eNOS na Ser 1177 způsobem závislým na koncentraci, přičemž maximální fosforylace eNOS pozorovaná při indukci 10 µM EcH (obr. 2c a d). Dále, fosforylace eNOS na Ser1177 byla zkoumána analýzou western blot v 0, 5, 15, 30, 60 a 120 minutách po inkubaci s 1 uM EcH. Bylo pozorováno, že fosforylace eNOS byla rychle spuštěna EcH v 5 minutách a pokračovala v jejím zvyšování až do 30 minut inkubace (obr. 2E a F). Následně, navzdory ošetření EcH, relativní velikost fosforylace eNOS zůstala stabilní po 30 minutách; proto EcH neovlivnila celkovou expresi eNOS (obr. 2c a E).
AR zprostředkovává ECH-indukované NE Výroba a eNOSinterferující účinky AR-siRNA-1 a ER-siRNA-2 byly nejúspěšnější v inhibici exprese AR a ER u HUVEc v této studii (obr. 3). Následně byl použit antagonista pro analýzu funkce inhibice AR a siRNA pro analýzu ztráty funkce AR, aby se vyhodnotila účast AR na aktivaci eNOS indukované EcH a produkci NO. Jak je znázorněno na obr. 4A, 1 uM ECH významně zvýšil produkci NO v HUVEc (P<0.05). pretreatment="" with="" the="" ar="" antagonist="" nilutamide="" (10="" µm)="" abolished="" ech-induced="" no="" production,="" whereas="" ici182789="" (an="" er="" antagonist)="" did="" not="" exert="" the="" same="" effects.="" furthermore,="" the="" effects="" of="" sirna-mediated="" ar="" knockdown="" on="" no="" production="" were="" examined="" in="" cultured="" cells,="" indicating="" that="" no="" production="" was="" diminished="" by="" transfection="" with="" ar="" sirnas;="" however,="" it="" was="" not="" affected="" by="" er="" sirnas="" or="" control="" random="" sirnas="" (fig.="" 4b).="" representative="" western="" blots="" and="" semi-quantitative="" analysis="" (fig.="" 4c="" and="" d)="" revealed="" that="" the="" phosphorylation="" of="" enos="" induced="" by="" ech="" was="" inhibited="" by="" nilutamide="" and="" ici182789,="" and="" that="" the="" inhibitory="" effect="" of="" nilutamide="" on="" ech-induced="" enos="" activation="" was="" significantly="" higher="" compared="" with="" that="" of="" ici182789,="" which="" indicated="" that="" inhibi-="" tion="" of="" ar="" function="" had="" a="" greater="" impact="" than="" er="" on="" enos="" phosphorylation="" induced="" by="" ech.="" similarly,="" the="" phosphoryla-="" tion="" of="" enos="" induced="" by="" ech="" was="" reduced="" significantly="" in="" cells="" transfected="" with="" ar-sirna="" and="" er-sirna="" compared="" with="" the="" control="" random="" sirna;="" the="" inhibitory="" effect="" of="" ar‑sirna="" on="" ech‑induced="" enos="" activation="" was="" significantly="" stronger="" compared="" with="" that="" of="" er-sirna="" (fig.="" 4e="" and="" f).="" therefore,="" the="" aforementioned="" results="" suggested="" that="" ech="" may="" cause="" ar-dependent="" activation="" of="" enos="" to="" induce="" no="" production="" in="">
ECH aktivuje a PI3K/Akt cesta.V této studii byla fosforylace Akt na Ser473 testována 60 min po inkubaci EcH při koncentracích 0, 0.01, 0.1 1 a 10 uM. Výsledky ukázaly, že EcH (0,{10}} µM) může významně indukovat fosforylaci Akt. Relativní úrovně exprese p-Akt vrcholily při 1 a 10 uM ošetření EcH (obr. 5A a B). Kromě toho byla fosforylace Akt zkoumána analýzou Western blot v 0, 5, 15, 30, 60 a 120 minutách po přidání 1 uM EcH ke kulturám HUVEc. Jak je znázorněno na obr. 5c a d, EcH rychle zvýšila fosforylaci Akt po 5 minutách inkubace a maximální hladina proteinu p-Akt byla pozorována po 60 minutách. Naproti tomu EcH neovlivnil celkovou expresi Akt (obr. 5A a c). Kromě toho, aby se prozkoumal potenciální účinek dráhy PI3K na fosforylaci eNOS, byly HUVEc před aplikací EcH předem ošetřeny inhibitorem PI3K wortmanninem. Bylo zjištěno, že wortmannin snižuje produkci NO indukovanou EcH na základní úroveň (obr. 5E). Podobný jev byl pozorován pomocí fluorescenční mikroskopie při zkoumání fluorescence DAF-FM indukované EcH (obr. 5F). Kromě toho může mít wortmannin schopnost zrušit rychlou fosforylaci eNOS v HUVEc (obr. 5G a H). Výše uvedené výsledky naznačují, že EcH může aktivovat fosforylaci eNOS a produkci NO prostřednictvím dráhy PI3K/Akt.

Diskuse
EcH je přírodní sloučenina izolovaná z HerbaCistanches různými farmakologickými vlastnostmi. Již dříve bylo prokázáno, že EcH projevoval vaskulární relaxační účinek závislý na endotelu otevřením kanálů NO-cGMP-PKG-BKca v buňkách hladkého svalstva krevních cév (7,8). Současná zjištění poskytují důkazy, že ECH vyvíjela aktivaci eNOS závislou na AR k indukci produkce NO se zapojením signální dráhy PI3K/Akt ve vaskulárních endoteliálních buňkách.
Jako nejvnitřnější vrstva cévní stěny může endotel rychle snímat a reagovat na změny v průtoku krve, což má za následek přenos signálu do podložních buněk hladkého svalstva za účelem regulace vaskulárního tonu (18). Bylo široce publikováno, že existuje mnoho vazodilatačních sloučenin odvozených od endotelu, přičemž nejtypičtější látkaje NO, vytvořený z endoteliální izoformy eNOS, což vede k fosforylaci (19). Za normálních podmínek zůstává eNOS neaktivní, když je navázán na kaveolin, a je aktivován následující posloupností událostí v endotelubuňky: i) eNOS se disociuje od kaveolinu-1 a asociuje se s ca2 plus /caM; ii) protein tepelného šoku (HSP)90 podporuje eNOSdimerizaci a upřednostňuje sterickou formaci pro rekrutování Akt; a iii) kalcineurin defosforyluje Thr495 pro posílení aktivačního stavu (20). V této studii byla produkce NO významně zvýšena v HUVEC ošetřených 1 uM ECH. Tento jev byl podobný předchozím výsledkům, kdy EcH zvyšoval uvolňování NO a stimuloval syntézu cGMP v prstencích hrudní aorty potkana (7). Kromě toho se dvě fosforylační místa, Ser1177 a Thr495, zdají být zvláště důležitá pro regulaci aktivity eNOS (20) a tato studie odhalila, že EcH vyvolal akutní fosforylaci eNOS na Ser1177 v závislosti na koncentraci. Stimuly spojené s účinky na hladiny proteinu eNOS navíc určují především stabilitu mRNA eNOS, a pokud je stimul udržován delší dobu, dochází k transkripci mRNA eNOS prostřednictvím mitogenem aktivované proteinkinázy a jaderného faktoru κB (20). Celkově vzato tato pozorování naznačují, že aktivace eNOS na Ser1177 je zodpovědná za syntézu NO indukovanou EcH.
Kromě toho rostoucí počet studií prokázal, že AR je exprimován v endoteliálních buňkách v řadě lidských tkání, což naznačuje potenciální roli androgenů a jejich analogů, které působí prostřednictvím procesů zprostředkovaných AR, při modulaci lidského endotelu. buněčná homeostáza (21). V neklasické dráze PI3K/Akt může AR aktivovat PI3K přímou interakcí s regulační podjednotkou PI3K p85 (22). Tato studie prokázala, že antagonista AR nebo AR siRNA snižuje produkci NO a fosforylaci eNOS indukovanou EcH v HUVEc. Již dříve bylo publikováno, že estrogeny indukují fosforylaci eNOS a stimulují produkci NO prostřednictvím klasické aktivace ER v endoteliálních buňkách (23) a podávání ECH významně zvyšuje expresi ER v děloze (24). V této studii byl však účinek AR výraznější ve srovnání s účinkem ER na aktivaci eNOS indukovanou EcH a produkci NO. Kromě toho bylo pozorováno, že EcH způsobila akutní produkci NO během minut prostřednictvím aktivace eNOS v HUVEc zahrnující AR, což je v souladu s negenomickou povahou odpovědi v endoteliálních buňkách. AR je v cytoplazmě spojen s lešením proteinů, včetně HSP90, HSP70 a kinázy Src, a může být transportován na membránu z komplexu AR během 5 minut po léčbě testosteronem (23). Na základě strategie „target fishing“ byl HSP90 identifikován jako cíl spojený s PhGs, což naznačuje, že EcH může usnadnit disociaci AR od proteinů lešení (25). Další studie naznačila, že v hypotalamu se EcH může kombinovat s kapsou AR na aminokyselinách Met-894 a Val-713 a inhibovat transport cytoplazmatické AR do jádra (26). Avšak základní mechanismus, kterým EcH zprostředkovává cytoplazmatickou translokaci AR na membránu, vyžaduje další zkoumání. Proto je nutný další výzkum k objasnění mechanismu, kterým EcH dosahuje aktivace eNOS závislé na AR a jak může být spojena s vazbou na HSP90 ve vaskulárních endoteliálních buňkách.
Dráha PI3K/Akt je jednou z nejdůležitějších signálních kaskád, jejíž aktivace je indukována produkcí fosfatidylinositol-3,4,5-trisfosfátu k navázání N-terminální pleckstrinové homologní domény Ser/ Thr kináza Akt. To usnadňuje přijímání Akt do plazmatické membrány (27). Dráha PI3K/Akt může hrát důležitou roli při kontrole relaxace závislé na NO indukované EcH.
Tato studie odhalila, že EcH-indukovaná produkce NO byla významně snížena, když byly buňky inkubovány s PI3K inhibitorem wortmanninem. Předchozí zpráva prokázala, že 15 mg/kg EcH aktivovalo signální dráhu PI3K/Akt v buňkách kostní dřeně potlačených 5-fluorouracilem (28). V této studii inhibitory PI3K významně snížily EcH-indukovanou fosforylaci eNOS na Ser1177. Kromě toho byla aktivita Akt převážně regulována upstream regulačními cestami, zejména fosforylací závislou na PI3K na Ser473 (20). V této studii EcH indukoval Akt fosforylaci na Ser473 způsobem závislým na dávce; podobně předchozí studie prokázala, že 5, 10 nebo 20 uM EcH má kardioprotektivní účinek proti anoxii/reperfuzní léčbě způsobem závislým na dávce potenciálně upregulací p-Akt a SLc8A3 (29). Transkripční regulace genu Akt zůstává do značné míry neznámá (30); proto se tato studie zaměřila na post-transkripční regulační účinky EcH na Akt. Vezmeme-li v úvahu výše uvedená zjištění, bylo vyvozeno, že aplikace EcH na HUVEcs může vést k aktivaci dráhy PI3K/Akt, která fosforyluje eNOS a následně zvyšuje produkci NO.
Závěrem lze říci, že EcH je přírodní produkt, který se izoluje hlavně z HerbaCistanche.Potenciální mechanismus, který je základem EcH-indukované produkce NO v endoteliálních buňkách, může zahrnovat následující (obr. 6): i) EcH působí jako funkční ligand AR, který je lokalizován v caveolae v buněčné membráně; ii) PI3K se váže na hydrofobní doménu Akt na Ser473 a usnadňuje přijímání Akt do buněčné membrány; iii) nábor PI3K/Akt kaskád spouští AR-dependentní fosforylaci eNOS; a iv) tvorba NO je zprostředkována eNOS v endoteliálních buňkách. Pozorování, že EcH indukuje produkci NO prostřednictvím AR-dependentní fosforylace eNOS se zapojením PI3K/Akt dráhy, může přispět k dalšímu pochopení vazorelaxačních účinků EcH. Kromě toho může být EcH zacílený na dráhy NO odvozené od endotelu způsoben negenomickými účinky. Proto tato studie může pomoci objasnit mechanismy, kterými EcH uplatňuje své farmakologické účinky k prevenci kardiovaskulárních onemocnění.
Poděkování
Nelze použít.
Financování
Tato studie byla podpořena Čínskou národní přírodní vědou (grant č. 81503333).
Dostupnost z data a materiálů
Soubory dat vygenerované a analyzované během této studie jsou k dispozici od odpovídajícího autora na přiměřenou žádost.
autorů příspěvky
LG a XL vymyslely a navrhly experimenty. dL a YZ provedli experimenty. WZ a JG analyzovaly data. Společnost LG navrhla rukopis. XL zkontroloval a upravil rukopis. Všichni autoři přečetli a schválili konečný rukopis.
1202 GUet al: ECHINACOSID VYVOLÁVÁ PRODUKCI OXIDU DUSIČNÉHO POMOCÍ AR-ZÁVISLÉ PI3K/AKT PATHWAY
Etika schválení a souhlas na účastnit se
Nelze použít.
Trpěliví souhlas pro vydání
Nelze použít.
Soutěžící zájmy
Autoři prohlašují, že nemají žádné konkurenční zájmy.
Reference
1. komise z čínského lékopisu:CistancheHerba. In: Lékopis Čínské lidové republiky 1. brada. Med. Sci. Tisk, Peking, str. 135, 2015.
2. Jiang Z, Wang J, Li X a Zhang X: Echinakosid aCistanche tubulosa(Schenk)R. wight zmírňuje poškození varlat a spermií vyvolané bisfenolem A u potkanů prostřednictvím steroidogenních enzymů regulovaných osou gonád. J Ethnopharmacol 193: 321-328, 2016.
3. Liu J, Yang L, dong Y, Zhang B a Ma X: Echinacosid, neocenitelný přírodní produkt v léčbě neurologických a jiných poruch. Molekuly 23: piiE1213, 2018.
4. Yoshikawa M, Matsuda H, Morikawa T, Xie H, Nakamura S a Muraoka O: Fenylethanoidní oligoglykosidy a acylované oligocukry s vazorelaxační aktivitou zCistanche tubulosa. Bioorg Med chem 14: 7468-7475, 2006.
5. Arnold WP, Mittal cK, Katsuki S a Murad F: Oxid dusnatý aktivuje guanylátcyklázu a zvyšuje hladiny guanosin 3':5'-cyklického monofosfátu v různých tkáňových přípravcích. Proč Natl Acad Sci USA 74: 3203-3207, 1977.
6. Gai XY, Tang F, Ma J, Zeng KW, Wang SL, Wang YP, Wuren TN, Lu dX, Zhou Y a Ge RL: Antiproliferativní účinek echinakosidu na buňky hladkého svalstva plicní tepny potkana při hypoxii. J Pharmacol Sci 126: 155-163, 2014.
7. He WJ, Fang TH, Ma X, Zhang K, Ma ZZ a Tu PF: Echinakosid vyvolává endotel-dependentní relaxaci v prstencích krysí aorty cestou NO-cGMP. Planta Med 75: 1400-1404, 2009.
8. Gai XY, Wei YH, Zhang W, Wuren TN, Wang YP, Li ZQ, Liu S, Ma L, Lu dX, Zhou Y a Ge RL: Echinakosid vyvolává vazorelaxaci plicní arterie potkana otevřením NO-cGMP-PKG- BKca kanály a snížení intracelulárních hladin ca2 plus. Acta Pharmacol Sin 36: 587-596, 2015.
9. Maruhashi T, Kihara Y a Higashi Y: Hodnocení vazodilatace nezávislé na endotelu: Od metodologie ke klinickým perspektivám. J Hypertens 36: 1460-1467, 2018.
10. Ahmad KA, Ze H, chen J, Khan FU, chen X, Xu J a derivát na endoteliálních buňkách lidské pupečníkové žíly proti poškození vyvolanému oxidačním stresem: Zapojení antioxidace a signálních drah PI3k/Akt/eNOS/NO. Biomed Pharmacother 106: 1734-1741, 2018.
11. Yu J, Akishita M, Eto M, Koizumi H, Hashimoto R, Ogawa S, Tanaka K, Ouchi Y a Okabe T: Src kináza zprostředkovává negenomickou aktivaci signální kaskády závislou na androgenním receptoru vedoucí k endoteliální syntáze oxidu dusnatého . Biochem Bioph Res commun 424: 538-543, 2012.
12. Yu J, Akishita M, Eto M, Ogawa S, Son B, Kato S, Ouchi Y a Okabe T: Androgenní receptor-dependentní aktivace endoteliální syntázy oxidu dusnatého ve vaskulárních endoteliálních buňkách: Role fosfatidylinositolu {{3} }kinase/Akt pathway.Endocrinology 151: 1822-1828, 2010.
13. Pittarella P, Squarzanti dF, Molinari c, Invernizzi M, Uberti F a Reno F: NO-dependentní proliferace a migrace indukovaná vitaminem d v HUVEc. J Steroid Biochem 149: 35-42, 2015.
14. He Y, Luan Z, Fu X a Xu X: Nadměrná exprese uncoupling proteinu 2 inhibuje vysokou glukózou indukovanou apoptózu endoteliálních buněk lidské pupeční žíly. Int J Mol Med 37: 631-638, 2016.
15. Xiao-Hongd, chang-Qin X, Jian-HuaH, Wen-Jiang Z a Bing S: Icariin zpožďuje homocysteinem indukovanou endoteliální buněčnou senescenci zahrnující aktivaci signální dráhy PI3K/AKT-eNOS. Pharm Biol 51: 433-440, 2013.
16. Smith PK, Krohn RI, Hermanson GT, Mallia AK, Gartner FH, Provenzano Md, Fujimoto EK, Goeke NM, Olson BJ a Klenk dc: Měření bílkovin pomocí kyseliny bicinchoninové. Anal Biochem 150: 76-85, 1985.
17. Gu L, Zhong X, Lian d, Zheng Y, Wang H a Liu X: Biosyntéza triterpenoidů a transkripční odpověď vyvolaná oxidem dusnatým v submerzní fermentaciGanoderma lucidum. Process Biochem 60: 19-26, 2017.
18. Ellinsworth dc, Sandow SL, Shukla N, Liu Y, Jeremy JY a Gutterman dd: Endotelem odvozená hyperpolarizace a koronární vazodilatace: rozmanité a integrované role epoxye-ikosatrienoových kyselin, peroxidu vodíku a mezerových spojů. Mikrocirkulace 23: 15-32, 2016.
19. Freed JK a Gutterman dd: komunikace je klíčová: Mechanismy mezibuněčné signalizace při vazodilataci. J cardiovasc Pharm 69: 264-272, 2017.
20. Quillon A, Fromy B a debret R: Snímání endotelového mikroprostředí vedoucí k vazodilataci zprostředkované oxidem dusnatým: Přehled nervových a biomechanických signálů. Oxid dusnatý 45: 20-26, 2015.
21. Torres-Estay V, carreno dV, Francisco IF, Sotomayor P, Godoy AS a Smith GJ: Androgenní receptor v lidských endoteliálních buňkách. J Endocrinol 224: 131-137, 2015.
22. deng Q, Zhang Z, Wu Y, Yu WY, Zhang J, Jiang ZM, Zhang Y, Liang H a Gui YT: Negenomické působení androgenů je zprostředkováno rychlou fosforylací a regulací obchodování s androgenními receptory. Cell Physiol Biochem 43: 223-236,2017.
23. de Oliveira TS, de Oliveira LM, de Oliveira LP, costa RMd, Tostes Rc, Georg Rc, costa EA, Lobato NS, Filgueira FP a Ghedini Pc: Aktivace PI3K/Akt dráhy zprostředkované estrogenovými receptory odpovídá za estronem indukovanou vaskulární aktivace cGMP signalizace. Vascul Pharmacol 110: 42-48, 2018.
24. Li F, Yang X, Yang Y, Guoc, Zhangc, Yang Z a Li P: Antiosteoporotická aktivita echinakosidu u krys po ovariektomii. Fytomedicína 20: 549-557, 2013.
25. Zeng KW, Liao LX, Wan YJ, Jiang Y a Tu PF: Identifikace farmakologických cílů a analýza účinnosti fenylethanoidových glykosidů zCistanchesHerba založená na strategii „cílového rybolovu“. brada Tradit Herbal drugs 49: 173-178, 2018.
26. Jiang Z, Zhou B, Li X, Kirby GM a Zhang X: Echinakosid zvyšuje množství spermií u potkanů cílením na hypotalamický androgenní receptor. Sci Rep 8: 3839-3850, 2018.
27. coffer PJ, Jin J a Woodgett JR: Proteinkináza B (c-Akt): Multifunkční mediátor aktivace fosfatidylinositol 3-kinázy. Biochem J 335, 1-13, 1998.
28. Wang S, Zheng G, Tian S, Zhang Y, Shen L, Pak Y, Shen Y a Qian J: Echinakosid zlepšuje hematopoetickou funkci u myší s myelosupresí vyvolanou 5-FU. Life Sci 123: 86-92, 2015.
29. chen M, Wang X, Hu B, Zhou J, Wang X, Wei W a Zhou H: Ochranné účinky echinakosidu proti anoxii/reperfuznímu poškození v buňkách H9c2 prostřednictvím up-regulace p-AKT a SLc8A3. Biomed Pharmacother 104: 52-59, 2018.
30. Abeyrathna P a Su Y: Kritická role Akt v kardiovaskulární funkci. Vascul Pharmacol 74: 38-48, 2015.