Posílení protirakovinné aktivity taxolu „endofyt jojoby“ Aspergillus Favus prostřednictvím konjugace s nanočásticemi zlata zprostředkované ozářením
May 30, 2023

Taxol Alternativní čínské byliny Cistanche
Klíčová slova:Aspergillus favus · Jojoba · Endofytické houby · Zlaté nanočástice · Taxol · -Ozáření · Optimalizace výživy
Úvod
Taxol je jedním z nejvíce komercializovaných širokospektrýchprotirakovinné léky[1]. Aktivita Taxolu vychází z jeho jedinečné specifičnosti pro vazbu s buněčným heterodimerem tubulinových podjednotek, čímž podporuje polymeraci tubulinu, čímž narušuje mitotické dělení nádorových buněk [2]. Taxol vykazoval silnou aktivitu proti rakovině prsu, plic, hlavy a krku, rakovině dělohy a pokročilým formám Kaposiho sarkomu [3]. Taxol byl nejprve vyroben z kůry tisu Taxus brevifolia "čeleď Taxaceae" [4, 5]; nicméně nižší výtěžek Taxolu než je<0.001%, i.e., to produce 1 g Taxol, it requires~10 kg of plant bark that collected from 3 to 5 trees [6], is the main challenge. In addition, the vulnerability of this plant to unpredicted fluctuations with the environmental conditions strongly influences the Taxol yield, heterogeneity, and reproducibility [7–9]. Exploring the Taxol producing potency of the endophytic fungi inhabiting medicinal plants raises the hope for overcoming the low yield by the above-mentioned method [10, 11], due to their fast growth, cost-effectiveness, independence on climatic changes, and feasibility for genetic manipulation [12, 13]. Subsequently, a plethora of endophytic fungi with metabolic potency to produce Taxol has been reported as reviewed [1, 14–25]. However, the anticipation of these fungi for industrial production of Taxol has been challenged by the attenuation and loss of Taxol productivity by the fungal storage and multiple subculturing [21, 22, 26–28]. Thus, searching for a novel fungal isolate with affordable metabolic stability and sustainability for Taxol production is the challenge. Medicinal plants of well-known ethnopharmacological relevance and traditional pharmaceutical applications could be the repertoire of novel fungal isolates with unique features of metabolic stability for Taxol biosynthesis. Among the most common medicinal plants, jojoba "Simmondsia chinensis" is a monogenetic dioecious grey-green shrub belonging to the Simmondsiaceae family. Jojoba seeds contain up to 65% of light golden and odorless high-viscosity oily metabolites [29]. Jojoba oil has been frequently used for the relief of headaches, throat inflammation, and wound treatment [30, 31]. As well as Jojoba oil has been used as an anti-inflammatory and antimicrobial agent [30, 31]. The leaves of jojoba are rich with antioxidant flavonoid compounds that are traditionally used for treating of various disorders such as astma,zánět, arakovina[32]. Hlavním cílem této práce tedy bylo prozkoumat nový houbový izolát z jojobové rostliny s jedinečnou metabolickou stabilitou pro produkci taxolu, vyhodnotit různé přístupy k maximalizaci jejich výtěžku taxolu a také ke zvýšení antiproliferativní aktivity extrahovaných taxolových sloučenin. prostřednictvím konjugace s nanočásticemi zlata, zprostředkované gama zářením.
Materiály a metody
Izolace a kultivace endofytických hub
Různé části jojoby (Simmondsia chinensis) jako listy, kůry, větvičky a pupeny byly shromážděny na Zemědělské fakultě Káhirské univerzity a použity jako zdroj endofytických hub. Části rostlin byly shromážděny a omyty pod tekoucí vodou z vodovodu, povrchově sterilizovány 70% ethanolem po dobu 1 minuty a poté opláchnuty sterilní vodou [28]. Povrchově sterilizované části rostlin byly nakrájeny na malé kousky za sterilních podmínek a umístěny na misky s bramborovým dextrózovým agarem (PDA), médium Czapek's-Dox a agarové médium se sladovým extraktem [33–36] a misky byly inkubovány při 30 stupních. 10 dní. Účinnost povrchové sterilizace rostlinných částí byla hodnocena odstředěním oplachové vody, poté bylo ke sraženině přidáno 500 ul sterilní vody a naneseno do PDA média [37]. Vyčištěné izoláty endofytických hub byly naočkovány na šikmé PDA po dobu 7 dnů a skladovány při 4 stupních
Screening, extrakce a kvantifikace taxolu z endofytických hub
Získané endofytické houby obývající jojobu byly testovány na produkci Taxolu pěstováním na bramborovém dextrózovém bujónu (PDB) [38]. Jedna zátka každého ze 7 dní starých izolátů galenice byla naočkována do 100 ml PDB/250 ml Erlenmeyerových úloh, inkubovaných po dobu 15 dnů při 30±1 stupni za podmínek třepání (120 otáčky za minutu). Po inkubaci byly kultury zfiltrovány a filtrát byl doplněn 0,2% hydrogenuhličitanem sodným, aby se vysrážely mastné kyseliny. Taxol byl extrahován dichlormethanem a organická fáze byla shromážděna a odpařena do sucha a zbytky byly znovu rozpuštěny v methanolu [17, 39]. Taxol byl separován a identifikován pomocí TLC za použití Merck 1 mm (20 x 20 cm) předem potažených silikagelových destiček (TLC Silica gel 60 F254, Darmstadt, Německo), detekovaných UV osvětlením při 254 nm [39]. Předpokládané skvrny Taxolu byly seškrábnuty z TLC silikagelových desek a rozpuštěny v methanolu, intenzivně vortexovány po dobu 10 minut a odstřeďovány při 1000 otáčkách za minutu po dobu 5 minut. Vysrážené částice oxidu křemičitého byly odstraněny a supernatant byl odebrán pro kvantifikaci Taxolu a kontrolu čistoty pomocí HPLC (YOUNG In, Chromass, 9110 plus Quater nary Pump, Korea) kolony C18 s reverzní fází (Eclipse Plus C18 4.6 ×150 mm, 3,5 μm, kat. č. 959,963–902). Použitou mobilní fází byl methanol/acetonitril/voda (25:35:40, obj./obj.) při průtokové rychlosti 1,0 ml/min po dobu 20 minut [40] a frakce taxolu byly měřeny při 227 nm a jejich chemická identita a koncentrace byly potvrzeny z retenčního času a plochy absorpčního píku ve srovnání s autentickým vzorkem.
Morfologická a molekulární identifikace obnovených endofytických hub
Izoláty endofytických hub byly identifikovány na jejich druhové úrovně na základě jejich makro a mikromorfologických vlastností pěstováním na médiu PDA, Czapek's-Dox a sladovém extraktu podle referenčních klíčů [33–36]. Identita nejúčinnějších izolátů hub produkujících taxol byla dále molekulárně potvrzena na základě sekvence vnitřního transkribovaného spaceru (ITS) [41, 42]. Fungální genomová DNA (gDNA) byla extrahována rozmělněním mycelia (~0,2 g) v kapalném dusíku a poté dávkováním do 1 ml extrakčního pufru CTAB (2 procenta CTAB, 2 procenta PVP40, { {21}},2 procenta 2-merkaptoethanolu, 20 mM EDTA, 1,4 M NaCl v 100 mM Tris-HCl, pH 8,0). Sady PCR primerů byly ITS4 5′-GGAAGTAAAAGTCGT AACAAGG-3′ a ITS5 5′-TCCTCCGCTTATTGATATGC-3′. PCR reakce obsahuje 10 ul 2×PCR master směsi (i-Taq™, kat. č. 25027), 2 ul gDNA, 1 ul každého primeru (10 pmol/ul) a doplněno na 20 ul sterilním destilovaným voda. PCR byla naprogramována na počáteční denaturaci při 94 stupních po dobu 2 minut, denaturaci při 94 stupních po dobu 30 s, žíhání při 55 stupních po dobu 10 s, prodlužování při 72 stupních po 30 s na 35 cyklů a konečnou extenzi při 72 stupních po dobu 2 min. PCR amplikony byly analyzovány pomocí 1,5% agarózového gelu v 1xTBE pufru (Ambion kat. č. AM9864), za použití 1 kb DNA žebříčku (kat. č. PG010-55DI) a vizualizovány gelovým dokumentačním systémem. Amplikony byly purifikovány a sekvenovány pomocí Applied Biosystems Sequencer, HiSQV Bases, verze 6.0 se stejnými sadami primerů. Získané sekvence byly BLASTem prohledány neredundantně v databázi NCBI, importovány do softwaru MEGA 6.0 a porovnány s svalovým algoritmem Clustal W [43] a fylogenetický strom byl zkonstruován metodou sousedského spojování MEGA 6.0 [44].
Chemická struktura extrahovaného taxolu
Předpokládané skvrny Taxolu byly seškrábnuty z TLC silikagelových desek a purifikovány a čistota a koncentrace byly stanoveny pomocí UV–Vis analýz při λ 227 nm (RIGOL, Ultra-3000 Series) ve srovnání s autentickým taxolem [39]. Prázdná média za stejných podmínek byla použita jako negativní základní linie pro spektrofotometrické analýzy. FT-IR spektrum vyčištěných vzorků taxolu bylo analyzováno spektrofotometrem JASCO FT-IR 3600. Vzorek taxolu byl rozemlet s peletami KBr, slisován do kotoučů ve vakuu a absorpce byla měřena v oblasti 400 až 4000 cm-1 [3] oproti původnímu. Chemická struktura extrahovaného taxolu byla potvrzena pomocí HNMR spektroskopie (JEOL, ECA-500II, 500 MHz NMR) ve srovnání s autentickým taxolem. Vzorky byly rozpuštěny v CDCI3, chemické posuny jsou uvedeny v ppm (8-škála) a vazebné konstanty jsou vyjádřeny v hertzech (Hz).

Vliv různých typů médií na produkci taxolu
Dvě agarové zátky (9 mm) ze 7 dnů starých kultur každého izolátu houby byly inokulovány trojmo do 100 ml média/250 ml Erlenmeyerovy baňky s bramborovou dextrózou (PDB), Czapek's-Dox (CZD), M1D a sladovým extraktem (ME). ) bujónové médium. Nenaočkované kontroly z každého média, které neobsahují spóry hub, byly použity jako negativní kontrola, inkubovány při 30 stupních po dobu 15 dnů za stejných podmínek. Po inkubaci byly kultury hub filtrovány a Taxol byl extrahován a stanoven, jak je uvedeno výše.
Bioprocess optimalizace nutričních podmínek pro maximalizaci výtěžku taxolu
Optimalizace složení média pro maximalizaci výtěžku taxolu silným izolátem houby byla provedena pomocí metodologie povrchu odezvy s použitím Placket-Burmanova designu následovaného centrálním kompozitním designem [17–20, 45]. Z návrhů RSM byly pozitivní a významné proměnné ovlivňující produkci Taxolu silným fungálním izolátem hodnoceny pomocí statistického softwarového balíčku od Design-Expert 7.0 (Stat Ease Inc., Minneapolis, USA). Každý experiment byl proveden ve třech biologických replikátech a byly uvažovány průměrné hodnoty. Po inkubaci za požadovaných podmínek byla plísňová biomasa zfiltrována a Taxol byl extrahován a kvantifikován pomocí TLC a HPLC, jak je popsáno výše.
Design Placket-Burman
Placket-Burmanův design se často používá pro optimalizaci složky média pro růst hub a produkci bioaktivních sekundárních metabolitů, přičemž se hodnotí významné proměnné ovlivňující produkci taxolu [18, 20, 46]. Výběr faktoru byl založen na médiích používaných při kvalitativním a kvantitativním screeningu. Bylo zahrnuto jedenáct faktorů; sladový extrakt, pepton, sacharóza, sojový extrakt, glutamin, hovězí extrakt a hodnoty a faktory teploty, pH, inkubační doby a rychlosti třepání se měnily ve dvou úrovních a byly vybrány minimální a maximální rozsahy úrovní. Statistický Design-Expert 7.0 byl použit pro vytvoření sady 12 experimentů. Pro každý experiment byla stanovena produkce taxolu ve třech biologických replikátech a byl uvažován průměr výtěžku taxolu.
Regresní analýza dat byla provedena pomocí statistického softwaru. Účinek každé proměnné byl vypočítán (Biometrika, 2020) pomocí následující rovnice:
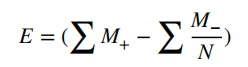
kde E je účinek testovací proměnné, M plus a M- jsou koncentrace taxolu ve studiích, při kterých byl parametr na vyšších a nižších úrovních, a N je počet provedených experimentů. Účinek každé proměnné na produkci byl stanoven výpočtem jejich příslušných E-hodnot.
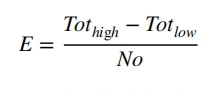
Kde Tot high je celkový počet odpovědí na vysoké úrovni, Tot low je celkový počet odpovědí na nízké úrovni a No je počet pokusů.
Centrální kompozitní design a interakce mezi faktory ovlivňujícími produkci taxolu
Nejvýznamnější pozitivní faktory ovlivňující produkci taxolu vybraným izolátem plísní byly optimalizovány pomocí experimentálního návrhu modelu CCD modelu odezvového povrchu [47]. Pomocí CCD byly optimalizovány koncentrace složek média a jejich studované interakce byly použity k vytvoření celkem 20 experimentů pro tři proměnné. Pro stanovení optimálních úrovní proměnných pro produkci taxolu ze silného izolátu houby byly vyneseny trojrozměrné (3D) křivky povrchu odezvy pro studium interakce mezi různými faktory a pro stanovení proměnných podmínek každého faktoru ovlivňujícího produkci taxolu. 3D grafy byly provedeny udržováním konstant tří faktorů na ideální úrovni a vynesením získané odezvy výtěžku taxolu pro různé úrovně ostatních dvou faktorů.
Vliv gama záření na výtěžek taxolu
Silné endofytické izoláty produkující Taxol byly vystaveny ozáření 60zdrojem kobaltu (Gamma buňka 4000-A-India) při různých dávkách gama záření (0,25–3,0 kGy) ve srovnání ke kontrole neozářené kultury; dávkový příkon 1,2 kGy/h v době experimentů. Optimalizovaná média byla naočkována ozářenou kulturou za standardních kultivačních podmínek ve srovnání s inokulem neozářených spor jako kontrolou. Kultury byly inkubovány při 30±2 stupních po dobu 15 dnů na rotační třepačce (120 ot./min.). Po inkubaci byly kultury filtrovány a Taxol byl extrahován, purifikován a kvantifikován pomocí TLC a HPLC, jak je popsáno výše.
Syntéza a charakterizace nanočástic zlata (AuNP); Konjugace s taxolem
Protirakovinná aktivita taxolu
Aktivita purifikovaných konjugátů Taxol a Taxol-PVP-AuNPs proti karcinomu jater (HPG2) a karcinomu prsu (MCF7) byla stanovena pomocí 3- (4,5-dimethylthiazol- 2-yl) Test -2,5-difenyltetrazoliumbromidu (MTT) [48]. Destička 96-jamek byla naočkována 103 buňkami na jamku a inkubována přes noc při 37 stupních, poté byly přidány různé koncentrace léčiva a destičky byly znovu inkubovány po dobu 48 hodin. Bylo přidáno MTT činidlo (25 ul) a inkubováno po dobu 2 hodin a fialová barva vyvinutého formazanového komplexu byla měřena při A570 nm. Hodnota IC50 byla vyjádřena množstvím léčiva snižujícího růst 50 procent počátečního počtu nádorových buněk normalizovaných na pozitivní kontrolu.
Antimikrobiální aktivita taxolu a konjugátů taxol-AuNPs
Antimikrobiální aktivita konjugátů Taxol a Taxol-AuNPs byla hodnocena proti různým bakteriálním izolátům; Bacillus subtilis ATCC 6633 a Staphylococcus epidermidis, Pseudomonas aeruginosa, Escherichia coli a Enterobacter agglomerans, kromě Candida albicans. Testované bakteriální buňky byly suspendovány ve sterilní peptonové vodě, aby se získalo standardní inokulum ~0,5 McFarland (1–1,5)× 1{{10}}8 CFU/ml při λ6{{18 }}0 nm. Inhibice růstu (mm) růstu mikrobiálních patogenů byla hodnocena agarovou diskovou difúzní metodou. Jako pozitivní kontroly byly použity sterilní standardní antibiotické disky o průměru 6,0 mm. Sterilní antibiotické disky (6,0 mm) byly naplněny 20 ul methanolu a amoxicilin-kyselina klavulanová (AMC) jako negativní a pozitivní kontrola. Disky byly naplněny stejnou koncentrací Taxolu, Taxolu-PVP-AuNP a AuNP (1,0 ug/ml). Byly připraveny tři biologické replikáty. Destičky byly inkubovány při 37 stupních po dobu 24 hodin a byly měřeny zóny inhibice. Amoxicilin kyselina klavulanová (AMC) a nystatin byly použity k normalizaci antimikrobiální aktivity Taxolu. Inhibiční zóna růstu byla stanovena posuvným měřítkem (mm).
Statistické analýzy
Fisherův nejméně významný rozdíl v post hoc testu.
Depozice plísní
Výsledek
Izolace endofytických hub z jojoby; Screening na produkci taxolu
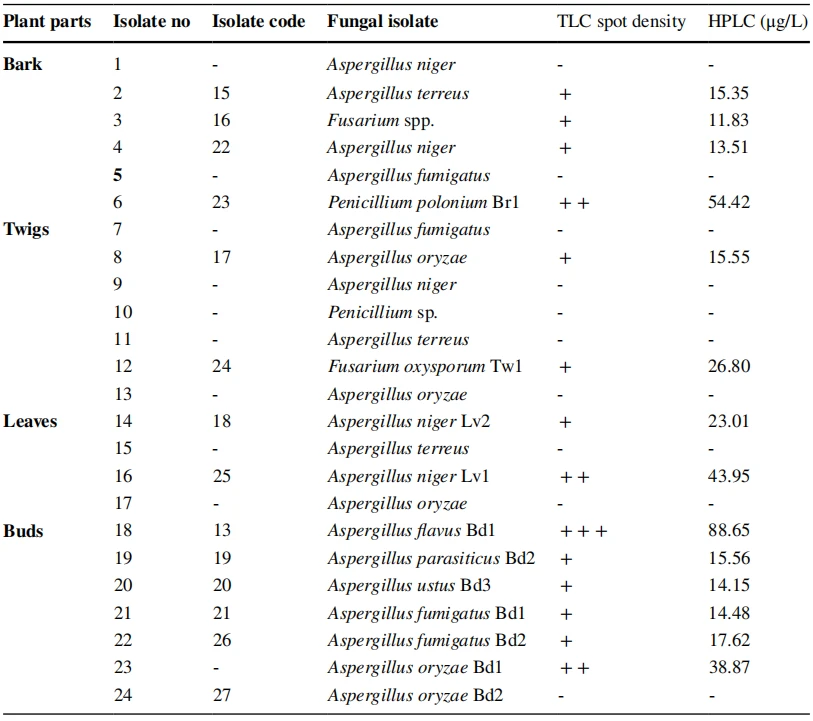
Z kůry, větviček, listů a pupenů jojoby naložené na PDA, CZD a ME médium bylo získáno 24 izolátů endofytických hub. Tyto houbové izoláty byly odvozeny z kůry (6 izolátů), větviček (7 izolátů), listů (4 izolátů) a pupenů (7 izolátů), jak je uvedeno v tabulce 1. Tyto houbové izoláty byly původně identifikovány na úrovni svého druhu na základě jejich morfologie. rysy podle univerzálních klíčů, patřící do tří rodů, a to Aspergillus, Penicillium a Fusarium. Mezi těmito izoláty byla hlášena prevalence rodu Aspergillus (83,4 procenta), zatímco Fusarium a Penicillium byly zastoupeny 8,3 procenty. Rod Aspergillus byl zastoupen pěti druhy, a to A. favus (3 izoláty), Aspergillus oryzae (5 izolátů), A. niger (5 izolátů), A. fumigatus (4 izoláty) a A. terreus (3 izoláty). Produktivita Taxolu získanými izoláty hub byla hodnocena pěstováním na PDB, inkubací za standardních podmínek, extrakcí a kvantifikací Taxolu pomocí TLC a HPLC (obr. 1). Z výsledků byla maximální produktivita taxolu hlášena A. favus Bd1 (88,65 µg/l), následovaným P. polonium Br1 (54,42 µg/l), A. niger Lv1 (43,95 µg/l), A. oryzae Bd1 (38,87 µg/l), F. oxysporum Tw1 (26,80 µg/l), A. niger Lv2 (23.01 µg/l) a A. fumigatus Bd2 (17,62 µg/ l). Strukturální chemická identita Taxolu od největších producentů hub byla odhalena z jejich UV-Vis spekter ve srovnání s chemickým spektrem autentického Taxolu. Navíc chemická struktura Taxolu extrahovaného z nejúčinnějších čtyř izolátů houby byla ověřena analýzou FT-IR (obr. 1). Je pozoruhodné, že extrahovaný Taxol ze silných izolátů hub vykazoval stejné spektrální paradigma autentického Taxolu. Pík při 3393,3 cm-1 byl přiřazen pro hydroxyl (OH). Zatímco píky při 2923,5 byly přiřazeny alifatickému úseku CH, píky při 1661.0 cm-1 odpovídaly frekvenci roztahování C=O. Pozorovaný vrchol při 1452,0–1404,0 cm−1 byl způsoben NH natahovací frekvencí. Frekvence natahování karbonylová skupina-kyslík byla pozorována při 1109 cm-1. Pozorované píky v rozmezí 1020–979,7 cm−1 byly způsobeny přítomností aromatických C a H ohybů. Z chromatografických a spektrálních analýz lze usoudit, že extrahovaný Taxol je identický s autentickým. Zdá se, že metabolická aktivita stejného druhu houby značně kolísala s různými rostlinami, což zajišťovalo jedinečnou biologickou interakci a uvolňování specifických signálů z části rostliny pro spuštění exprese strojního systému biosyntézy taxolu. Zajímavé je, že kolísání metabolického systému nezávisí pouze na rostlinných částech, ale také na interakci izolát-izolát, např. výnos taxolu izolátů A. niger obývajících listy jojoby byl 43,9 µg/l, zatímco výnos Taxol byl nula pro izolát A. niger získaný z rostlinné kůry.
Morfologická a molekulární identifikace silných producentů taxolu
Morfologické znaky taxolu produkujícího silný houbový izolát byly zkoumány podle makroskopických a mikroskopických popisných klíčů, jak je popsáno v části Materiály a metody, a odhalily jeho morfologickou blízkost s A. favus (obr. 2). Izolát houby byl pěstován na PDA při 30 stupních po dobu 10 dnů a makroskopické a mikroskopické znaky odhalily jeho identitu, jako jsou hlavičky konídií, způsob větvení, identita stigmatu a ontologie konídií a tvorba plodnic, podle univerzálního morfologické klíče [33] a bylo zjištěno, že jsou totožné s Aspergillus favus. Silný izolát A. favus produkující taxol byl dále identifikován na základě jejich ITS sekvencí s použitím gDNA jako templátu. PCR amplikony (~550 bp) A. favus byly rozděleny, purifikovány a sekvenovány (obr. 2). Sekvence ITS A. favus byla neredundantně prohledána v databázi NCBI a vykazovala 99procentní podobnost s A. favus, s nulovými hodnotami E. a 95procentním pokrytím dotazů. Z mikroskopických a molekulárních analýz byl tedy cílový izolát potvrzen jako A. favus a uložen na GenBank pod přírůstkovým číslem MW485934.1, stejně jako izolát byl uložen v Assiut University Mykological Center (AUMC), Egypt s depozitní číslo AUMC13892. Současný izolát měl 99procentní podobnost s izoláty A. favus MW485934, MT446145, KJ863514, MW522551,
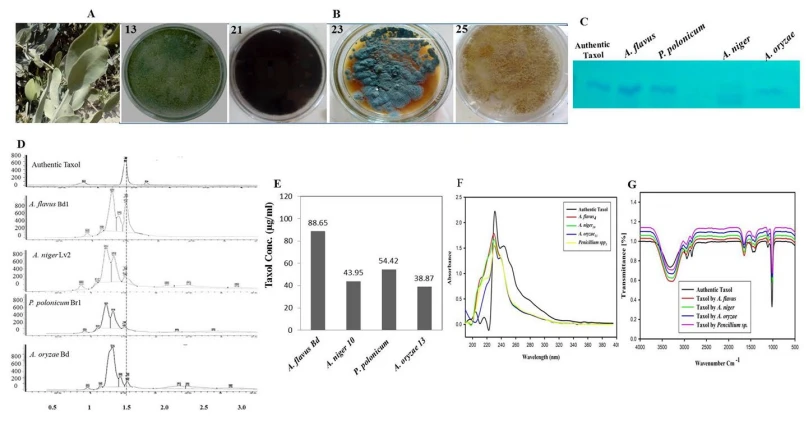
Obr. 1 Morfologický pohled na rostlinu jojoby. B Plotové kultury silných endofytických hub produkujících taxol; A. favus Bdl (13), A. niger Lv1 (21), Penicillium polonium (23) a A. oryzae Bd (25) na PDA po 8 dnech inkubace při 30 stupních. Plísňové izoláty byly pěstovány na PDB a inkubovány za standardních podmínek a Taxol byl extrahován a kontrolován TLC (C). D HPLC chromatogram Taxolu ze silných izolátů hub. E Výtěžek taxolu kvantifikovaný z HPLC. F, UV–Vis spektrální analýza extrahovaného taxolu z izolátů hub. G FT-IR analýza extrahovaného taxolu ve srovnání s autentickým
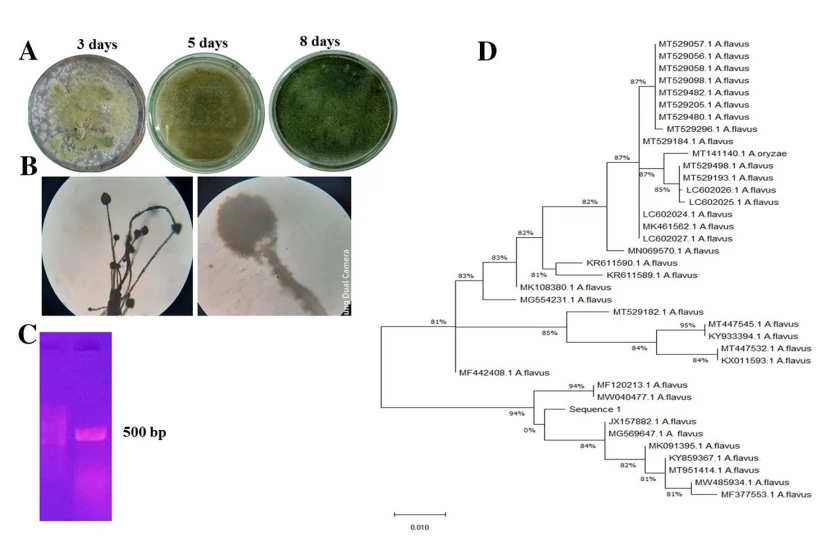
Obr. 2 A Makromorfologické znaky A. favus endofytu jojoby po 3, 5 a 8 dnech růstu na PDA. Mikromorfologické znaky, konidiová hlava A. favus při 400násobném zvětšení. C PCR amplikon oblasti ITS A. favus o 500 bp, normalizující se na 1 kb ladder (kat. č. SM0312). D Fylogenetická analýza ITS A. favus metodou maximální věrohodnosti [44]
Požádat o víc:
E-mail:wallence.suen@wecistanche.com whatsapp: plus 86 15292862950