Kyselina askorbová reguluje imunitu, antioxidaci a apoptózu u Abalone Haliotis Discus Hannai Ino Part 1
Jul 31, 2023
Abstraktní: Tato studie byla provedena za účelem zkoumání role kyseliny askorbové (AA) v imunitní odpovědi, antioxidaci a apoptóze u ušňů (Haliotis discus hannai Ino). Sedm poločištěných diet s odstupňovanými hladinami AA (0, 50, 100, 200, 500, 1000 a 5000 mg/kg) bylo krmeno ušněmi (počáteční hmotnost: 12,01 ± 0,001 g, počáteční délka pláště: 48,44 ± 0,069 mm) po dobu 100 dnů. Přežití, rychlost přírůstku hmotnosti a denní přírůstek délky skořápky nebyly ovlivněny dietním AA. Obsah AA v žábrách, svalech a trávicích žlázách ušně byl významně zvýšen dietním AA. Pokud jde o imunitu, dietní AA významně zlepšilo celkový počet hemocytů, respirační vzplanutí a fagocytární aktivitu u hemolymfy a aktivitu lysozymů u bezbuněčné hemolymfy (CFH). V trávicí žláze byly TLR-MyD88-závislé a TLR-MyD88-nezávislé signální dráhy potlačeny suplementací AA ve stravě. Hladiny mRNA -defensinu a arginázy-I v trávicí žláze byly významně zvýšeny dietním AA. V žábrách byla pouze TLR-MyD88-závislá signální dráha potlačena dietním AA, aby se snížil zánět u ušňů. Úroveň mýtů 6 v žábrách byla významně zvýšena dietním AA. Po infekci Vibrio parahaemolyticus byla signální dráha TLR v trávicí žláze potlačena dietním AA, což snížilo zánět u ušňů. Pokud jde o antioxidační aktivitu, aktivity superoxiddismutázy, glutathionperoxidázy a katalázy, stejně jako celková antioxidační kapacita a snížený obsah glutathionu v CFH, byly všechny významně upregulovány. Obsah malondialdehydu byl významně snížen dietou AA. Antioxidační kapacita byla zlepšena spuštěním dráhy Keap1-Nrf2 v mušlích. Pokud jde o apoptózu, dietní AA by mohla zvýšit schopnost antiapoptózy prostřednictvím signální kaskády JNK-Bcl-2/Bax v ušně. Závěrem lze říci, že dietní AA se podílela na regulaci imunity, antioxidace a apoptózy u ušňů.
Glykosid cistanche může také zvýšit aktivitu SOD v srdeční a jaterní tkáni a významně snížit obsah lipofuscinu a MDA v každé tkáni, účinně zachycovat různé reaktivní kyslíkové radikály (OH-, H₂O₂ atd.) a chránit před způsobeným poškozením DNA. OH-radikály. Cystanche fenylethanoidové glykosidy mají silnou schopnost vychytávání volných radikálů, vyšší redukční schopnost než vitamín C, zlepšují aktivitu SOD v suspenzi spermií, snižují obsah MDA a mají určitý ochranný účinek na funkci membrány spermií. Polysacharidy Cistanche mohou zvýšit aktivitu SOD a GSH-Px v erytrocytech a plicních tkáních experimentálně senescentních myší způsobených D-galaktózou, stejně jako snížit obsah MDA a kolagenu v plicích a plazmě a zvýšit obsah elastinu. dobrý čisticí účinek na DPPH, prodlužuje dobu hypoxie u senescentních myší, zlepšuje aktivitu SOD v séru a oddaluje fyziologickou degeneraci plic u experimentálně senescentních myší Experimenty prokázaly, že Cistanche má dobrou antioxidační schopnost s buněčnou morfologickou degenerací a má potenciál být lékem k prevenci a léčbě nemocí stárnutí kůže. Zároveň má echinakosid v Cistanche významnou schopnost vychytávat volné radikály DPPH a má schopnost vychytávat reaktivní formy kyslíku a bránit volnými radikály indukované degradaci kolagenu a má také dobrý reparační účinek na poškození aniontů volnými radikály thyminu.

Klikněte na Cistanche Tubulosa
【Další informace:george.deng@wecistanche.com / WhatApp:{0}}】
Klíčová slova: ušeň; kyselina askorbová; imunní; antioxidační; apoptóza
1. Úvod
Kyselina askorbová (AA), také známá jako vitamín C, je známá jako základní mikroživina, která slouží jako kofaktor spojený se zvýšením aktivity mnoha lidských enzymů a přispívá k imunitní odpovědi a rozvoji nervového systému u lidí [1,2 ]. Vzhledem k omezené schopnosti AA uchovat se v organismu je nutný pravidelný a dostatečný příjem jako prevence nedostatku AA. AA je u většiny savců vyžadována ve stopovém množství z exogenních zdrojů pro průměrný růst, fyziologické aktivity, reprodukci a zdraví [3–5]. Pokud jde o imunitní funkce, AA přispívá k udržení integrity imunitní bariéry a hojení ran [1]. Může posílit funkci fagocytů, jako je zlepšení jejich motility, chemotaxe, fagocytózy a zabíjení mikrobů [6–9]. Předchozí studie uváděly různé imunitní účinky AA na B-buňky, T-buňky a NK buňky u savců [10–12]. Mezitím je AA také spojena s apoptózou. Inhibuje apoptózu myokardu tím, že brání Bax (protein X spojený s BCL{11}}) a zvyšuje schopnost Bcl-2 (regulátor apoptózy bcl-2) inhibovat uvolňování cytochromu-C z mitochondrií do cytoplazmy a následně redukuje kaspázu-3, která iniciuje apoptózu [13]. Jako přirozený antioxidant redukuje AA reaktivní formy kyslíku (ROS) a reaktivní formy dusíku (RNS) tím, že je obdaruje elektrony a zabrání oxidaci jiných sloučenin [14–17]. AA může také umožnit dalším antioxidačním molekulám, jako je glutathion (GSH), -karoten, urát a -tokoferol, aby se regenerovaly z jejich příslušných volných radikálů [18,19].
Na rozdíl od suchozemských živočichů existuje relativně málo zpráv o imunitní odpovědi a apoptóze u vodních živočichů. Dietně vhodné množství AA může optimalizovat růst, zdraví a odolnost vůči stresu u vodních živočichů [20]. Většina studií o AA u vodních živočichů se zaměřuje na odhad minimálních požadavků na AA pro maximální růst a na sestavení stravy s nejnižšími náklady. Požadavky na AA se liší podle druhu, velikosti, stravy a podmínek chovu. Doporučené množství AA ve stravě se pohybuje od 10 do 10,000 mg/kg [21]. Minimální požadavek na dietní AA pro podporu maximální rychlosti růstu (WG) byl 53–186 mg/kg u tilapie nilské (Oreochromis niloticus), 1200 mg/kg u tuňáka obecného (Thunnus orientalis) a 5000–1000 mg/kg u kreveta kuruma (Marsupenaeus japonicas) [22–24]. U některých druhů ryb, jako je jeseter sibiřský (Acipenser baerii), pražma rudá (Pagrus major) a úhoř japonský (Anguilla japonica), však WG nebo specifická rychlost růstu (SGR) nebyla významně ovlivněna dietárním AA u některých druhů ryb [25–27 ].

Bylo prokázáno, že suplementace AA ve stravě zvyšuje imunitní funkce, jako je fagocytóza a aktivita lysozymů u mnoha druhů ryb [28–30]. Zvýšené přežití vůči expozici patogenům (např. bakteriím a parazitům) bylo hlášeno u tilapie nilské, sumce asijského (Clarias batrachus) a tichomořské bílé krevety (Litopenaeus vannamei) po příjmu AA v potravě [31–34]. Deficit AA snížil aktivitu lysozymu (LZM), složku komplementu 3 (C3) a obsah C4 u amuru (Ctenopharyngodon idella) [35]. Může také snížit hladiny antimikrobiálních peptidů, jako je -defensin a hepcidin, a protizánětlivé cytokiny včetně interleukinu (IL) 4/13A, IL-10 a transformačního růstového faktoru (TGF) 1/2; zatímco upreguluje prozánětlivé cytokiny, včetně IL-1 a nukleárního faktoru κB (NF-κB) u amurů [35]. Deficit AA navíc upreguloval aktivační faktor apoptotické proteázy-1, kaspázu{20}} a kaspázu-7–9, aby se zhoršila buněčná apoptóza u amura [35,36].
Abalone je jedním z nejdůležitějších komerčních druhů v řádu měkkýšů Archaeogastropoda. Jde o důležité modelové zvíře pro studium ekologické a vývojové biologie plžů (Mollusca) [37,38]. Mezi chovanými druhy je v Číně nejpreferovanějším chovaným druhem ušeň tichomořský (H. discus hannai Ino). Mai uvedl, že dietní suplementace AA od 0 do 8 000 mg/kg významně neovlivnila SGR nebo míru přežití (SR) juvenilních abalone [39]. Wu a kol. uvedli, že dietní AA ovlivnila expresi genů souvisejících s antioxidačními reakcemi v trávicí žláze ušně, aby se zlepšila její odolnost vůči stresu [40]. Kromě toho by propuknutí chorob mohlo způsobit obrovské ekonomické ztráty průmyslu ušňů [41,42]. Měkkýši postrádají adaptivní imunitu a spoléhají na vrozenou imunitu [43]. Cílem této studie bylo prozkoumat roli AA v regulaci imunity, antioxidace a apoptózy u ušňů H. discus hannai a poskytne vědecké instrukce pro zdravou regulaci složení stravy u ušňů.
2. Materiály a metody
2.1. Etické prohlášení
Všechny postupy péče o zvířata a manipulace prováděné v této studii byly schváleny Výborem pro péči o zvířata Čínské oceánské univerzity (č. schválení SPXY2020012).
2.2. Experimentální dieta
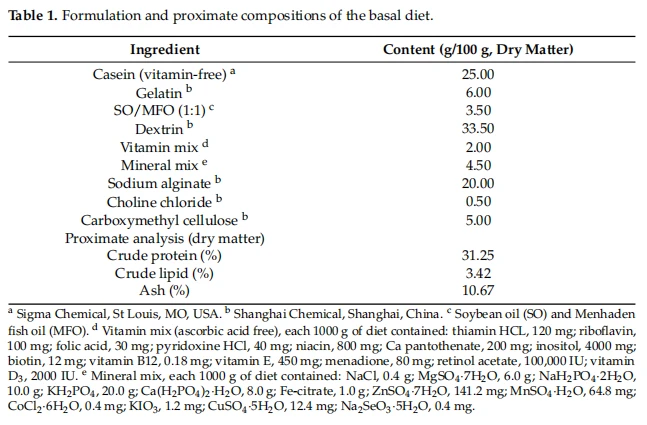
Základní dieta (AA{{{{10}}}}) byla sestavena z purifikovaných složek tak, aby obsahovala přibližně 30 procent dietních bílkovin a 3,5 procent dietních lipidů (tabulka 1). Jako zdroje bílkovin byly použity kasein (bez vitaminů) a želatina a jako zdroje lipidů sójový olej a rybí olej menhaden (1:1), což by mohlo být dostatečné pro udržení optimálního růstu H. discus hannai [44–46 ]. Odstupňované hladiny AA (0, 50, 100, 200, 500, 1000 a 5000 mg/kg) byly přidány k základní dietě, aby se vytvořilo sedm experimentálních diet. AA byla přidávána do stravy ve formě L-askorbyl-2-monofosfátu. Tyto diety byly označeny jako AA0, AA50, AA100, AA200, AA500, AA1000 a AA5000, v daném pořadí. Analyzované obsahy AA ve stravě byly 0,00, 47,31, 78,25, 189,05, 451,73, 919,99 a 4821,17 mg/kg, v daném pořadí. K analýze obsahu AA v potravě byla použita metoda vysokoúčinné kapalinové chromatografie [40]. Surový protein, hrubý lipid a popel byly měřeny podle standardních metod Asociace analytických chemiků [47].
2.3. Vyluhovací test
Vyluhování AA z potravy bylo prezentováno jako retenční účinnost (RE). Experimentální diety se třemi replikáty byly ponořeny do mořské vody při 23.0 ± 0.5 ◦C. Ponořené diety byly vyjmuty ve stanoveném čase (1, 3, 6 a 12 hodin, v daném pořadí) a byly lyofilizovány pro analýzu obsahu AA.
RE ( procenta )=(AA ponechaná ve stravě po ponoření)/(AA obsažená ve stravě před ponořením) × 100.
2.4. Zkouška krmení
Mláďata ušňů byla získána z rybářské společnosti ve Fuzhou (Fujian, Čína) a byla aklimatizována na laboratorní podmínky po dobu dvou týdnů s bazální stravou v recirkulačním vodním systému s nádržemi (10{{1{{21 }}}} × 50 × 40 cm). Poté byly podobně velké ušně (počáteční hmotnost: 12,01 ± 0.{16}}1 g, počáteční délka pláště: 48,44 ± 0,069 mm) náhodně rozděleny do 21 nádrží (45 ušní na nádrž). Každé tři nádrže byly považovány za jedno ošetření. Všechny nádrže byly udržovány v tlumeném světle s černými plastovými závěsy. Ušni byli ručně krmeni jednou denně v 17:{18}}. Výkaly a nesnědená strava byly odstraněny každé ráno v 8:00. Během 100-denního pokusu o krmení byla teplota vody 23,0 ± 0,5 ◦C, slanost 30–33‰, pH 7,4–7,9 a rozpuštěný kyslík vyšší nebo rovný 7,0 mg/l.
2.5. Vibrio Parahaemolyticus Challenge Test
Po pokusu s krmením bylo patnáct ušňů z každé nádrže použito pro provokační test s patogenním V. parahaemolyticus. Abalony byly stimulovány 100 ul V. parahaemolyticus (1,2 x 10⁶ cfu/ml) svalovou injekcí in vivo. Trávicí žláza byla odebrána v 0, 6, 12, 24, 48 a 72 h, v daném pořadí, a uložena při -80 °C pro analýzu qPCR.
2.6. Kolekce vzorků
Na konci pokusu o krmení byli ušňové tři dny nalačno, než byli spočítáni a zváženi. Všechny ušně byly před odběrem anestetizovány 5% ethylalkoholem. Hemolymfa byla odebrána ze čtyř ušňů v každé nádrži pro analýzu celkového počtu hemocytů (THC), respiračního vzplanutí (RB) a fagocytární aktivity (PA). Pro analýzu enzymatické aktivity v bezbuněčné hemolymfě (CFH) byla hemolymfa odebrána z dalších deseti ušňů v každé nádrži a centrifugována (3000 x g při 4 °C) po dobu 10 minut; CFH byl až do použití skladován při -80 ◦C. Trávicí žláza, žábra, svalovina a plášť byly odebrány z deseti ušňů odebraných z hemolymfy na nádrž a skladovány při -80 ◦C až do použití.
2.7. Obsah kyseliny askorbové
Obsah AA v CFH, svalu, plášti, žábrách a trávicí žláze byl detekován pomocí testovací soupravy na askorbát redukující železo (BioVision, Milpitas, CA, USA). CFH lze použít přímo k měření obsahu AA podle pokynů výrobce. Vzorky 0,1 g svaloviny, pláště, žáber a trávicí žlázy byly homogenizovány v 1 ml předchlazené destilované vody. Obsah AA byl měřen absorbancí při 593 nm.
2.8. Imunitní parametry u hemolymfy
Hemolymfa byla důkladně promíchána pomocí stejného objemu předem vychlazeného antikoagulantu (100 mmol/l EDTA Na2, 450 mmol/l NaCl, 10 mmol/l KCl, 10 mmol/l HEPES, pH 7,3, 850 mOs mol/kg). zředit hemolymfu.
THC bylo počítáno pomocí hemocytometru pod mikroskopem (CX31, OLYMPUS, Tokio, Japonsko).
Snížení nitrotetrazolia (NBT) v hemocytech, které může být reprezentováno aktivitou RB, bylo měřeno podle metod Andersona et al., s určitými úpravami [48]. Stručně řečeno, hemolymfa byla upravena na 5 x 10⁶ buněk/ml pomocí antikoagulantu a byla centrifugována při 3000 x g při 4 °C po dobu 10 minut. Buněčná sraženina byla obarvena 100 ul 1 ug/ml PMA (forbol myristát acetát, Sigma-Aldrich, Saint Louis, MO, USA) rozpuštěným DMSO (dimethylsulfoxid, Solarbio, Peking, Čína) a inkubována při 37 ◦C po dobu 30 min. Po inkubaci bylo k buňkám přidáno 100 ul 0,3% NBT rozpuštěného v Hankově vyváženém solném roztoku (Solarbio, Peking, Čína) a inkubovány při 37 °C po dobu 30 minut před centrifugací (560 x g při 4 °C po dobu 10 minut) . Supernatant byl opatrně odstraněn a reakce byla ukončena použitím 200 ul methanolu po dobu 10 minut. Poté byla cela třikrát promyta 70% (obj./obj.) methanolem a poté byla sušena na vzduchu. Krystal formazanové modři byl rozpuštěn pomocí 120 ul 2 M KOH a 140 ul DMSO. Optická hustota (OD) byla odečtena na spektrofotometru při 630 nm proti slepému pokusu KOH/DMSO.

PA hemolymfy byla stanovena podle dříve popsaných metod Xue et al. [49]. Stručně, 50 ul zředěné hemolymfy bylo umístěno na podložní sklíčko a inkubováno při 25 °C po dobu 20 minut, aby se podpořila adheze. Poté bylo k monovrstvě hemocytů před inkubací (25 °C po dobu 30 minut) přidáno 50 ul kvasinek (Saccharomyces cerevisiae) s 1 x 10⁶ buněk/ml. Sklíčko bylo dvakrát jemně promyto sterilizovaným fyziologickým roztokem s fosfátovým pufrem (PBS) a fixováno methanolem po dobu 5 minut. Poté bylo sklíčko barveno roztokem Giemsa po dobu 20 minut. Buňky byly spočítány pod čočkou s olejovou imerzí. Fagocytární rychlost indikovala fagocytární aktivitu.
2.9. Biochemické parametry v CFH
Aktivita antioxidačních enzymů (jako je SOD, kataláza (CAT) a glutathionperoxidáza (GPX)), celková antioxidační kapacita (T-AOC) a obsah malondialdehydu (MDA) a GSH v CFH byly stanoveny pomocí komerční testovací soupravy (Nanjing Jiancheng Bioengineering Institute, katalog: T-AOC, A015-2-1; SOD, A001-3-2; CAT, A007- 1-1; GSH, A006-2-1; GPX , A005-1-2; MDA, A003-1-2). T-AOC byl založen na generování zelených ABTS (2, 20 -azino-bis (3-ethylbenzothiazolin-6-sulfonová kyselina)) radikálů, když byl ABTS oxidován. SOD, GSH a GPX byly měřeny absorbancemi při 450 nm, 405 nm a 421 nm, v daném pořadí, za použití ultrafialového spektrofotometru (Ultrospec 2100 pro, Biochrom, Holliston, MA, USA). CAT a MDA byly stanoveny pomocí metod molybdenan amonný a TBA (kyselina thiobarbiturová) [50,51].
Aktivita LZM a obsah C3 a C4 v CFH byly měřeny pomocí komerčních testovacích souprav (Nanjing Jiancheng Bioengineering Institute, Nanjing, Čína. Katalog: LZM, A050-1-1; C3, E032-1-1; C4 , E033-1-1). LZM byl měřen pomocí transmitance při 530 nm. C3 a C4 byly stanoveny při 340 nm.
2.10. Celková extrakce RNA a kvantitativní PCR v reálném čase
Celková RNA z trávicí žlázy a žáber byla extrahována pomocí soupravy pro izolaci celkové RNA tkáně (Vazyme, Nanjing, Čína) a činidla TRIzol (Invitrogen, Carlsbad, CA, USA) podle pokynů výrobce. Koncentrace a čistota extrahované celkové RNA byly stanoveny pomocí Nanodrop 2000 (Thermo Fisher Scientific, Waltham, MA, USA). Komplementární DNA (cDNA) byla syntetizována pomocí soupravy pro reverzní transkripci (PrimeScript® RT reagent Kit s gDNA Eraser, Takara, Japonsko).
Všechny primery byly navrženy pomocí Primer Premier 6.{1}} (doplňková tabulka S1) a syntetizovány společností Sangon Biotech (Shanghai, Čína). Amplifikační reakce byla provedena v celkovém objemu 25 µl, obsahujících 0,5 µL dopředných a reverzních primerů, 12,5 µL 2 x SYBR Green Realtime Master Mix (Vazyme), 1 µL cDNA a 10,5 µL sterilizované ddH20. Pro stanovení expresních profilů pro každý gen byly použity následující termocyklické podmínky: 95 °C po dobu 30 s; 40 cyklů 95 ◦C po dobu 10 s a 60 ◦C po dobu 30 s; s následnými inkubacemi při 95 ◦C po dobu 15 s, 60 ◦C po dobu 1 min a 95 ◦C po dobu 1 s pro detekci fluorescence. Hladiny exprese cílového genu byly normalizovány na hladiny kombinace dvou nejstabilnějších referenčních genů (-actin a gapdh), které byly validovány pomocí geNorm a NormFinder [52,53]. Relativní genové exprese byly vypočteny pomocí metody 2−∆∆CT [54].
2.11. Western Blot
Celkový protein trávicí žlázy a žáber byl extrahován metodou RIPA (Solarbio) [55] s koktejly inhibitorů proteázy a fosfatázy (Roche, Basilej, Švýcarsko). Podle manuálu byl jaderný protein trávicí žlázy a žáber extrahován pomocí soupravy pro extrakci jaderných a cytoplazmatických proteinů (Beyotime, Shanghai, Čína). Koncentrace proteinu byla měřena pomocí soupravy BCA Protein Quantification Kit (Vazyme, Nanjing, Čína) a všechny vzorky proteinů byly naředěny na ekvivalentní koncentraci 1,5 ug/ul pomocí činidla RIPA. Vzorky proteinů z trávicí žlázy a žáber byly odděleny pomocí SDS-PAGE a následně přeneseny na 0 0,45 um PVDF membránu. PVDF byl blokován pomocí 5% odtučněného sušeného mléka (Beyotime, Shanghai, Čína) při přípravě na TBST při pokojové teplotě po dobu 1 hodiny. Membrána byla třikrát promyta TBST před inkubací s použitím primární protilátky přes noc při 4 °C při 60 ot./min. Poté byla inkubovaná membrána promyta třikrát TBST a byla inkubována s použitím sekundární protilátky konjugované s kozí anti-králičí křenovou peroxidázou (Beyotime, Shanghai, Čína) po dobu 1 hodiny při teplotě místnosti. PVDF membrána byla vizualizována pomocí chemiluminiscenční soupravy ECL (Vazyme, Nanjing, Čína). GAPDH (1:500, AB-P-R001, Goodhere Biotechnology, Hangzhou, Čína) a Lamin B (1:500, WL01775, Wanleibio, Shenyang, Čína) byly použity jako referenční proteiny. Primárními cílovými protilátkami byly myeloidní diferenciační primární odpověď 88 (MyD88, 1:500, WL02494, Wanleibio, Shenyang, Čína), c-Jun N-terminální kináza (JNK, 1:500, WL01295, Wanleibio, Shenyang, Čína), zralá -IL-1 (1:500, WL00891, Wanleibio, Shenyang, Čína), NF-κB p65 (1:500, WL01980, Wanleibio, Shenyang, Čína), kelch-like ECH asociační protein 1 (Keap1, 1 :1000, WL03285, Wanleibio, Shenyang, Čína) a štěpená kaspáza3 (1:500, WL02117, Wanleibio, Shenyang, Čína). Kvantifikace Western blotu byla vypočtena pomocí ImageJ (verze 1.53, Wayne Rasband a přispěvatelé, National Institute of Health, Bethesda, MD, USA).
2.12. Výpočty a statistická analýza
Pro statistické analýzy byl použit software SPSS 24 (IBM, Armonk, NY, USA). Pro detekci statistických rozdílů mezi těmito skupinami na hladině významnosti 0,05 byla použita jednocestná ANOVA s Tukeyho testem s více rozsahy. Všechna data byla vyjádřena jako průměr ± SE (standardní chyba).
SR, WGR (rychlost přírůstku hmotnosti) a DISL (denní přírůstek délky skořápky) byly vypočteny následovně:
SR ( procento )=(počet přežívajících ušní/počet původních ušní) × 100;
WGR ( procenta )=[(konečná hmotnost (g) − počáteční hmotnost (g))/počáteční hmotnost (g)] × 100;
DISL (µm/den)=[konečná délka skořápky (mm) − počáteční délka skořápky (mm)]/dny × 1000.
3. Výsledky
3.1. Retenční účinnost kyseliny askorbové ve stravě
RE dietního AA v různých intervalech ponořených do mořské vody je znázorněno na doplňkovém obrázku S1. Obecně platí, že RE AA ve stravě se snižovalo s dobou ponoření do mořské vody. Během experimentu s krmením zůstala strava v mořské vodě přibližně 12 hodin. Zkouška vyluhování proto trvala 12 hodin v mořské vodě za stejných podmínek krmení. Po 3 hodinách ponoření se RE AA v dietách pohybovala od 95,25 procenta do 97,43 procenta. RE AA byla udržována na více než 95 procentech během 6 hodin ponoření. Po ponoření na 12 hodin byla RE AA v AA50, AA100, AA200, AA500, AA1000 a AA5000 89,78 procenta, 90,88 procenta, 89,38 procenta, 91,03 procenta, 87,47 procenta, v tomto pořadí {78}{74 procent
3.2. Výkon růstu a distribuce kyseliny askorbové ve tkáních
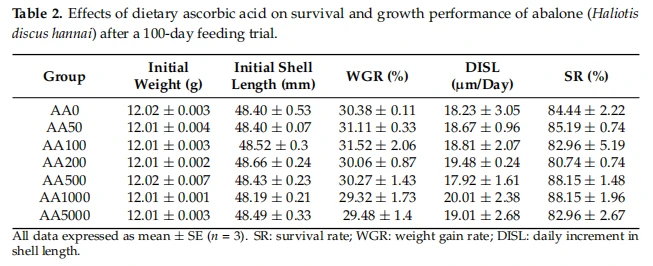
The SR and growth performance of abalone-fed gradient levels of AA supplementation are shown in Table 2. The SR (%), WGR (%), and DISL (µm/day) were not significantly affected by dietary AA levels (p>0.05). SR se pohybovala mezi 80,74 procenty a 88,15 procenty a WGR a DISL se pohybovaly od 29,32 procenta do 31,52 procenta a 17,92 až 20,01 µm/den, v daném pořadí.
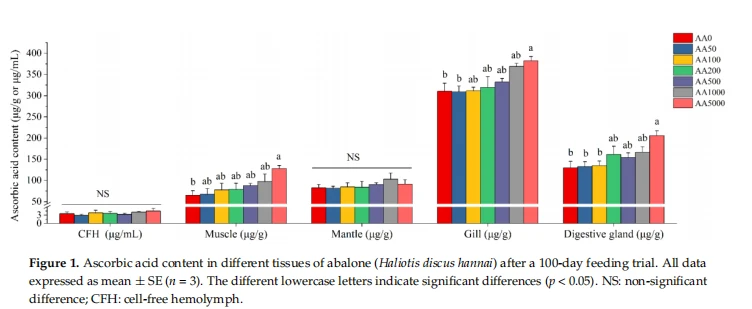
The AA distribution in tissues, including CFH, muscle, mantle, gill, and digestive gland, is shown in Figure 1. No significant differences in AA content in CFH and mantle of abalone after dietary AA were observed (p>0.05). Obsah AA v CFH a plášti se pohyboval od 2,89 ug/ml do 4,52 ug/ml a 81,63 ug/g až 103,08 ug/g, v daném pořadí. Obsah AA ve svalu, žábrách a trávicí žláze byl významně zvýšen (str<0.05) and reached their peak at the AA5000 group. The AA content in the muscle, gill, and digestive gland was 64.88–128.20 µg/g, 308.98–382.19 µg/g, and 130.08–206.09 µg/g, respectively.
3.3. Imunitní parametry hemolymfy
THC, RB a PA hemolymfy jsou uvedeny v tabulce 3. THC se významně zvýšilo se zvýšením AA v potravě, v rozmezí 1,07 × 10⁷–1,65 × 10⁷ buněk/ml, a dosáhlo svého vrcholu ve skupině AA1000.
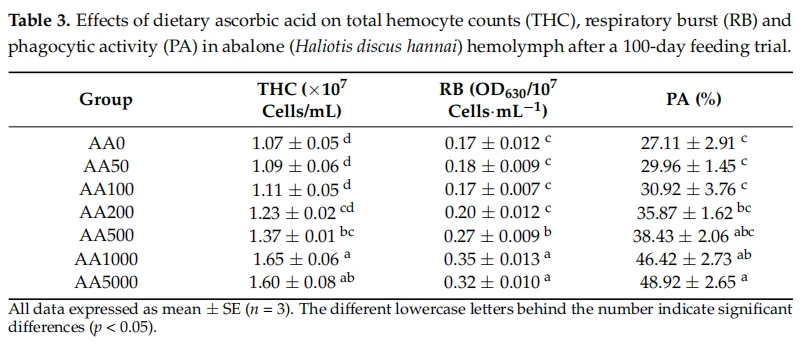
RB v hemocytu abalone se významně zvýšil a dosáhl nejvyšší úrovně ve skupině AA10{{10}}}{{20}} (0 0,35 OD630/107 buněk·mL-1). Když se suplementace dietní AA zvýšila z 189,05 mg/kg na 919,99 mg/kg, RB se významně zvýšila z 0,20 OD630/107 buněk·ml-1 na 0,35 OD630/107 buněk·ml-1 (p < 0,05). Dietní AA může ovlivnit PA v hemocytech abalone (p < 0,05). PA ušně ve skupině AA1000 a AA5000 byla významně vyšší než ve skupinách AA0, AA50 a AA100 a dosáhla svého maxima (48,92 procent) ve skupině AA5000.
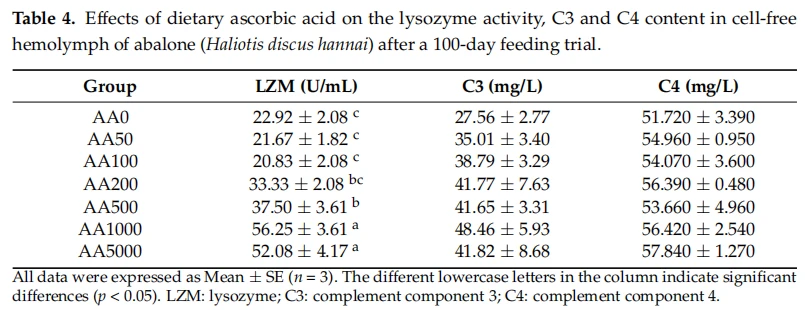
Imunitní parametry v CFH abalone, včetně obsahu LZM, C3 a C4, jsou uvedeny v tabulce 4. Aktivita LZM byla významně zvýšená (p < 0.{{10}} }5) a nejvyšších hladin dosáhla ve skupině AA1000, kde její aktivita byla 56,25 U/ml. Data neodhalila žádné významné účinky na obsah C3 u všech ošetření (p > 0,05); obsah C3 se však stále zvyšoval se suplementací AA ve stravě. Obsah C4 nebyl významně ovlivněn dietním AA (p > 0,05).
3.4. Antioxidační parametry v CFH
Antioxidační enzymatické aktivity v CFH abalone obsahujících SOD, CAT a GPX, stejně jako T-AOC kapacita a obsah MDA a GSH jsou uvedeny v tabulce 5. Dietní AA významně ovlivnilo aktivity SOD, CAT, a GPX a T-AOC a obsah GSH a MDA. Aktivity SOD, CAT a GPX a obsah T-AOC a GSH byly významně upregulovány (p < 0.05), zatímco obsah MDA byl významně snížen u ušňů (p < 0,05 ). Mezi skupinami AA1000 a AA5000 nebyly pozorovány žádné významné rozdíly v těchto antioxidačních parametrech v CFH abalonu.

【Další informace:george.deng@wecistanche.com / WhatApp:{0}}】