Anti-Aging – skelet aktivovaný genem Klotho podporuje omlazující odpověď na hojení ran v kmenových buňkách odvozených z lidské tukové tkáně
Apr 12, 2023
3. Diskuse
Cílem této studie bylo prozkoumat funkční dopad anti-agingu -Scaffold aktivovaný genem Klotho na lidských ADSC pro aplikace vylepšeného hojení ran. Celkově jsme zjistili, že genově aktivované lešení nabízí řízenou aktivaci regeneračních schopností ADSC, jak je znázorněno na obrázku5. Konkrétně genově aktivovaný skelet přechodně zvýšil kmenovost ADSC prostřednictvím aktivace transkripčního faktoru Oct-4. Genem aktivovaný skelet také podporoval časnou aktivaci antifibrotického genu TGF- 3, rozhodující faktor pro řízené hojení se sníženým zjizvením. Kromě toho aktivované ADSC dočasně kontrolovaly endoteliální angiogenezi a podporovaly hojení dermálních fibroblastů prostřednictvím parakrinní signalizace. Ke zrání ADSC také kontrolovaly aktivaci profibrotické odpovědi v dermálních fibroblastech. Mezitím ADSC na genově aktivovaném skafoldu účinně regenerovaly dermální bazální membránu zvýšením ukládání lamininu a kolagenu IV. Tato reakce byla dále spojena se sníženým výskytem jizev -Exprese proteinu SMA a zlepšené kvalitativní ukládání matrice elastinu. Naše studie kolektivně určila, že -Klotho gen aktivovanýCistanchemá obrovský potenciálhojení rana mohlpokroková terapie založená na kmenových buňkách pro omlazující léčebné aplikace.

Obrázek 5. Schéma funkčního dopadu skeletu aktivovaného genem B-Klotho na lidské ADSC pro aplikace hojení ran. Klíčovými zjištěními této studie jsou (1) přechodné zvýšení pluripotence kmenových buněk a antifibrotické odpovědi, (2) zlepšená parakrinní kontrola směrem k angiogenezi a profibrotická remodelace kolagenu v dermálních fibroblastech a nakonec, (3) zvýšené zrání bazální membrána s kontrolou nad expresí proteinů souvisejících s jizvou Tečkované čáry pro elastinovou matrici znamenají zlepšenou kvalitativní depozici.
Klikněte sem a zjistěte, jak CistancheÚčinky na hojení ran
Ve strategiích hojení ran se používá genová terapie založená na plazmidu k přechodnému zesílení buněčných odpovědí, dokud není hojení rány dokončeno.37]. Naše genově aktivované lešení také ukazuje, že terapeutické -Klotho gen je přechodně regulován po dobu 14 dnů. Výrazně vylepšený (170-násobný) výraz -Klotho mRNA v den 3 by mohla být připsána bezprostředně ranému CMV promotoru, o kterém je známo, že zvyšuje transkripční aktivaci kódovaného transgenu [38]. Nicméně v MSC může CMV podstoupit methylaci DNA nebo deacetylaci histonů, což může snížit expresi transgenu [39]. Kromě toho jsou plazmidy obecně nereplikující se epizomy, což omezuje přenos transgenu do dělicích se buněk a způsobuje pokles exprese transgenu v průběhu času [40]. Přítomnost heterochromatických markerů pocházejících z bakteriálních sekvencíplasmid by mohl dále potlačovat expresi transgenu [41], což celkově přispívá k přechodné genové expresi.
Jednou z cest sledovaných při léčbě těžko se hojících ran je aplikace bioaktivních scaffoldů posetých buňkami. Jedním z důvodů je jejich schopnost podporovat rychlé hojení ran. Metabolicky aktivní buňky ve štěpu vylučují parakrinní faktory a podléhají diferenciaci, organizujíc komplexní signální události v prostředí rány.42]. Zejména kmenové buňky mají jedinečnou schopnost vnímat vnější podněty a modulovat svou odpověď, aby obnovily homeostázu [43]. Kmenové buňky však ztrácejí svou kmenovost, když jsou expandovány in vitro za vzniku velkého počtu buněk pro štěp. Naše studie ukazuje, že kmen může být přechodně zvýšen pomocí genově aktivovaného lešení nesoucího gen proti stárnutí -Klotho. Konkrétně jsme zaznamenali, že skafold aktivovaný genem proti stárnutí zvýšil expresi kmenového genu Oct-4 v ADSC. Oct-4 je jedním z klíčových transkripčních faktorů v embryonálních kmenových buňkách a je nezbytný pro kontrolovaný embryonální vývoj [44]. V ADSC může aktivace genu Oct{0}} podpořit jejich proliferační a diferenciační potenciál [45]. Zvýšená exprese Oct{0}} tedy může usnadnit rychlou diferenciaci ADSC na genově aktivovaném skafoldu na hostitelské buňky a napomoci procesu hojení.
Když jsme pozorovali aktivaci genu Oct{0}} v ADSC, hodnotili jsme angiogenní sílu ADSC. Angiogeneze je klíčová pro účinnou integraci štěpu s hostitelskou tkání [46]. Buňky ve štěpu spouštějí angiogenezi prostřednictvím sekrece parakrinních faktorů. Angiogeneze je také klíčovou událostí pro vývoj granulační tkáně a její aktivita klesá, jak granulační tkáň zraje.47]. Toto naprogramované omezení angiogenní aktivity v pozdějších fázích hojení je zásadní pro kontrolu jizev a hyper granulace, které mohou bránit reepitelizaci [48]. Naše zjištění také ukazuje, že ADSC na genově aktivovaném skafoldu mohou zvýšit endoteliální klíčení a řídit jejich růst prostřednictvím parakrinní signalizace. Kromě toho významné zvýšení metabolické aktivity endoteliálních buněk a pučení v reakci na 3. den CM demonstruje potenciál skafoldu aktivovaného geny nabitého ADSC rychle se integrovat do hostitelské tkáně. Kromě toho je použití kmenových buněk CM běžně používaným bezbuněčným přístupem ke zlepšení kvalitního hojení ran [49]. Jako omezení uznáváme, že dospělé dermální endoteliální buňky by sloužily jako lepší buněčný model pro studium angiogeneze; nicméně, abychom zachovali konzistenci s našimi předchozími studiemi a HUVEC, které byly široce přijímány jako kandidát na buňky „zlatého standardu“ [50], přijali jsme test angiogeneze HUVEC.
Zvýšení remodelační aktivity fibroblastů je obecným rysem zrání granulační tkáně [51]. Během této fáze jsou matrice kolagenu III postupně nahrazovány silnějšími vlákny kolagenu I [51]. Kolagenová vlákna pak podporují kontrakci rány [52] a kontrakce rány je nezbytná pro úplné uzavření rány [53]. Avšak agresivní trvalé zvýšení ukládání kolagenu I může zvýšit tvorbu jizev [54]. Kontrola zjizvení je zásadní, protože může inhibovat vývoj dalších kožních přídavků, jako jsou vlasové folikuly, mazové žlázy a potní žlázy, například u popálenin [54]. Naše zjištění ukazuje, že starý (14. den) CM ze skupiny genově aktivovaného skafoldu by mohl kontrolovat expresi profibrotického kolagenu I v dospělých dermálních fibroblastech. K tomuto kontrolovanému účinku na fibroblasty došlo bez dalšího vlivu na migraci fifibroblastů nebo jejich antifibrotické exprese kolagenu III ve srovnání se skupinou bezgenového skafoldu. Proto navrhujeme, že skafold aktivovaný geny s ADSC může nabídnout lepší kontrolu při omezování zjizvení in vivo prostřednictvím řízené exprese kolagenu I. Li et al. také ukázali, že ADSC CM může významně snížit expresi kolagenu I ve fibroblastech odvozených z hypertrofických jizev [55]. Další studie Wanga a kol. prokázala podobné snížení exprese kolagenu I ve fibroblastech odvozených od keloidů [56], což společně prokazuje antifibrotický potenciál CM ADSC.
Jedním z významných zjištění, které jsme zaznamenali při aplikaci -Scaffold aktivovaný genem Klotho je zesílená regenerace bazální membrány v ADSC. Regenerace bazální membrány je nezbytná pro zrání cév a úplnou reepitelizaci [57,58]. Důležité je, že trend, ve kterém proteiny laminin(2.1-násobek) a kolagen IV (8{3}}násobek) jsou upregulovány, což dále naznačuje zvýšené zrání bazální membrány ve skupině genově aktivovaného skeletu [59]. Kromě toho, že působí jako faktor proti stárnutí [60], funkce beta klotho zvyšuje citlivost na fibroblastový růstový faktor (FGF) prostřednictvím receptorů FGF [61]. Navíc bylo zjištěno, že zvýšení signalizace FGF podporuje zrání bazální membrány prostřednictvím ukládání lamininu a kolagenu IV [62]. Proto, vezmeme-li v úvahu úlohu beta klotho jako koreceptoru FGF, je zvýšené zrání baze ve skupině genově aktivovaného skafoldu potenciálně zprostředkováno zvýšením signalizace FGF ADSC.

Složkou bazální membrány, která je pozoruhodně upregulována ve skupině genově aktivovaného skafoldu, je protein kolagen IV. Protein kolagen IV představuje 50 procent všech bazálních membrán [63] a zajišťuje strukturální stabilitu bazální membrány [59]. Stárnutí však významně snižuje expresi kolagenu IV v dermálním-epidermálním spojení [58,64] a nedostatek kolagenu IV může podporovat patogenezi jizev [65]. Naše výsledky tedy naznačují, že zvýšená regenerační schopnost bazální membrány genem aktivovaného lešení nabitého ADSC může významně napomoci lepšímu hojení u starších pacientů. Jiné studie také ukázaly, že ECM pocházející z tukové tkáně má obrovský terapeutický potenciál pro opravu kůže [66]. Kromě toho jsou štěpy tkáňového inženýrství bohaté na laminin a kolagen IV také zajímavé pro opravu respiračního epitelu [67].
Kromě profibrotické kontroly směrem k fibroblastům naše studie dále ukazuje, že ADSC v genově aktivovaném skafoldu také exprimují 2-krát nižší expresi proteinu spojeného s jizvou -SMA [68]. I když jsme nehodnotili jeho dopad in vivo, snížení lokální -Exprese SMA je zásadní pro zlepšení kvalitativního hojení [69]. Použití fibrotických látek, jako je bleomycin [70] by mohl být jedním ze způsobů, jak lépe vyhodnotit antifibrotické vlastnosti konstruktu ADSC/genem aktivovaného skafoldu in vitro; naším cílem však bylo stanovit provizorní terapeutický potenciál konstruktu.
Dalším indikátorem toho, že genově aktivované lešení nabité ADSC může zlepšit kvalitativní hojení, je ukládání vláknité elastinové matrice místo nerovnoměrných extracelulárních sekrecí ve skupině skafoldů bez genů. Ukládání elastinu je jednou z hlavních činností, které řídí hojení ran plodu bez jizev [71]. Dospělá kůže však postrádá ukládání elastinu [71]. Jako takový je tropoelastin, prekurzor elastinu, často začleňován do biomateriálových lešení pro kontrolu zjizvení při hojení ran [72]. Celkově vzato naše zjištění naznačují, že ADSC/ -Klotho genem aktivovaný skafoldový konstrukt může poskytnout silnou antifibrotickou odpověď in vivo.
4. Materiály a metody
4.1. Příprava genově aktivovaného lešení
Genem aktivované lešení bylo vyvinuto pomocí 2-krokového procesu. Za prvé, pevné porézní kolagen-chondroitinsulfátové lešení byly vyrobeny lyofilizační kaší kolagenu bovinních šlach typu 1 a chondroitin-6-sulfátu získaného ze žraločí chrupavky (Sigma, UK). K výrobě lešení byl použit optimalizovaný proces lyofilizace navržený tak, aby vytvořil jednotné póry [73]. Na základě našeho zveřejněného protokolu [74], lyofilizované lešení byly poté dehydrotermálně (DHT) ošetřeny při 105◦C ve vakuu pro sterilizaci a mechanické vylepšení. Sterilizované skafoldy byly poté chemicky zesíťovány roztokem 14 mM N-(3-dimethylaminopropyl)-N'-ethylkarbodiimid hydrochloridu a 5,5 mM N-hydroxysukcinimidu (2,5 molární poměry EDC/NHS) (Sigma, UK) k dále zlepšit mechanickou stabilitu [75]. Zesíťované skafoldy byly poté promyty PBS (Gibco, Paisley, UK), aby se odstranily zbytkové chemikálie. Jakmile byly skafoldy připraveny, byly připraveny polyplexy v poměru N/P10 (poměr dusíku k fosfátu) smícháním předem stanoveného objemu roztoku rozvětveného polyethyleniminu (PEI) s plazmidovou DNA (pDNA) kódující lidský beta-Klotho gen ( -Klotho), získané od SinoBiological, Peking, Čína. Poměr N/P10 byl zvolen na základě našich předchozích studií, které zjistily, že polyplexy formulované v poměru N/P10 by mohly účinně tvořit malé, stabilní kationtové nanočástice s plazmidy velkými jako GLuc (5,76 kb) [21,23]. Před použitím byly plazmidy zředěny ve vodě bez endotoxinu, aby se získala pracovní koncentracez 0.5µg/µL. Plazmid obsahuje lidský zesílený bezprostředně-časný cytomegalovirus(CMV3) promotor pro podporu vysoké úrovně stabilní a přechodné exprese kódovanéhogen v savčích buňkách.
Směs plasmid/PEI se nechala usadit po dobu 30 minut, aby se sama sestavila do polyplexunanočástice. Nanočástice byly poté nasáknuty na lešení pipetovánímstejné objemy roztoku polyplexu na stranu skafoldu. Celkem 2µg pDNA bylapoužité na skafold k vývoji genově aktivovaného skafoldu.
4.2. Výsev buněk zapnutý -klotho genem aktivované lešení
Lidské ADSC (iXCells Biotechnologies, San Diego, CA, USA) byly rozšířeny do pasáže 4 v růstovém médiu ADSC (kat. č. MD0003) dodávaném společností. Celkem 5× 10⁵ ADSC (2.5× 10⁵ na stranu) byly poté nasazeny na bezgenovou kostru (kontrola,n = 3) nebo genově aktivované lešení (test,n = 3). Poté, co se buňky nechaly usadit po dobu asi 20 minut, byly přidány 2 ml transfekčního média OptiMEM (Gibco, UK) a celularizované skelety byly inkubovány při 37 °C.◦C po dobu 24 hodin. Po 24 hodinách inkubace byly celularizované bezgenové nebo genem aktivované skafoldy přeneseny do nových 12-jamkových destiček a napájeny 2 ml růstového média ADSC. Výměna média se pak prováděla každé 3–4 dny až do 14. dne odebráním 1 ml upraveného média (CM) a jeho nahrazením stejným objemem čerstvého média. Všechny CM byly uloženy na−80 ◦C až do analýzy.
4.3. qRT-PCR analýzy k určení -Nadměrná exprese genu Klotho a aktivace funkčních genů
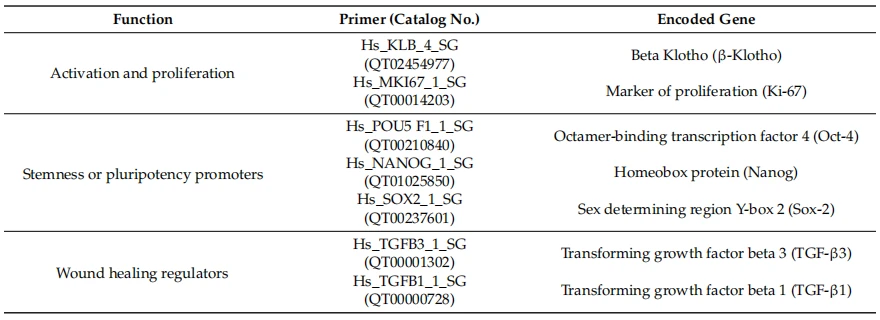
Za účelem stanovení přechodné regulace cílových genů byly buňky sklizeny ve dnech 3 (brzy) a 14 (pozdní) po naočkování na bezgenové nebo geny aktivované skelety. Buňky byly nejprve lyžovány pomocí lyzačního činidla Qiazol (Qiagen, Germantown, MD, USA). Poté byl přidán chloroform, aby se buněčný lyzát rozdělil na proteinovou, DNA a RNA fázi. Pomocí soupravy RNeasy Kit (Qiagen, Manchester, UK) byla extrahována RNA a jejich kvalita a množství byly stanoveny pomocí čtečky destiček Multiskan Go (Thermo Scientific, UK) s absorbancí nastavenou na 260 nm. Genomová DNA byla poté odstraněna smícháním RNA s pufrem pro odstranění genomové DNA (Qiagen, Manchester, UK) a zahřátím na 42 °C.◦C po dobu 2 min. Následně byla provedena reverzní transkripce pro přípravu cDNA. Duplikáty cDNA na replikát (n = 3) byly vloženy do qRT-PCR destiček a poté byl test spuštěn s použitím primerů uvedených v tabulce1. Násobná změna v expresi mRNA vzhledem k buňkám na bezgenovém skafoldu byla vypočtena pomocí 2−∆∆ČTmetodou z průměrů tří opakování na skupinu. Jako provozní gen byl použit lidský GAPDH (Hs_GAPDH_1_SG, kat. č. QT00079247).
4.4. Analýzy biologické aktivity vylučovaných faktorů z ADSC -klotho genem aktivované lešení
4.4.1. Proangiogenní analýzy bioaktivity
4.4.2. Analýzy hojení a zrání kožních fibroblastů
Po testu angiogeneze jsme zkoumali schopnost CM pro dermální hojení pomocí testu poškrábání dospělých lidských dermálních fibroblastů (iXcells, kat. č. 10 HU-014). Pro tuto studii jsme specificky vybrali stárnoucí KM od 14. dne ke studiu jeho vlivu na uzavření fibroblastové rány během zrání. Celkem 1× 10⁴ buňky/jamka v 96-jamkové destičce byly naočkovány a inkubovány přes noc ve fibroblastovém růstovém médiu. Další den byla na monovrstvě vytvořena rána horizontálním poškrábáním špičkou 200 ul pipety přes jamku. Monovrstva byla poté opláchnuta PBS, aby se odstranily veškeré zbytky, a napájena CM. Uzavření rány bylo zaznamenáno mezi 12–16 hodinami po škrábnutí. Imunobarvení bylo použito ke studiu exprese profibrotického kolagenu I (1:100, Novusbio, UK) a antifibrotického kolagenu III (1:100, Novusbio, UK) ve fibroblastech. Fibroblasty byly kontrastně obarveny rhodaminem (1:800, Abcam, UK) pro zobrazení F-aktinu. Imunobarvení bylo provedeno tak, jak je popsáno v části4.5, s výjimkou zpracování tkání a deparafinizace. Jak HUVEC, tak fibroblasty byly použity v pasáži 4.
4.5. Imunofluorescenční zobrazování extracelulárních matricových proteinů
Po 14 dnech kultivace byly celularizované bezgenové nebo genově aktivované skafoldy sklizeny pro detekci ukládání matrice pomocí imunofluorescence. Zpracování vzorků bylo provedeno tak, jak bylo popsáno dříve. Stručně, skafoldy byly nejprve promyty PBS a fixovány v 10% neutrálním pufrovaném formalínu po dobu 20 minut. Fixované vzorky byly poté zpracovány pomocí standardního protokolu pro deparafinizaci. Bloky byly poté rozřezány na 7-µm silných plátků a shromážděných na nabitých sklíčkách. Řezy byly poté deparafinizovány pomocí xylenu a následně rehydratace řezů se snižujícími se gradienty ethanolu. Následně byly buňky permeabilizovány pomocí 0,2 procenta Tweenu®20 (Sigma-Aldrich, Francie) roztok v PBS po dobu 30 minut (10 minut promývání× 3) a blokovány pomocí 10 procenta NGS (normální kozí sérum, Invitrogen, Rockford, IL, USA)/5 procent BSA/0,3 M glycinu (připraveného v permeabilizačním roztoku) po dobu 1 hodiny. Po zablokování byla sklíčka opláchnuta v PBS a poté inkubována při 4◦C přes noc s protilátkami proti cílovým matricovým proteinům uvedeným v tabulce2. Následující den byla sklíčka opláchnuta v PBS třikrát po dobu 2–3 minut, aby se odstranily všechny nenavázané primární protilátky. Následně byla sklíčka inkubována buď v Alexa 488-konjugovaném kozím anti-myším IgG (A32723, Invitrogen, UK) nebo Alexa 594-konjugovaném kozím anti-králičím IgG (A11012, Invitrogen, UK) v 1: 800 ul při pokojové teplotě po dobu 1 hodiny ve tmě. Krok promývání byl proveden jako dříve a dobarvena na jádra za použití montážního média s DAPI (ab104139, Abcam, UK). Sklíčka byla poté zobrazena pomocí fluorescenčního mikroskopu (Olympus BX43, Japonsko) při 20× objektivní. Vzorky inkubované pouze se sekundárními protilátkami byly použity jako kontroly.

Kvantifikace obrazu
Image] software (Image, NIH, MD, USA) byl použit k semikvantitativnímu stanovení množství exprimovaných proteinů. Pro každý marker byla nejprve stanovena konstantní prahová hodnota pomocí předběžného zobrazení různých řezů. Použitím nastavené prahové hodnoty byla stanovena integrovaná hustota (obarvená plocha x střední hodnota šedé) obrázků a poté normalizována na počet buněk (DAPI počítání), aby se získala konečná průměrná hustota fluorescence na buňku. Průměr byl kvantifikován z 8-10 náhodných snímků na replikát s minimálně třemi replikáty na skupinu. Průměry získané ze tří opakování/skupina byly poté použity pro měření relativní exprese mezi skupinami.
4.6. Statistická analýza
Všechny výsledky jsou vyjádřeny jako průměr plus standardní odchylka. K výpočtu statistické významnosti mezi skupinami byl obecně použit nepárový, dvoustranný t-test, kde p < 0,05 bylo považováno za významné
Tato studie ukázala, žeproti stárnutí - Klotho gen aktivovaný cistanchenabídky kontrolované aktivace regenerační kapacity ADSC. Klíčovými zjištěními této studie jsou (1)přechodné zvýšení pluripotence kmenových buněk a antifibrotické odpovědi, (2)zlepšená parakrinní kontrola směrem k angiogenezia profibrotická remodelace kolagenuv dermálních fibroblastech a nakonec (3)zvýšené zrání bazální membránys kontrolou nad expresí proteinů spojených s jizvou. Závěrem tyto výsledky naznačujíže ADSC-naložené -Scaffold aktivovaný genem Klotho může mít velký potenciál aošetření široké škály kožních ran.

zdroje, ALL, FJO a MBK; správa dat, ALL a MBK; psaní — příprava původního návrhution, ALL; psaní – recenze a úpravy, VŠECHNY, FJO a MBK; vizualizace, VŠECHNY; dozor,FJO a MBK; administrace projektu, MBK; získávání finančních prostředků, FJO a MBK Všichni autořipřečetli publikovanou verzi rukopisu a souhlasili s ní.
Střet zájmů:Autoři prohlašují, že neexistuje žádný střet zájmů.
Reference
1. Laiva, AL; O'Brien, FJ; Keogh, MB Inovace v systémech dodávání genů a růstových faktorů pro hojení diabetických ran.J. Tissue Eng. Regen. Med.2018, 12, e296–e312. [CrossRef] [PubMed]
2. Makrantonaki, E.; Wlaschek, M.; Scharffetter-Kochánek, K. Patogeneze poruch hojení ran u seniorů.JDDG J. Dtsch. Dermatol. Ges.2017, 15, 255–275. [CrossRef] [PubMed]
3. Ganguly, P.; El-Jawhari, JJ; Burska, AN; Ponchel, F.; Giannoudis, PV; Jones, EA Analýza in vivo stárnutí v mezenchymálních stromálních buňkách lidské kostní dřeně pomocí testu na jednotce tvořící kolonie-fibroblasty a fenotypu CD45lowCD271 plus.Stem Cells Int.2019, 2019, 5197983. [CrossRef]
4. Westerweel, PE; Teraa, M.; Rafifii, S.; Jaspers, JE; White, IA; Hooper, AT; Verhaar, MC Porucha mobilizace endoteliálních progenitorových buněk a dysfunkční stroma kostní dřeně u diabetes mellitus.PLoS ONE2013, 8, e60357. [CrossRef]
5. Murray, RZ; Západ, ZE; Cowin, AJ; Farrugia, BL Vývoj a použití biomateriálů jako terapie hojení ran.Hořet. Trauma2019,
6. [CrossRef] [PubMed] 6. Ebrahimian, TG; Pouzoulet, F.; Squiban, C.; Buard, V.; André, M.; Bratranec, B.; Tamarat, R. Buněčná terapie založená na stromálních buňkách derivovaných z tukové tkáně podporuje fyziologické a patologické hojení ran.Arterioskler. Thromb. Vasc. Biol.2009, 29, 503–510. [CrossRef]
7. Wu, Y.; Chen, L.; Scott, PG; Tredget, EE Mezenchymální kmenové buňky zlepšují hojení ran prostřednictvím diferenciace a angiogeneze.Kmenové buňky2007, 25, 2648–2659. [CrossRef] [PubMed]
8. Foubert, P.; Gonzalez, AD; Teodosescu, S.; Berard, F.; Doyle-Eisele, M.; Yekkala, K.; Fraser, JK Regenerativní buněčná terapie získaná z tukové tkáně pro hojení popálenin: Srovnání dvou způsobů dodání.Adv. Péče o rány2016, 5, 288–298. [CrossRef] [PubMed]
9. Assi, R.; Foster, TR; On, H.; Stamati, K.; Bai, H.; Huang, Y.; Dardik, A. Dodání mezenchymálních kmenových buněk v biomimeticky upravených scaffoldech podporuje hojení diabetických vředů.Regen. Med.2016, 11, 245–260. [CrossRef] [PubMed]
10. Jiang, Y.; Chen, B.; Liu, Y.; Zhufu, Z.; Yan, X.; Hou, X.; Tan, Q. Vliv kolagenového lešení s buňkami stromální vaskulární frakce odvozenými z tukové tkáně na hojení diabetických ran: Studie na modelu diabetických prasat.Tissue Eng. Regen. Med.2013, 10, 192–199. [CrossRef]
11. Falanga, V.; Sabolinski, M. Dvojvrstvý živý kožní konstrukt (APLIGRAF®) urychluje úplné uzavření těžce se hojících bércových vředů.Regenerace na hojení ran.1999, 7, 201–207. [CrossRef] 12. Hart, CE; Loewen-Rodriguez, A.; Lessem, J. Dermagraft: Využití při léčbě chronických ran.Adv. Péče o rány.2012, 1, 138–141. [CrossRef] [PubMed] 13. Dinh, TL; Veves, A. Účinnost Apligrafu při léčbě vředů diabetické nohy.Plast. Rekonstr. Surg.2006, 117, 152S–157S. [CrossRef] [PubMed]
14. Eaglstein, WH; Falanga, V. Tkáňové inženýrství a vývoj Apligrafu®, ekvivalent lidské kůže.Clin. Ther.1997, 19, 894–905. [CrossRef]
15. Jiang, T.; Xu, G.; Wang, Q.; Yang, L.; Zheng, L.; Zhao, J.; Zhang, X. Expanze in vitro narušila kmenovost časných pasáží mezenchymálních kmenových buněk pro léčbu defektů chrupavky.Cell Death Dis2017, 8, e2851. [CrossRef] [PubMed]
16. Liu, J.; Ding, Y.; Liu, Z.; Liang, X. Senescence v mezenchymálních kmenových buňkách: Funkční změny, molekulární mechanismy a strategie omlazení.Přední. Cell Dev. Biol.2020, 8, 258. [CrossRef] [PubMed]
17. Wang, W.; Xu, X.; Li, Z.; Lendlein, A.; Ma, N. Genetické inženýrství mezenchymálních kmenových buněk dodáním nevirového genu.Clin. Hemoreol. Microcirc.2014, 58, 19–48. [CrossRef]
18. Děveza, L.; Choi, J.; Lee, J.; Huang, N.; Cooke, J.; Yang, F. Nadměrná exprese CXCR4 indukovaná nanočásticemi polymerní DNA zlepšuje přihojení kmenových buněk a regeneraci tkání v modelu ischemie zadní končetiny u myši.Teranostika2016, 6, 1176–1189. [CrossRef] [PubMed]
19. O'Brien, FJ Biomateriály a lešení pro tkáňové inženýrství.Mater. Dnes2011, 14, 88–95. 20. Yannas, I.; Tzeranis, D.; Harley, B.; Takže, P. Biologicky aktivní lešení na bázi kolagenu: Pokroky ve zpracování a charakterizaci.Philos. Trans. R. Soc. Matematika. Phys. Ing. Sci.2010, 368, 2123–2139. [CrossRef]
21. Laiva, AL; Raftery, RM; Keogh, MB; O'Brien, FJ Proangiogenní dopad SDF-1 genově aktivované lešení založené na kolagenu v angiogenezi řízené kmenovými buňkami.Int. J. Pharm.2018, 544, 372–379. [CrossRef] [PubMed]
22. Lackington, WA; Raftery, RM; O'Brien, FJ In vitro účinnost genově aktivovaného nervového vedení obsahujícího nevirové nanočástice PEI-pDNA nesoucí geny kódující NGF, GDNF a c-Jun.Acta Biomater.2018, 75, 115–128. [CrossRef]
23. Tierney, EG; Duffy, praktický lékař; Hibbitts, AJ; Cryan, SA; O'Brien, FJ Vývoj nevirových genově aktivovaných matric pro regeneraci kostí pomocí polyethyleniminu (PEI) a kolagenových lešení.J. Control. Uvolnění2012, 158, 304–311. [CrossRef] [PubMed] 24. Laiva, AL; O'Brien, FJ; Keogh, MB SDF-1 genově aktivovaný kolagenový skelet řídí funkční diferenciaci lidských Schwannových buněk pro aplikace při hojení ran.Biotechnol. Bioeng.2021, 118, 725–736. [CrossRef] [PubMed]