Část 1 Akteosid potlačuje RANKL-zprostředkovanou osteoklastogenezi inhibicí indukce C-Fos a NF-kB dráhy a oslabením produkce ROS
Mar 04, 2022
Část 1 Jak Acteosides podporují růst kostí?
Další information:ali.ma@wecistanche.com
Seung-Youp Lee1,2., Keun-so Lee3.¤, Sea Hyun Yi2., Sung-Ho Kook2, Jeong-Chae Lee2,3* 1 Výzkumný ústav klinické medicíny Chonbuk National University, Biomedicínský výzkumný ústav Chonbuk National University Hospital, Jeonju, Chonbuk, JižníKorea, 2 Oddělení ortodoncie, Institut orálních biologických věd a stomatologická škola, Chonbuk National University, Jeonju, Chonbuk, Jižní Korea, 3 Oddělení bioaktivních materiálových věd, Výzkumné centrum bioaktivních materiálů, Chonbuk National University, Jeonju, Chonbuk, Jižní Korea
Abstraktní
Četné studie uvádějí, že zánětlivé cytokiny jsou důležitými mediátory osteoklastogeneze, což způsobuje nadměrnou kostní resorpci a osteoporózu.Akteosid, hlavní účinná látka Rehmannia glutinosa, která se široce používá v tradiční orientální medicíně, má protizánětlivý a antioxidační potenciál. V této studii jsme zjistili, že strana CTE výrazně inhibuje diferenciaci a tvorbu osteoklastů z makrofágů kostní dřeně (BMM) a makrofágů RAW264.7 stimulovaných aktivátorem receptorového aktivátoru ligandu jaderného faktoru kappaB (NF-kB) (RANKL). Acteosidepretreatment také zabránil kostní resorpci zralými osteoklasty způsobem závislým na dávce. Akteosid (10 mM)zeslabila RANKL stimulovanou aktivaci p38 kinázy, extracelulárních signálem regulovaných kináz a c-Jun N-terminální kinázy a také potlačila aktivaci NF-kB inhibicí fosforylace podjednotky p65 a inhibitoru kBa. Kromě toho rankl-zprostředkované zvýšení exprese c-Fos a jaderného faktoru aktivovaných T-buněk, cytoplazmatické 1 (NFATc1) a produkce faktoru nádorové nekrózy-a, interleukinu (IL)-1b a IL-6 bylo zjevně inhibováno akteosidovou předúpravou. Dále perorální akteosid snížil ztrátu kostní hmoty vyvolanou ovariektomií a produkci zánětlivých cytokinů ke kontrole hladin. Naše data naznačují, žeakteosidinhibuje diferenciaci osteoklastů a zrání osteoklastických prekurzorů potlačením aktivace mitogenem aktivovaných proteinkináz a transkripčních faktorů, jako jsou NF-kB, c-Fos a NFATc1.akteosidmůže působit jako antiresorpční činidlo ke snížení úbytku kostní hmoty blokováním aktivace osteoklastů.
Pro více informací prosím contact:ali.ma@wecistanche.com

Klikněte na Cistanche efektové produkty
Úvod
Kost je neustále remodelována vyváženou aktivitou osteoklastů a osteoblastů [1]. Osteoklasty vznikají z hematopoetických prekurzorových buněk linie monocytů/makrofágů, zatímco osteoblasty jsou z mezenchymální linie [2]. Abnormální aktivaceosteoklastů nebo snížená osteoblastogeneze může narušit kostní homeostázu, což nakonec způsobuje onemocnění, jako je osteoporóza, artritida a rakovina kostí [3,4]. Osteoporóza je běžné onemocnění kostí, které vede ke zvýšenému riziku zlomeniny. Nejběžnější forma osteoporózy je způsobena nedostatkem estrogenu u žen v menopauze. Léky, jako jsou kortikosteroidy a antiepileptika, mohou také způsobit nerovnováhu mezi kostní resorpcí a tvorbou, což může vést k osteoporóze [5]. Mnoho antiresorpčních inhibitorů včetně bisfosfonátů, kalcitoninu, estrogenu a selektivních modulátorů estrogenových receptorů bylo použito k léčbě osteoporózy. Tyto inhibitory udržují kostní hmotu inhibicí funkce osteoklastů [6]. Estrogenová substituční terapie je nejoblíbenější léčbou prevence a léčby postmenopauzální osteoporózy. Dlouhodobá substituční terapie estrogenem však může zvýšit riziko rakoviny endometria a prsu. Proto mnoho výzkumníků zaměřilo své úsilí na vývoj nové antiresorpční látky, která nemá vedlejší účinky [7-10]. Vzhledem k tomu, že osteoklasty fungují při resorpci kostí, specificky inhibující osteoklasty byly v mnoha studiích považovány za hlavní cíl. Osteoklasty jsou mnohojaderné obří buňky tvořené mononukleárními progenitory rodiny monocytů/makrofágů prostřednictvím sekvenční proliferace, diferenciace a fúze hematopoetických prekurzorových buněk [11]. Faktor stimulující kolonie makrofágů (M-CSF) a aktivátor receptoru ligandu jaderného faktoru (NF)-kB (RANK)(RANKL) jsou základními faktory pro diferenciaci osteoklastů[12]. Kromě toho několik zánětlivých cytokinů, jako je faktor nekrózy nádorů (TNF) a interleukin (IL)-1b, přispívá k osteoklastogenezi modulací indukce RANKL, osteoprotegerinu a M-CSF [7,13]. Vazba RANKL na buněčný povrch RANK receptoru vede ke vzniku komplexů RANKL/RANK/TNFR asociovaných faktorů (TRAF), které sekvenčně aktivují NF-kB a mitogenem aktivované proteinkinázy (MAPK), včetně c-Jun N-terminální kinázy (JNK), p38 kinázy a extracelulární signální kinázy (ERK) [14]. Tato aktivace hraje klíčovou roli při zprostředkování diferenciace, aktivace a přežití osteoklastů. RANKL také aktivuje expresi transkripčních faktorů, jako je jaderný faktor aktivovaných T-buněk, cytoplazmatická 1 (NFATc1) a-Fos, které jsou nezbytné pro vývoj osteoklastů [7,9]. Proto je RANKL signalizace považována za hlavní cíl antiresorpčních látek, které potlačují aktivaci osteoklastů a úbytek kostní hmoty.
Akteosidje hlavní účinnou látkou Rehmannia glutinosa, která se široce používá v tradiční orientální medicíně [15,16]. Acteosid je silný antioxidant a má antihepatotoxické, protizánětlivé a anti nociceptivní aktivity [17–20]. Dříve jsme zjistili, žeakteosidsnižuje aktivitu tyrosinázy a biosyntézu melaninu regulací ERK signalizace [21], chrání před reaktivním poškozením dásní zprostředkovaným formami kyslíku (ROS)[22] a potlačuje poškození buněk zprostředkované mykotoxiny [23]. Tyto účinky úzce souvisejí sacteosidyschopnost odstranit ROS a regulovat signalizaci zprostředkovanou MAPK. Zejména ros se doporučuje mediátoru RANKL-indukovaných signálních drah a buněčných příhod v osteoklastech. Předléčba antioxidanty inhibovala RANKL indukovanou aktivaci NF-kB, ERK a IkBa, čímž potlačila osteoklastogenezi [24]. Tato zjištění silně naznačují, že kromě protizánětlivé aktivity a antioxidační aktivity je rozhodující pro antiresorpční činidlo, a protoakteosidmůže potlačit osteoklastogenezi indukovanou RANKL.
V této studii jsme zkoumali, zdaakteosidmá terapeutický účinek na úbytek kostní hmoty. Zkoumali jsme účinkyakteosido diferenciaci osteoklastů a kostní resorpci a souvisejících buněčných mechanismech využívajících experimentální systémy in vitro a in vivo.

Materiály a metody
Etické prohlášení
Postupy péče o zvířata a jejich používání byly schváleny ChonbukNational University Committee on Ethics in the Care and Use of Laboratory Animals (povolení č. CBU 2010-0007). Všechny experimenty v této studii byly provedeny podle pokynů Výboru pro péči o zvířata a jejich použití univerzity.
Myši, chemikálie a laboratorní zboží
Čtyřtýdenní samice myší ICR byly zakoupeny od společnosti OrientBio Inc. (Soul, Korea) a umístěny na 2261uC a 5565% vlhkosti na 12 h cyklu světlo / tma s volným přístupem k jídlu a vodě. Akteosid (3,4-dihydroxy-b-fenethyl-O-a-rhamnopyranóza-Syl-(1R3)-4-O-caffeoyl-b-D-glukopyranosid; C29H36O15) (obr. S1)byl izolován z listů Rehmannia glutinosa. Akteosid byl před použitím rozpuštěn ve fyziologickém roztoku pufrovaném fosfátem (PBS). RANKL, TNF-a, IL-1b, IL-6 a M-CSF byly zakoupeny od R & D systémů (Minneapolis, MN, USA). Protilátky specifické pro c-Fos,p65, p-p65, p-ERK, ERK, JNK, p-JNK, NFATc1, IkBa, p-IkBa a b-aktin byly získány od Santa Cruz Biotechnology (Santa Cruz, CA, USA). Protilátky proti p-p38 a p38 byly zakoupeny od společnosti Cell Signaling Technology (Danvers, MA, USA). Soupravy EIA pro stanovení obsahu vápníku a osteokalcinu (OC) byly zakoupeny od společností BioAssay Systems (Hayward, CA, USA) a Biomedical Technologies (Stoughton, MA, USA) za účelem stanovení biochemických parametrů séra. K měření hladiny TRAP5b v séru byla také použita souprava pro stanovení obsahu kyselé fosfatázy (TRAP) rezistentní na myší tartrát (Immunodiagnostic Systems, Scottsdale, AZ, USA). Pokud není uvedeno jinak, další chemikálie byly získány od společnosti Sigma Chemical Co. (St. Louis, MO, USA) a laboratorní zboží bylo od společnosti SPL Life Sciences (Pochun, Jižní Korea).
Buněčné kultury
Buňky kostní dřeně byly získány z holenní kosti a femory 6 týdenních samic myší ICR podle výše popsaných metod [25]. Suspenze kostní dřeně byla inkubována v kultivační misce a100 mm za přítomnosti 50 ng/ml M-CSF. Po 3 dnech byly adherentní buňky použity jako makrofágy kostní dřeně (BMM) k indukci osteoklastické diferenciace. Některé buňky kostní dřeně byly také inkubovány po dobu 48 hodin bez M-CSF a adherentní buňky byly kultivovány v médiu diferencujícím osteoblasty, jak je popsáno jinde [25]. RAW264.7 makrofágové buňky byly kultivovány v modifikovaném Eagleově médiu (DMEM) společnosti Dulbecco doplněném 10% fetálním bovinním sérem (FBS), 2 mM L-glutaminem a antibiotiky. Tyto buňky byly použity jako protějšek buněčné linie pro BMM k prozkoumání účinku akteosidu na osteoklastogenezi.
Osteoklastická diferenciace a barvení TRAP
BMM byly předem ošetřeny různými koncentracemi (0–50 mM) akteosidu po dobu 2 hodin před stimulací 100 ng/ml RANKL. Kulturní média byla nahrazena čerstvými médii ve dnech 2 a 5. Po 7 dnech inkubace byly kultury fixovány ve 4% PARAFORMALDEHYDU pufrovaném PBS a obarveny TRAP pomocí sigma Aldrich kitu podle pokynů výrobce. TRAP-pozitivní buňky byly počítány pomocí optické mikroskopie a buňky obsahující 3 nebo více jader byly považovány za osteoklasty. Buňky RAW 264,7 byly také vystaveny 100 ng/ml RANKL po předběžné léčbě akteosidem po dobu 2 hodin a po 7 dnech inkubace byly buňky zpracovány pro barvení TRAP.

Měření životaschopnosti buněk
Životaschopnost buněk byla stanovena pomocí činidla tetrazoliové soli rozpustné ve vodě (WST)-8. Stručně řečeno, buňky BMM nebo RAW264.7 kultivované v růstovém médiu obsahujícím 10% FBS a antibiotika byly léčeny 10 mM akteosidem nebo fenolickou sloučeninou, jako je quercetin, luteolin, apigenin nebo epigalokatechin-3-galát (EGCG). Činidlo WST-8 bylo přidáno do kultur po 48 hodinách inkubace. Po inkubaci po dobu dalších 4 hodin byla specifická absorbance WST-8 měřena při 450 nm pomocí čtečky mikrodestiček (Packard Instrument Co., Downers Grove, IL, USA).
Test resorpce kostí
BMM (16105 buněk/ml) byly suspendovány v a-MEM obsahujícím 50 ng/ml M-CSF a 100 ng/ml RANKL, poté rozděleny na a24jamkovou destičku potaženou nanokrystaly fosforečnanu vápenatého (OAAS-24; Osteoclast Activity Assay Substrate, Oscotec Inc., Choongnam, Jižní Korea) v hustotě 26104 buněk/cm2 s akteosidem a bez něj. Po inkubaci po dobu 7 dnů byly buňky odstraněny z destiček s 5% chlornanem sodným a informace byly pozorovány pod optickým mikroskopem. Resorbovaná plocha byla také měřena obrazovým analyzátorem a vyjádřena jako procento kontrolní hodnoty.
Analýza Western Blot
Celé proteinové lyzáty byly připraveny v lyzačním pufru, jak je popsáno jinde [26]. Cytosolické a jaderné proteiny byly připraveny tak, jak bylo popsáno výše [25]. Stejné množství proteinového extraktu bylo odděleno 12–15% SDS-PAGE a naneseno na polyvinyldifluoridové membrány. Skvrny byly vyšetřeny primárními protilátkami přes noc při 4uC před inkubací se sekundární protilátkou v blokujícím pufru po dobu 1 hodiny. Skvrny byly vyvinuty se zvýšenou chemiluminiscencí (Amersham Pharmacia Biotech Inc., Buckinghamshire, UK) a vystaveny rentgenovému filmu (Eastman-Kodak Co., Rochester, NY, USA).

Test aktivity MAPK
Buňky byly předem ošetřeny akteosidem po dobu 2 hodin a poté stimulovány RANKL po dobu dalších 30 minut. Aktivity MAPK byly stanoveny pomocí imunometrických testovacích souprav, jako je souprava pro stanovení p-p38kinázy (Assay Designs, Inc., MI, USA), sada pro enzymové testy p-ERK (Assay Designs) a p-SAPK / JNK sendvičová sada ELISA (Cell Signaling Technology, MA, USA). Všechny postupy se řídily pokyny výrobce a absorbance byla měřena čtečkou mikrodestiček.
Elektroforetický test posunu mobility (EMSA)
Vazebné reakce DNA-protein byly prováděny po dobu 30 minut při pokojové teplotě, s 10–15 mg proteinu ve 20 ml pufru obsahujícím 1 mg/ml BSA, 0,5 mg/ml poly (dI-dC), 5 % glycerolu,1 mM DTT, 1 mM PMSF, 10 mM Tris-Cl (pH 7,5), 50 mm NaCl, 30 000 CPM [a-32P] oligonukleotidů značených dCTP a Klenowův fragment DNA polymerázy. Vzorky byly odděleny na 6% polyakrylamidových gelech, které byly sušeny a vystaveny rentgenovému filmu (Eastman Kodak Co.) po dobu 12–24 hodin při teplotě 270uC. Sekvence oligonukleotidových primerů specifické pro NF-byly 59-AAG GCC TGT GCT CCG GGA CTT TCC CTGGCC TGG A-39 a 39-GGA CAC GAG GCC CTG AAA GGGACC GGA CCT GGA A-59.
NF-kB Luciferázový test
RAW264.7 makrofágy ve 24jamkových destičkách byly transfekovány 0,8 mg kB-luciferázovým reporterovým vektorem pomocí 2 ml Lipofectamine2000 (Invitrogen, Carlsbad, CA, USA) podle pokynů výrobce. Po 24 hodinách po transfekci byly buňky stimulovány RANKL v přítomnosti a nepřítomnosti akteosidu po dobu 24 hodin. Buňky byly resuspendovány ve 100 ml reportérského lyzačního pufru (Promega, Madison, WI, USA). Stejné množství vzorků proteinů bylo umístěno do 96jamkových mikrodestiček a smícháno se substrátem luciferázy. Luminiscence byla měřena pomocí mikrodestičkového luminometru (MicroLumat Plus LB 964, Berthold Technologies, Bad Wildbad, Německo). V tomto experimentu byl jako pozitivní kB inhibitor použit propustný inhibitor NF-B inhibitor peptid (BIOMOL, Butler Pike, PA, USA).
Měření cytokinů
BMM nebo RAW264.7 buňky byly stimulovány RANKL v přítomnostiakteosidv kultivačních deskách s 24 jamkami. Po 48 hodinách inkubace byly supernatanty kultury odebrány a vyhodnoceny elisa pomocí souprav OptEIATM specifických pro TNF-a-, IL-1b a IL-6 podle pokynů výrobce.
Reverzní transkripce v reálném čase polymerázová řetězová reakce (RT-PCR)
Exprese mRNA osteoklasmatických markerů, jako jsou c-Fos, NFATc1 a TNF-a, byla určena RT-PCR v reálném čase. Stručně řečeno, celková RNA byla extrahována z makrofágů trizolreagenem podle pokynů výrobce (Invitrogen).cDNA byla syntetizována s 1 mg celkové RNA pomocí SuperScriptReverse Transcripatase II a primerů (Invitrogen). Power SYBRGreen PCR Master Mix (Applied Biosystems, Foster City, CA, USA) byl použit k detekci akumulace produktu PCR během cyklování se sekvenčním detekčním systémem ABI 7500 (aplikován pomocí čtyřiceti 3-krokových cyklů denaturace při 95uC po dobu 15 sec, žíhání při 60uC po dobu 1 sekundy a prodloužení při 72uC po dobu 30 sec. Všechny PCR reakce byly provedeny alespoň ve trojím vyhotovení a úrovně exprese byly normalizovány na domácí genHPRT ve stejné reakci. Tato studie použila stejné sekvence primerů popsané jinde [7].
Měření intracelulární ROS
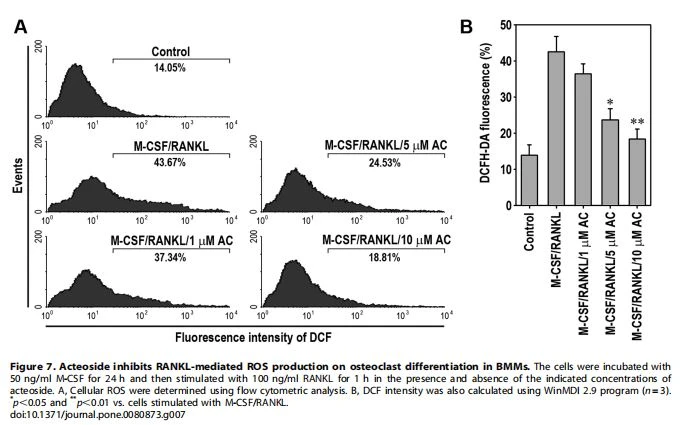
Zásobní roztok 29,79-dichlordihydrofluorescein-diacetátu(DCFH-DA) (50 mM; Calbiochem, Darmstadt, Německo) byl připraven v DMSO a skladován při 220uC ve tmě. Stručně řečeno, BMM (106 buněk/ml v 6jamkových destičkách) byly kultivovány 50 ng/MLM-CSF po dobu 24 hodin a poté ošetřeny různými koncentracemi (0–10 mM) akteosidu 2 h před stimulací 100 ng/mlRANKL. Po 1 hodině koinkubace byly tyto buňky následně inkubovány 25 mM DCFH-DA po dobu 30 minut. Zelená fluorescence 29,79-dichlorfluoresceinu (DCF) byla zaznamenána při 515 nm (FL 1) pomocí systému FACS VantageH (Becton-Dickinson, San Jose, CA, USA) a na vzorek bylo započítáno 10 000 příhod
Indukce osteoporózy vyvolané ovariektomií
Pro tuto studii byly použity samice myší ICR (6 týdnů). Myši podstoupily falešnou operaci (Sham, n = 10) nebo chirurgickou ovariektomizovanou (OVX, n = 20) v anestezii. Jeden týden po operaci byly myši OVX náhodně rozděleny do 2 skupin po 10 myších: bilaterální OVX a bilaterální OVX doplněné o 200 ml PBS obsahující 1 mM akteosid perorálně (AC skupina). Orálníakteosidbyl podáván jednou za 3 dny po dobu 8 týdnů po operaci a stejné množství PBS bylo podáno skupinám Sham a OVX. Po 1 dni od posledního podání byly myši obětovány a poté byly analyzovány biochemické parametry v séru a 3-rozměrné struktuře kostí.
Stanovení biochemických parametrů séra
Vzorky krve byly odebrány srdeční punkcí a sérum bylo odebráno centrifugací. Vzorky séra byly skladovány při teplotě 280uC pro analýzu biochemických parametrů. Sérové hladiny IL-1b a IL-6 byly odhadnuty pomocí soupravy ELISA, jak je popsáno výše, zatímco aktivita alkalické fosfatázy (ALP) byla stanovena pomocí biochemického kolorimetrického testu, který měří množství p-nitrofenolu vyrobeného ze substrátu p-nitrofenolfosfátu, jak je popsáno jinde [27]. Pro odhad biomarkerů tvorby a resorpce kostí byly také stanoveny hladiny OC, vápníku a TRAP5b v séru podle pokynů výrobce.
Analýzy struktury kostí a morfometrických parametrů
Femora myší (sham, OVX a AC skupiny) byla pitvána a naplněna fyziologickým roztokem pro mechanické testování. Mechanická pevnost stehenní kosti byla měřena tak, jak je popsáno jinde [28]. Lomové zatížení bylo zaznamenáno jako maximální síla v newtonech v bodě, kdy se zlomenina pravé stehenní kosti zlomí. Kromě toho byla lehká stehenní kost každého zvířete histomorfometricky analyzována pomocí mikropočítačové tomografie (mikro-CT) systému (rentgenový systém SkyScan 1076 s mikrofokusem, Kontich, Belgie). Stručně řečeno, kosti ve 4% skladu formaldehydu byly povrchově vysušeny na papírovém kapesníku předtím, než byly zabaleny do plastové "přilnavé fólie" nebo do parafilmu, aby se zabránilo vysychání během skenování. Každá kosti zabalená v plastu byla umístěna do plastových / polystyrenových pěnových trubek, které byly namontovány vertikálně vodorovně v komoře pro odběr vzorků skeneru 1076 pro mikro-CT zobrazování. Skenování bylo provedeno pomocí zdrojového napětí 100 kV a zdrojového proudu 140 mA s rozlišením 35 mm. Trojrozměrné modely trabekulárních kostí stehenní kosti byly rekonstruovány pomocí SkyScan CT Analyzer verze 1.11. Poté byly měřeny strukturní parametry, jako je minerální hustota trabekulární kosti (BMD, g / cm3), procento objemu kostí (objem kostí (BV) / objem tkáně (TV), tloušťka (Tb.Th, mm), separace (Tb.Sp, mm) a počet (Tb.N, 1 / mm).
Osteogenní diferenciace a mineralizační test
Buňky kostní dřeně kultivované v 6jamkových kultivačních destičkách byly ošetřeny DAG (10 nM dexamethason, 50 mM kyselina askorbová a20 mM b-glycerofosfát) v přítomnosti 10 mMakteosid. Po 2 týdnech diferenciace byly buňky fixovány ledově studeným 70% (obj.) ethanolem po dobu 1 hodiny a obarveny 0,2% alizarinovou červenou destilovanou vodou Sin po dobu 30 minut při pokojové teplotě. Poté, co byly buňky odbarveny a vysušeny na vzduchu, byly destičky buněčných kultur vyhodnoceny světelnou mikroskopií pomocí invertovaného mikroskopu (Nikon TS100, Japonsko). Pro kvantifikaci množství červeného barviva byla skvrna eluována 10% acetylpyridindiachloridem třepáním po dobu 20 minut a absorbance byla měřena při 560 nm. Množství vápníku uloženého v buněčných vrstvách bylo také měřeno pomocí sady vápníku (Wako Chemical Inc. Osaka, Japonsko) podle pokynů výrobce. Kromě toho byla exprese kostních specifických mRNA markerů, jako je transkripční faktor 2 (Runx2), osterix, kostní sialoprotein (BSP) a OC, určena pomocí RT-PCR v reálném čase. Oligonukleotidové primery těchto markerů byly navrženy s velikostí produktu menší než 200 bp pomocí Softwaru PrimerExpress 3.0 (Applied Biosystems), jak je popsáno jinde[27].

Statistická analýza
Není-li uvedeno jinak, jsou všechny údaje vyjádřeny jako střední směrodatná odchylka 6 (S.D.) 3 nebo více nezávislých experimentů. Jednosměrná ANOVA byla použita pro vícenásobné porovnání pomocí softwaru SPSS verze 12.0. Hodnota p,0,05 byla považována za statisticky významnou.
Výsledky
Akteosid inhibuje tvorbu osteoklastů makrofagesinem způsobem závislým na dávce
Pro ověření účinku akteosidu na diferenciaci BMM na osteoklasty byly buňky kultivovány v různých koncentracích (0–20 mM) akteosidu po dobu 7 dnů v přítomnosti 50 ng/ml M-CSF a 100 ng/ml RANKL. Akteosid snížil počet osteoklastů způsobem závislým na dávce. Když byly buňky předléčeny akteosidem o objemu 10 mM po dobu 2 hodin, počet osteoklastů se snížil o 43 % ve srovnání s buňkami doplněnými M-CSFand RANKL (obr. 1A). Obr. 1B ukazuje RANKL zprostředkovanou diferenciaci osteoklastů a její inhibici kombinovanou léčbou akteosidem. V souladu s tímto výsledkem snížila akteosidová předúprava RANKL stimulovanou diferenciaci RAW264.7 buněk a tvorbu osteoklastů (obr. 1C a D). Když byl antiosteoklastický potenciál akteosidu na BMM porovnán s antiosteoklastickým potenciálem několika fenolických sloučenin ve stejné koncentraci (10 mM), luteolin vykazoval nejvyšší aktivitu (obr. 2A). Luteolin, quercetin nebo apigenin však samy o sobě snížily životaschopnost buněk (obr. 2B). Všechny sloučeniny inhibovaly osteoklastickou diferenciaci makrofágy RAW264.7 s následující relativní aktivitou: luteolin. quercetin = apigenin . EGCG = akteosid (obr. 2C). Luteolin, quercetin nebo samotný apigenin také vykazoval sníženou životaschopnost buněk (obr. 2D). Naproti tomu léčba quercetinem způsobila významné snížení životaschopnosti jak v BMM, tak v buňkách RAW264.7, když byly tyto buňky vystaveny 10 mM každé sloučeniny po dobu 2 dnů s 50 ng / ml M-CSF, 100 ng / ml RANKL nebo obojím (údaje nejsou uvedeny). Pokud je koncentrace těchto sloučenin nutná k inhibici 50%


Tvorba osteoklastů v BMM (IC50) byla vypočtena pomocí křivek koncentrace a aktivity, IC50akteosid, quercetin, luteolin, apigenin a EGCG byly 5,1, 2,3, 2,6, 4,8 a 6,6 mM (obr. 2E). Tento výsledek byl podobný případu, kdy byly zkoumány makrofágy RAF264,7. Tyto údaje naznačovaly, že luteolin a quercetin měly antiklastogenní aktivity vyšší než akteosid. Naproti tomu quercetin v IC50 měl také mírný toxický účinek na buňky (údaje nejsou uvedeny).
Akteosid inhibuje kostní resorpci makrofágy
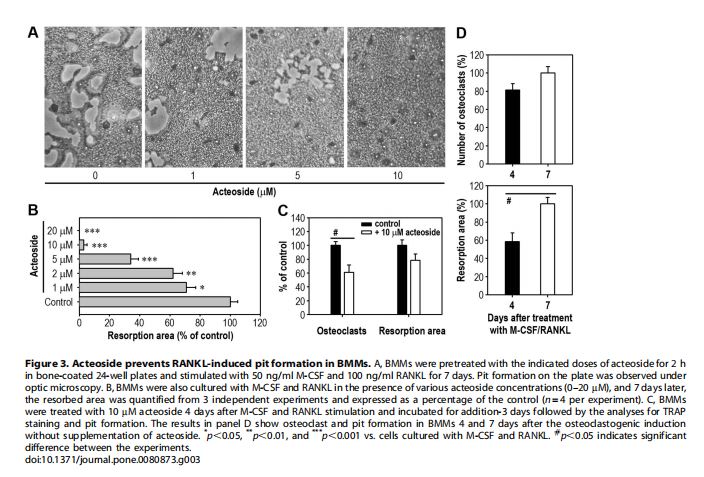
Akteosid také zabránil RANKL-zprostředkované kostní resorpci způsobem závislým na dávce, měřeno modelovým systémem in vitro (obr. 3A). Kostní resorpce byla významně inhibována, když byla BMM inkubována s akteosidem o objemu 1 mM (obr. 3B). A 10 mMakteosidléčba téměř úplně zeslabila informace vyvolané RANKL BMM. Podobně akteosid snížil kostní resorpci v buňkách RAW264.7 stimulovaných RANKL (obr. S2A a B). Schopnost akteosidu inhibovat kostní resorpci závisela na načasování léčby ve vztahu ke stimulaci RANKL. Akteosid (10 mM) přidaný 4 dny po stimulaci RANKL nesnížil informace v BMM, zatímco potlačil počet vytvořených osteoklastů (obr. 3C). Tento odlišný výsledek byl částečně způsoben oblastí jámy, která se již vytvořila po 4 dnech tvorby stimulace RANKL (obr.3D).
Acteoside Down-Reguluje časnou SIGNALIZACI RANKLPathways
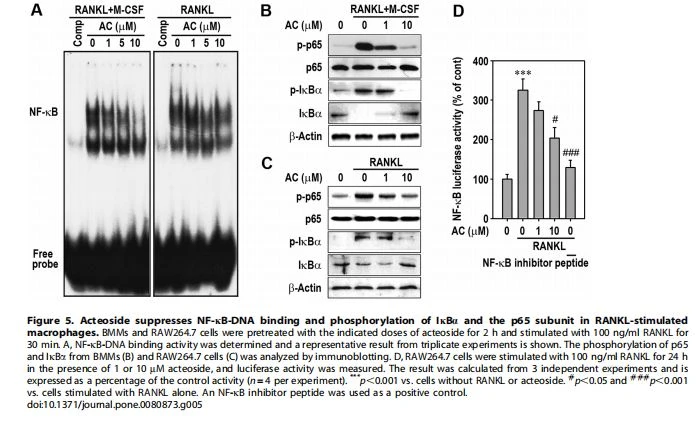
RANKL indukuje aktivaci 3 dobře známých MAPK a NF-kB v prekurzorech osteoklastů a tato aktivace je nutná pro časnou diferenciaci osteoklastů. Abychom porozuměli možným mechanismům, kterými akteosid inhibuje osteoklastogenezi, zkoumali jsme účinekakteosidna MAPK a NF-B aktivaci v makrofágech. Buňky BMM a RAW264.7 byly předléčeny 10 mM akteosidem po dobu 2 hodin a poté stimulovány 100 ng/ml RANKL po dobu 30 min. Fosforylace MAPK byla zkoumána Western blottingem a imunometrickou analýzou. RANKL indukoval fosforylaci buněk p38, ERK a JNK inBMM (obr. 4A) a RAW264.7 (obr. 4B). Acteosidepreventoval tato zvýšení p-p38, p-ERK a p-JNK vyvolaná RANKL. Tento výsledek byl podpořen imunometrickou analýzou, kterou předúprava s 10 mMakteosidvýznamně inhiboval hladiny fosforylovaných MAPK v těchto makrofágech (obr. 4C). Léčba RANKL zvýšila vazbu NF-kB na DNA, zatímco akteosid inhiboval AKTIVACI VAZBY NF-kB-DNA indukovanou RANKL (obr. 5A). Tato inhibice byla výraznější u BMM než u buněk RAW264.7. Akteosid také snížil RANKL-stimulovanou p65 a IkBa fosforylaci v BMM a RAW264.7 buňkách (obr. 5B a C). Přidání 10 mMacteosid téměř úplně inhibovalo jak degradaci, tak aktivaci IkBa v BMM (obr. 5B). Aby se dále potvrdilo, že aktivace NFkB se podílí na působení akteosidu, byly konstrukty promotor-luciferázy kB přechodně transfekovány do RAW264.7 buněk. Buňky inkubované se 100 ng/ml RANKL měly 3krát vyšší aktivitu promotoru kB, která byla významně oslabena akteosidem 10 mM (obr. 5D).
Akteosid potlačuje produkci zánětlivých cytokinů a expresi TNF-a, c-Fos a NFATc1in RANKL-stimulovaných makrofágů
TNF-a, IL-1b a IL-6 jsou důležité při tvorbě a funkci osteoklastů, která je zprostředkována NF-kB signalizací makrofágů stimulovaných RANKL. RANKL stimuloval produkci těchto cytokinů a tato produkce byla výrazně snížena o 10 mMakteosidpředúprava v BMM (obr. 6A). Podobně akteosid zeslabil RANKL indukovanou produkci cytokinů, s výjimkou IL-6, v makrofágech RAW264.7 (obr. S3). Abychom porozuměli molekulárním mechanismům působení akteosidů při osteoklastogenezi, dále jsme zkoumali účinek akteosidu na expresi TNF-a, c-Fos a NFATc1. RANKL zvýšil expresi mRNA těchto faktorů v buňkách BMM a RAW264.7 (obr. 6B a C). Předúprava akteosidem o objemu 10 mM významně inhibovala expresi těchto faktorů indukovanou RANKL u obou
BMM a RAW264.7 buňky. Předúprava akteosidy také silně snížila hladiny proteinů c-Fos a NFATc1 v RANKL stimulovaných BMM (obr. 6D). Tyto výsledky naznačují, že akteosid dolů reguluje RANKL indukující mediátory tvorby osteoklastů na úrovni genů a proteinů.
Akteosid snižuje intracelulární generování ROS v BMM způsobem závislým na dávceVzhledem k tomu, že je známo, že intracelulární produkce ROS koreluje s osteoklastogenezí stimulovanou RANKL, zkoumali jsme, zda akteosid inhibuje produkci ROS během diferenciace osteoklastů zprostředkované RANKL pomocí barviva propustného pro buňky, citlivého na oxidaci, DCFH-DA. Analýza průtokové cytometrie ukázala, že průměrný fluorescenční signál specifický pro DWR u BMM byl po stimulaci pomocíRANKL zjevně posunut doprava ve srovnání s neléčenými kontrolními buňkami (obr. 7A). Tento posun byl podobný případu, kdy makrofágy RAW264.7 byly pozorovány po stimulaci RANKL (údaje nejsou uvedeny). Léčba BMM s akteosidem snížila intenzitu signálu DCF způsobem závislým na dávce. Předúprava akteosidem o objemu 10 mM téměř úplně snížila hladiny intracelulární roSprodukované během diferenciace osteoklastů na neléčené kontrolní úrovně (obr. 7B).
Perorální podání akteosidů inhibuje změnu osteoporotických biochemických markerů a úbytek kostní hmoty u ovariektomizovaných myší
Abychom prozkoumali vliv akteosidu na úbytek kostní hmoty, připravili jsme osteoporotický zvířecí model ovariektomií. Během experimentálního období byl významný rozdíl v tělesné hmotnosti mezi přípravkem OVX a Shammice (údaje nejsou uvedeny). Skupina měla významně vyšší sérové hladiny IL-1b a IL-6 než skupina Sham (obr. 8). Zvýšení těchto zánětlivých cytokinů vyvolané ovariektomií bylo oslabeno perorálním podáním akteosidů (AC skupina). Sérové hladiny markerů kostního obratu, jako jsou ALP, vápník, TRAP5b a OC, byly významně zvýšeny ve skupině léčené přípravkem OVX. Z těchto osteoporotických markerů byly zvýšené hladiny vápníku, TRAP5b a OC u myší OVX zjevně inhibovány léčbou akteosidy, zatímco sérová hladina ALP se léčbou nezměnila. Průměrné maximální lomové zatížení středu pravého femorálního hřídele bylo ve skupině OVX významně nižší než ve skupině Sham (obr. 9A). Léčba akteosidem zvýšila maximální zálohu zlomeniny na zálohu skupiny Sham. Když byla kortikální kost stehenní kosti pitvána a pozorována optickou mikroskopií, osteoporotické rysy zobrazené ve skupině OVX u AC myší téměř úplně zmizely (obr. 9B). Pro ověření účinku akteosidu na model osteoporózy indukované OVX byly pomocí mikro-CT analyzovány BMD a kostní morfologické parametry v trabekulu lehké proximální stehenní kosti. Jak je znázorněno na obr. 9C, u myší OVX byla zjištěna změna femorální trabekulární architektury, zatímco tato změna byla snížena léčbou akteosidem. Výsledky analýzy mikro-CT ukázaly, že BMD, měřítko pevnosti kostí, bylo u OVXmice dramaticky sníženo (obr. 9D). Ve srovnání se skupinou Sham vykazovaly myši OVX také významné změny v BV/TV, Tb. Sp a Tb. N, ale ne v Tb.Th. Perorální akteosidová léčba myší OVX významně zabránila změně BMD, stejně jako BV/TV a Tb.N.
Akteosid neovlivňuje osteoblasogenezi v buňkách BoneMarrow
Úloha akteosidů na osteoblastické diferenciaci byla dále zkoumána pomocí buněk kostní dřeně. Jak je znázorněno na obr. 10A, léčba DAG zvýšila počet alizarinem červeně zbarvených buněk a tento počet se nezměnil o 10 mM akteosidovou předúpravou. Množství přítomného barviva naznačovalo, že kombinovaná léčba akteosidem a DAG nezměnila mineralizaci (obr. 10B). Podobně zvýšení intracelulárního obsahu vápníku vyvolané DAG (obr. 10C) a hladin mRNA (obr. 10D) kostních specifických markerů, jako jsou Runx2, osterix, BSP a OC, nebylo ovlivněno předběžnou léčbouakteosid.