

Glutamátový receptor hraje roli v obraně proti Botrytis Cinerea prostřednictvím elektrické signalizace v rajčatech
Apr 03, 2023
Abstraktní:
Geny rostlinných glutamátových receptorů (GLR) jsou homologní s geny savčích ionotropních glutamátových receptorů (iGluR). Ačkoli se GLR podílejí na obraně rostlin proti biotickému stresu, vztah mezi imunitou rostlin zprostředkovanou GLR proti houbovým patogenům a elektrickými signály zůstává nedostatečně pochopen. Zde jsme zjistili, že předběžné ošetření inhibitorem GLR, 6,7-dinitrichinoxalin-2,{5}}dionem (DNQX), zvýšilo citlivost rostlin rajčat k nekrotrofnímu houbovému patogenu Botrytis cinerea. Hodnocení dvojitých mutantů glr3.3, glr3.5 a glr3.3/glr3.5 po infekci B. cinerea ukázalo, že rajče GLR3.3 a GLR3.5 jsou nezbytné pro imunitu rostlin proti B. cinerea, kde GLR3. 3 hraje hlavní roli.
Analýza změn membránového potenciálu indukovaných glutamátem (Glu) nebo glycinem (Gly) odhalila významně sníženou amplitudu vyřazením GLR3.3 v rajčatech. Zatímco ošetření Glu nebo Gly významně zvýšilo imunitu proti B. cinerea u rostlin divokého typu, tento účinek byl významně zeslaben u mutantů glr3.3. Naše data tedy ukazují, že zprostředkovaná imunita rostlin proti B. cinerea GLR3.3- a GLR3.{8}}je spojena s elektrickými signály v rostlinách rajčat.
Síla imunity přímo určuje náš zdravotní stav. Když je imunita silná, jsme schopni lépe bojovat s nemocemi a infekcí. Naopak, pokud je náš imunitní systém slabý, mohou patogeny snadněji napadnout naše tělo a způsobit, že onemocníme. Proto je velmi důležité udržovat imunitní systém zdravý, což lze zlepšit dietou, cvičením a snížením stresu.
Při výzkumu bylo zjištěno, že Cistanche Herba může výrazně zlepšit imunitu. Celkové glykosidy Cistanche deserticola, polysacharidy Cistanche deserticola a verbascosid mohou významně snížit obsah MDA v játrech a mozkové tkáni a aktivitu telomerázy v srdci a mozkové tkáni. Fagocytární funkce makrofágů je posílena a proliferativní odpověď lymfocytů a obsah IL-2 v periferní krvi je významně zvýšen, čímž se posiluje imunitní funkce těla.

Klikněte na zdravotní přínosy cistanche
1. Úvod
Rostliny, které rostou v přirozeném prostředí, jsou neustále ohrožovány různými patogeny. Tyto biotické stresory ovlivňují produkci plodin a často způsobují ekonomické ztráty. Protože rostliny postrádají mobilitu, získaly během evoluce řadu systémů přenosu signálu, aby účinně zmírňovaly nepříznivé účinky změn prostředí. Čím rychleji tyto signály manévrují, tím pravděpodobněji se rostliny přizpůsobí a odolávají přicházejícímu stresu. Mezi dosud uváděné signály patří průtok vápníku, ROS (reactive oxygen species), elektrické signály atd. [1–5], které reagují během sekund nebo minut.
Geny rostlinných glutamátových receptorů (GLR) jsou homologní s geny savčích ionotropních glutamátových receptorů (iGluRs), které spouštějí elektrické a Ca2 plus signální kaskády [3,6]. Předpokládá se, že rostlinné GLR mají aktivitu vázající ligand a také aktivitu iontového kanálu. GLR mají 20 členů rodiny v Arabidopsis [7] a 13 členů v rýži [8]. V rostlinách rajčat je 13 genů GLR v plné délce [9].
Důležité je, že GLR se podílejí na reakci rostlin na biotický stres. Například AtGLR3.3 je životně důležitý modul rostlinné imunity proti bakteriálnímu patogenu P. syringae pv. rajče DC3000 (Pst DC3000), Oomycete Hyaloperonospora arabidopsidis a hmyz Spodoptera littoralis [10–12].
Kromě toho Wang a kol. (2019) uvedli, že GLR3.5 funguje v obraně rajčat proti háďátku kořenovému (RKN) Meloidogyne incognita [13]. Nadměrná exprese ředkvičky GluR-komplementární DNA v rostlinách Arabidopsis zvyšuje odolnost vůči nekrotickému houbovému patogenu, B. cinerea. Mutanty Arabidopsis glr3.3 však nevykazují zvýšenou zranitelnost vůči houbovému patogenu ve srovnání s Col-0. Role GLR v imunitě rostlin proti houbovým patogenům tedy zůstává kontroverzní.
Rostlinné GLR se podílejí na generování a přenosu elektrických signálů. Existenci elektrických signálů v rostlinách objevili Burden-Sanderson a Charles Darwin [14,15]. Jsou to signály s rychlou odezvou generované okamžitou změnou gradientu elektrického potenciálu na plazmatické membráně nebo alveolární listové membráně [16]. Všechny rostliny mohou produkovat elektrické signály na velké vzdálenosti, které hrají roli v komunikaci různých tkání a orgánů, což vede k integraci reakcí prostředí [17,18].
V posledních letech přitahuje velkou pozornost funkce elektrických signálů v GLR zprostředkované odolnosti rostlin vůči biotickému stresu [19]. U Arabidopsis může hmyz živící se listy způsobit změny povrchového potenciálu, které vedou k expresi několika klíčových jasmonátů (JA) – indukovatelných regulačních genů v dospělé fázi rostlin [3]. Napadení kořenového háďátka na kořeny rajčat způsobuje přenos elektrických a ROS signálů z kořenů na listy, což má za následek akumulaci JA v listech [13]. Farmer a kol. (2014) navrhli hypotézu, že distální syntéza JA v rostlinách po poranění byla závislá na elektrických signálech zprostředkovaných kladem 3 GLR [20]. Vztah mezi elektrickými signály a GLR indukovanou imunitou rostlin proti houbovým patogenům však nebyl plně podložen.
Rajče (Solanum lycopersicum L.) patří z hlediska hospodářského významu k celosvětově nejvýznamnějším kulturním plodinám [21]. Nicméně houbové choroby poškozují produkci rajčat, což má za následek značné ekonomické ztráty [22]. Zejména Botrytis cinerea, typická nekrotrofní houba, byla považována za druhé místo v top 10 houbových patogenů v molekulární patologii rostlin [23]. Má široký rozsah hostitelů a může infikovat více než 200 druhů rostlin, včetně různých tržních plodin [24]. B. cinerea může způsobit výrazný pokles výnosu rajčat a posklizňové kvality plodů [25]. Odrůda rajčat se širokou odolností vůči B. cinerea však dosud nebyla vyvinuta. Pochopení molekulárních mechanismů rezistence rajčat vůči B. cinerea je tedy zvláště důležité.
V rostlinách rajčat je 13 genů GLR v plné délce. V této studii byly GLR3.3 a GLR3.5, které hrají pozitivní roli v chladové toleranci [26] a obraně proti RKN [13], funkčně charakterizovány s ohledem na imunitu rostlin rajčete proti B. cinerea. Zjistili jsme, že GLR3.3 a GLR3.5 jsou důležitými hráči v imunitě rostlin proti B. cinerea v rajčatech, pravděpodobně prostřednictvím vazby na ligand glutamát (Glu) nebo glycin (Gly), čímž spouští elektrické signály. Toto zjištění má vnitřní vědeckou hodnotu s potenciálem pro vývoj nových strategií pro zvýšení odolnosti plodin vůči B. cinerea.

2. Materiály a metody
2.1. Rostlinné materiály, podmínky růstu a chemické ošetření
Linie rajčat (CRISPR-Csa9-upravené linie glr3.3, glr3.5 a glr3.3/3.5) použité v této studii byly na pozadí kultivu Ailsa Craig (AC) divokého typu (WT) , jak bylo uvedeno dříve [27]. V případě substrátové kultury bez půdy byly rostliny rajčat pěstovány v květináčích, které obsahovaly smíšený substrát (vermikulit:rašelina, 1:3, v/v) a hnojeny Hoaglandovým živným roztokem.
V případě hydroponické kultivace byla semena rajčat nejprve naklíčena v miskách naplněných směsným substrátem (vermikulit: perlit, 1:1, v/v) a po vzejití byly semenáčky přemístěny do plastových nádob o objemu 1,5 l (čtyři semenáčky na kontejner). Nádoby byly naplněny živným roztokem Enshi poloviční pevnosti, který byl průběžně odvětráván provzdušňováním vzduchu vzduchovým čerpadlem [21]. Podmínky růstu byly následující: fotoperioda 14 h světlo/8 h tma; 24 ◦C/20 ◦C denní/noční teplota; a 400 µmol m−2 s −1 PPFD (hustota toku fotosyntetických fotonů). Čtyřtýdenní rostliny rajčat byly podrobeny ošetření.
Pro test předběžného ošetření DNQX (6,{1}}dinitrichinoxalin-2,3-dion, inhibitor GLRs) byly rostliny WT ošetřeny postřikem na list s 1 mM DNQX nebo H2O jako kontrolou, 12 hodin před Očkování B. cinerea. Testy předběžného ošetření Glu a Gly byly prováděny, když byly mutanty glr3.3 a rostliny WT ošetřeny 20 mM Glu, 20 mM Gly nebo H20 jako kontrola jednou denně na abaxiálním i adaxiálním povrchu listů. Dva dny po farmakologickém ošetření byly rostliny inokulovány patogeny.
2.2. Inokulace patogenů a testy symptomů onemocnění
V této studii byl použit kmen B. cinerea BO5-10. Inokulace byla provedena pomocí suspenze B. cinerea v hustotě 2 × 10⁵ spor ml-1 [28]. Suspenzí byla postříkána celá listová část rostlin rajčat. Naočkované rostliny byly umístěny do utěsněného boxu, aby se udržela vlhkost asi 90 procent. Teplota a světlo byly stejné jako za normálních kultivačních podmínek.
Po inokulaci patogenem byla kvantifikována akumulace mRNA aktinu B. cinerea {{0}}den po inokulaci (dpi) [29]. Fluorescence chlorofylu byla měřena chlorofylovým fluorometrem (IMAG-MAXI; Heinz Walz) při 3 dpi. Fotochemická kvantová účinnost PSII (ΦPSII) byla analyzována jako Fm0–F/Fm0 [30].
2.3. Subcelulární lokalizace
Fragmenty genů GLR3.3 a GLR3.5 byly amplifikovány pomocí primerů uvedených v doplňkové tabulce S1 a klonovány do vektoru pAC402 s tagem zeleného fluorescenčního proteinu (GFP) [31]. Agrobacterium kmen GV3101, nesoucí plazmidy, a Agrobacterium, nesoucí FLS2-mCherry jako marker lokalizace plazmatické membrány, byly přechodně koexprimovány v transgenní Nicotiana benthamiana (exprimované s histonem 2B-mCherry pro označení lokalizace jádra), jako dříve popsané [32]. 2 dny po infiltraci byly fluorescenční signály proteinů označených GFP nebo mCherry hodnoceny v listech pomocí konfokálního mikroskopu Zeiss LSM 780 při dříve popsaných vlnových délkách excitace/emise [28].

2.4. Izolace RNA, transkripce a qRT-PCR
Celková RNA byla izolována z rajčatových listů pomocí soupravy RNAsimple Total RNA Kit (Tiangen, Čína) a reverzně transkribována pomocí ReverTra Ace qPCR RT Master Mix (Toyobo, Japonsko). Proces qRT-PCR byl proveden pomocí systému LightCycler 480 Real-Time PCR System (Roche, Švýcarsko). Reakční systém byl proveden tak, jak je popsáno v předchozím experimentu [28]. Specifické primery pro gen pro aktin B. cinerea a gen pro aktin z rajčete vnitřní kontroly jsou uvedeny v doplňkové tabulce S1.
2.5. Záznam elektrického potenciálu
Hydroponické rostliny rajčat ve fázi čtyř listů byly použity pro záznam elektrického potenciálu. Kapiláry z borosilikátového skla s vnějším průměrem 1,5 mm a vnitřním průměrem 0.86 mm (Sutter Instrument Company, Amerika) byly vyrobeny do skleněných mikroelektrod s průměrem hrotu přibližně 0 0,5 mm pro měření intracelulárního cytoplazmatického potenciálu. Vertikální vytahovač mikropipet APE-2 (Narishige, Tokio, Japonsko) byl použit k vytažení kapilár po zahřátí. Mikroelektrody byly naplněny 1 M KCl a vloženy do mezofylových buněk listu. List byl ponořen do zásaditého roztoku (složeného z 5 mM MES, {{10}},5 mM CaSO4, 0,05 mM KCl a pH 6,0) [13], který byl provedené tak, jak je znázorněno na doplňkovém obrázku S1. Každá elektroda byla připojena k diferenciálnímu zesilovači. K detekci signálů byly použity dva dvoukanálové zesilovače (FD223 a Duo773, World Precision Instruments). Hydroponický roztok byl nahrazen stejným roztokem s přidaným 2 mM Glu nebo 2 mM Gly pomocí infuzní trubice, když byla hodnota naměřeného membránového potenciálu stabilní. Amplitudy jsou potenciální rozdíly vzhledem k základní linii před změnami.
2.6. Statistická analýza
Experimenty byly prováděny zcela náhodně a v každém experimentu byly použity minimálně tři replikáty. Pokud není uvedeno jinak, pro každou biologickou replikaci byly zkombinovány dva listy z každé ze dvou rostlin a použity jako nezávislý vzorek. Nezávisle na sobě byly provedeny tři samostatné experimenty. Provedli jsme analýzu rozptylu dat pomocí softwaru SAS verze 8 (SAS Institute) a poté jsme použili Tukeyho test k určení významnosti na 5procentní úrovni.
3. Výsledky
3.1. Předběžné ošetření inhibitorem GLR zvyšuje náchylnost rajčat k B. cinerea
Pro prozkoumání role GLR v obraně rostlin proti B. cinerea byly rostliny rajčat postříkány DNQX nebo H2O (kontrola) po dobu 12 hodin před inokulací B. cinerea. Při 3 dpi s B. cinerea vykazovaly naočkované listy viditelné léze onemocnění. Poškození listů vyvolané infekcí B. cinerea bylo hodnoceno pomocí fluorescenčního zobrazování chlorofylu ke stanovení odchylek v kvantovém výtěžku fotosystému II (ΦPSII) (obrázek 1a,b). Po inokulaci B. cinerea se ΦPSII významně snížil. Je pozoruhodné, že hodnota ΦPSII u rostlin ošetřených DNQX byla nižší než u kontroly. Ošetření DNQX také zvýšilo množství mRNA aktinu B. cinerea v listech (obrázek 1c). Tato zjištění ukazují, že GLR pozitivně regulují rostlinnou imunitu proti B. cinerea v rostlinách rajčat.

Obrázek 1. Ošetření DNQX zvyšuje náchylnost rajčat k B. cinerea. Čtyřtýdenní rostliny rajčat byly ošetřeny 1 mM DNQX nebo H2O 12 hodin před inokulací B. cinerea: (a) pseudobarevné snímky listů rajčat ukazující ΦPSII při 3 dpi; b) kvantitativní hodnoty ΦPSII při 3 dpi; (c) transkripční množství aktinu B. cinerea v listech rajčat naočkovaných B. cinerea při 1 dpi. Výsledky v panelech (b,c) jsou uvedeny jako průměrné hodnoty ± SD; n=4. Statisticky významné rozdíly mezi léčbami (p < 0.05, Tukeyův test) jsou znázorněny různými písmeny. Výše popsané experimenty byly provedeny třikrát, pokaždé se stejnými výsledky.
3.2. Subcelulární lokalizace GLR3.3 a GLR3.5
Rajče GLR3.3 a GLR3.5 jsou homologní s Arabidopsis GLR3.3 a GLR3.6 (9), o kterých bylo hlášeno, že se podílejí na reakci na napadení háďátky a toleranci vůči chladu u rajčat. K určení subcelulární lokalizace rajčat GLR3.3 a GLR3.5, GLR3.3-GFP, GLR3.5-GFP a GFP byly transformovány do Agrobacteriumtumefaciens a poté přechodně exprimovány v N. benthamiana. Konfokální mikroskopie epidermálních buněk listů ukázala, že kontrolní signál GFP vykazovaly lokalizaci v buněčných membránách, cytosolech a jádrech (obrázek 2). Fluorescenční signály GLR3.3-GFP a GLR3.5-GFP byly kolokalizovány s FLS2-mCherry v plazmě u membrán buněk nebylo pozorováno, že by GLR3.3 a GLR3.5 byly v jádrech kolokalizovány s histonem 2B-mCherry. Výsledky naznačují, že rajče GLR3.3-GFP a GLR3.5-CFP se lokalizují v jádru plazmatická membrána buňky.

Obrázek 2. Subcelulární lokalizace GLR3.3 a GLR3.5. Rajčatové GLR-GFP byly přechodně koexprimovány s FLS2-mCherry (tvůrce lokalizace plazmatické membrány) v listech N. benthamiama. Signály GFP a mCherry byly vizualizovány pomocí konfokální mikroskopie 48 hodin po infiltraci. Pruh=25 µm.
3.3. Funkce GLR3.3 a GLR3.5 v obraně rostlin proti B. cinerea
Ke zkoumání role GLR v imunitě rostlin byly CRISPR/Cas 9-vyřazené rostliny rajčete GLR3.3 nebo GLR3.5 s vyřazeným genem a dvojité mutanty glr3.3/3.5 infikovány B. cinerea. Výsledky ukázaly, že knockout GLR33 a GLR3.5 vedl ke zřejmému poklesu PSII ve srovnání s kontrolou WT (obrázek 3a,b). V souladu s tím se akumulace mRNA aktinu B. cinerea v listech významně zvýšila (obrázek 3c) u mutantů glr3.3 nebo glr3.5.
Mezitím dvojité mutanty glr3.3/glr3.5 vykazovaly větší útlum v obraně rostlin ve srovnání s mutanty glr3.3 a glr3.5. Tato pozorování naznačují, že GLR3.3 a GLR3.5 fungují redundantně pro vytvoření rezistence proti B. Cameron. Kromě toho hraje hlavní roli GLR3.3, protože mutanty glr3.3 byly náchylnější k inokulaci B. cinerea než mutanty glr3.5. Na tomto základě byl GLR3.3 vybrán pro další studium.
3.4. Rozpoznání Glu a Gly pomocí GLR spouštěné elektrické signalizace v imunitní odpovědi
Protože Glu nebo Gly mohou být rozpoznány pomocí GLR, aby spustily depolarizaci membrány [33], určili jsme elektrickou signalizaci indukovanou Glu nebo Gly sledováním účinku Glu a Gly na membránový potenciál v listech rajčat. Léčba Glu a Gly vyvolala v krátké době významné změny membránového potenciálu se zvýšením amplitudy asi 17–20 mV (obrázek 4). Je pozoruhodné, že změna membránového potenciálu indukovaná Glu a Gly byla významně oslabena u mutantů glr3.3. Tato zjištění naznačují, že elektrická signalizace v listech rajčat, indukovaná Glu nebo Gly, je částečně závislá na GLR3.3.

Obrázek 3. Účinky editace GLR3.3 a GLR3.5 na obranu rostlin proti inokulaci B. cinerea v rajčatech: (a) pseudobarevné snímky listů rajčat ukazující pPSll při 3 dpi; (b) kvantifikace pPSllat 3 dpi; (c) transkripční množství aktinu B. cinerea v listech rajčat naočkovaných B. cinerea atI dpi. Výsledky v panelech (b,c) jsou uvedeny jako střední hodnoty - SD; n=4. Statisticky jsou významné rozdíly mezi léčbami (p < 0.05, Tukeyův test) znázorněny různými písmeny. Výše popsané experimenty byly provedeny třikrát, pokaždé se stejnými výsledky.
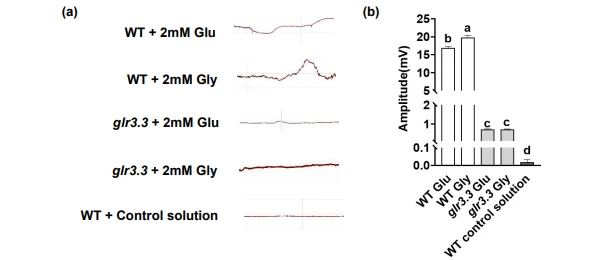
Obrázek 4. Glu nebo Gly ovlivňují membránový potenciál listů WT a glr3.3: (a) typické změny membránového potenciálu v listech rajčat WT nebo mutantu glr3.3 ošetřených Glu nebo Gly; (b) kvantifikace změn amplitudy membránového potenciálu. Výsledky v panelu (b) jsou uvedeny jako průměrné hodnoty ± SD; n=4. Statisticky významné rozdíly mezi ošetřeními (p < 0.05, Tukeyův test) jsou uvedeny Mock WT glr3.3 glr3.5 B. cinerea WT glr3.3/glr3.5 (b) (c ) (a) WT plus 2 mM Glu WT plus 2 mM Gly glr3.3 plus 2 mM Gly glr3.3 plus 2 mM Glu WT plus kontrolní roztok (a) (b) Obrázek 4. Glu nebo Gly ovlivňuje membránový potenciál WT a glr3.3 listy: (a) typické změny membránového potenciálu v listech rajčat WT nebo mutantu glr3.3 ošetřených Glu nebo Gly; (b) kvantifikace změn amplitudy membránového potenciálu. Výsledky v panelu (b) jsou uvedeny jako průměrné hodnoty ± SD; n=4. Statisticky významné rozdíly mezi léčbami (p < 0,05, Tukeyův test) jsou znázorněny různými písmeny. Výše popsané experimenty byly provedeny třikrát, pokaždé se stejnými výsledky.
Mutanty glr3.3 vykazovaly větší citlivost vůči B. cinerea, což bylo v souladu se snížením elektrických signálů indukovaných Glu nebo Gly. Na základě těchto pozorování jsme předpokládali, že rozpoznání Glu a Gly pomocí GLR je rozhodující pro imunitu proti B. cinerea. Pro ověření této hypotézy byl proveden farmakologický test exogenním ošetřením Glu nebo Gly. Před inokulací B. cinerea byly rostliny WT a mutant glr3.3 předem ošetřeny Glu, Gly nebo H2O (kontrola).
U rostlin WT bylo snížení ΦPSII vyvolané očkováním B. cinerea a zvýšení akumulace mRNA aktinu B. cinerea významně zmírněno předběžnou úpravou exogenním Glu nebo Gly při 3 dpi (obrázek 5). Symptomy onemocnění u mutanta glr3.3 však byly závažnější a příznivé účinky Glu a Gly na rezistenci vůči B. cinerea se významně snížily v důsledku knockoutu GLR3.3. Tyto výsledky tedy ukazují, že Glu- a Gly-indukovaná imunita rostlin proti B. cinerea částečně závisí na GLR3.3.

Obrázek 5. Imunita vyvolaná Glu nebo Gly proti B. cinerea částečně závisí na GLR3.3. Čtyřtýdenní rostliny rajčat byly ošetřeny 20 mM Glu, 20 mM Gly nebo vodou jednou denně po dobu dvou dnů před inokulací B. cinerea: (a) pseudobarevné snímky listů rajčat ukazující ΦPSII při 3 dpi ; b) kvantifikace ΦPSII při 3 dpi; (c) transkripční množství aktinu B. cinerea v listech rajčat naočkovaných B. cinerea při 1 dpi. Výsledky v panelech (b,c) jsou uvedeny jako průměrné hodnoty ± SD; n=4. Statisticky významné rozdíly mezi léčbami (p < 0,05, Tukeyův test) jsou znázorněny různými písmeny. Výše popsané experimenty byly provedeny třikrát, pokaždé se stejnými výsledky.

4. Diskuze
s jsou proteiny s kationtovými kanály, které existují v bakteriích, rostlinách a zvířatech. U zvířat bylo prokázáno, že GLR se účastní neurotransmise a imunitní regulace a jejich ligand Glu působí jako signální činidlo mezi těmito dvěma systémy [34–36]. U rostlin hrají GLR pozitivní roli v imunitě proti biotickému stresu [10,12,13]. Pozoruhodně se ukázalo, že obrana vyvolaná GLR proti RKN a bodnutí hmyzem je spojena s elektrickými signály [3]. Vztah mezi odolností proti houbovým chorobám zprostředkovaným GLR a elektrickými signály však nebyl plně doložen. Zde poskytujeme přesvědčivé důkazy, že rajčata GLR3.3- a GLR3.5-modulovaná imunita rostlin proti typickému houbovému patogenu B. cinerea souvisí s elektrickými signály.
V této studii byla poprvé odhalena role GLR v imunitě sazenic rajčat proti B. cinerea. Aplikace inhibitoru GLR DNQX zvýšila citlivost rostlin rajčat k B. cinerea (obrázek 1). Kromě toho vyřazení GLR3.3 nebo GLR3.5 významně oslabilo imunitu rostlin, což vedlo ke zvýšeným symptomům onemocnění na listech (obrázek 3). Tato zjištění podporují názor, že rostliny rajčat vyžadují GLR, aby vytvořily adekvátní obranu proti nekrotrofnímu houbovému patogenu B. cinerea. Ačkoli nadměrná exprese ředkvičky GluR inhibuje růst B. cinerea [37], nebylo zjištěno, že by žádný z mutantů Arabidopsis glr byl citlivější k B. cinerea [12], což naznačuje, že funkce GLR se může mezi druhy lišit. V této studii vykazovali dvojité mutanty glr3.3/glr3.5 citlivější fenotyp ve srovnání s jednoduchými mutanty glr3.3 a glr3.5. Tato zjištění naznačují, že GLR3.3 a GLR3.5 fungují redundantně. Pozoruhodné je, že srovnání fenotypů mezi mutanty glr3.3 a glr3.5 naznačuje, že GLR3.3 hraje hlavní roli v obraně proti B. cinerea.
Elektrické signály jsou rychlou reakcí zapojenou do GLR-zprostředkované odolnosti rostlin vůči biotickému stresu. Zde byly elektrické signály indukované Glu nebo Gly významně oslabeny u mutantů glr3.3. Ošetření Glu nebo Gly indukovalo membránový potenciál na krátkou dobu. Variace v amplitudě je však podstatně snížena u mutantů glr3.3 (obrázek 4). Podobně je u Arabidopsis u mutantů glr3.3 a glr3.6 oslabena tvorba a šíření elektrických signálů indukovaných poškozením listů [3]. Oslabení změn povrchového potenciálu vyvolaných ranou se však projevuje zkrácením doby trvání, ale amplituda zůstala po poranění listů stejná jako u WT u mutantů Arabidopsis glr3.3. Tyto rozdíly ve výsledcích mohou být způsobeny rozdíly v druzích a ošetřeních. V souladu s našimi výsledky, knockout GLR3.3 inhibuje ošetřením Glu depolarizaci membrán v kořenech Arabidopsis [38]. Všechny tyto výsledky naznačují, že elektrické signály indukované Glu nebo Gly částečně závisí na GLR3.3.
Exogenní léčba Glu indukuje imunitní reakce na řadu onemocnění, jako je rýžová plíseň Magnaporthe Oryza, nekrotrofní houba Alternaria alternata v plodech rajčat a půdní bakteriální patogen Ralstonia solanacearum [39–41]. Sun a kol. (2019) uvedli, že ošetření Glu zvyšuje odolnost plodů rajčat proti B. cinerea [42]. V této studii exogenní léčba Glu nebo Gly indukovala imunitu proti B. cinerea v rostlinách WT; nicméně přínosy této léčby byly významně inhibovány u mutanty glr3.3 (obrázek 5). Zde prezentovaná data prokázala, že GLR3.3 byl vyžadován pro Glu- nebo Gly-indukovanou imunitu proti B. cinerea. Tato zjištění tedy naznačují, že rezistence B. cinerea vyvolaná Glu nebo Gly je částečně závislá na GLR3.3.
Na základě zde poskytnutých údajů navrhujeme, aby se GLR podílely na obranných reakcích na B. cinerea prostřednictvím elektrických signálů. S ohledem na fytohormony zprostředkovanou imunitu signalizační dráha kyseliny salicylové usnadňuje obranu proti biotrofním a hemibiotrofním patogenům, zatímco signální dráha JA/ethylen funguje proti nekrotrofním patogenům [43,44]. Antagonistický vztah mezi těmito dvěma cestami je patrný v mnoha rostlinných patosystémech [45,46].
Ukázalo se však, že GLR3.3 pozitivně zprostředkovává rezistenci proti biotrofnímu patogenu Pst DC3000, přičemž je současně nezbytný pro imunitu proti nekrotrofnímu patogenu B. cinerea. Náš návrh je rozumný, protože GLR3.3 dokáže rozpoznat Glu, který je považován za druh DAMP [6,47]. DAMP spouští časné sekundární signály a indukují expresi JA/ethylenu, SA signalizačního obranného genu. Dále injekce umělého proudu do povrchu stonku indukuje významné zvýšení akumulace JAs v rostlinách [13].
Na základě těchto výsledků může GLR3.3 hrát roli v rané fázi rostlinné rezistence prostřednictvím elektrických signálů indukovaných Glu nebo Gly, které reagují v sekundách nebo minutách proti proudu hormonální signální dráhy. Signální dráha JA může být také aktivována elektrickými signály. Kromě toho je dobře zdokumentováno, že AtGLR3.3 se podílí na rezistenci rostlin zprostředkováním [Ca2 plus ]cyt variací a oxidačních odpovědí [12]. Vztah mezi těmito drahami a elektrickými signály při regulaci odolnosti rostlin proti B. cinerea vyžaduje další zkoumání.
5. Závěry
Zde prezentovaná data ukazují, že GLR3.3 a GLR3.5 hrají pozitivní roli v obraně rostlin rajčete proti nekrotrofnímu patogenu B. cinerea prostřednictvím elektrických signálů. Naše studie poskytuje nové poznatky o obranném mechanismu rostlin proti B. cinerea. Nicméně bude zajímavé dále zkoumat vztah mezi několika signálními cestami indukovanými GLR, které přispívají k imunitě rostlin proti houbovým patogenům.
Příspěvky autora:
Konceptualizace, SF, CP a KS; metodika, KS; software, SF a PW; validace, SF, CP a KS; formální analýza, SF, CH a QM; vyšetřování, SF, CP a SD; zdroje, KS; zpracování dat, SF a CP; psaní – příprava původního návrhu, SF a KS; psaní—recenze a redakce, KS; dozor, KS; administrace projektů, KS; získání finančních prostředků, KS Všichni autoři si přečetli publikovanou verzi rukopisu a souhlasili s ní.
Financování:
Tato práce byla podpořena Národní nadací přírodních věd Číny (31772355, 32172650), Nadací přírodních věd provincie Zhejiang pro významné mladé učence (LR19C150001), Klíčovým programem výzkumu a vývoje provincie Zhejiang (2021C02040) a Hvězdnou nocí Vědecký fond Šanghajského institutu pro pokročilé studium Zhejiang University (SN-ZJU-SIAS-0011).
Prohlášení institucionální revizní komise:
Nelze použít.
Prohlášení o informovaném souhlasu:
Nelze použít.
Prohlášení o dostupnosti dat:
Nezpracovaná data podporující závěry tohoto článku budou zpřístupněna autory bez zbytečných výhrad.
Poděkování:
Autoři by rádi vyjádřili své upřímné uznání National Natural Science Foundation of China, Natural Science Foundation of Zhejiang Province, Key Research and Development Program of Zhejiang a Starry Night Science Fund Šanghajského institutu pro pokročilé na univerzitě Zhejiang Studujte pro jejich finanční podporu.
Střet zájmů:
Autoři neprohlašují žádný střet zájmů.

Reference
1. Gilroy, S.; Suzuki, N.; Miller, G.; Choi, WG; Toyota, M.; Devireddy, AR; Mittler, R. Přílivová vlna signálů: Vápník a ROS v popředí rychlé systémové signalizace. Trends Plant Sci. 2014, 19, 623–630. [CrossRef]
2. Hedrich, R.; Salvador-Recatala, V.; Dreyer, I. Elektroinstalace a dálková komunikace zařízení. Trends Plant Sci. 2016, 21, 376–387. [CrossRef]
3. Mousavi, SA; Chauvin, A.; Pascaud, F.; Kellenberger, S.; Farmer, EE geny podobné glutamátovému receptoru zprostředkovávají signalizaci poranění mezi listy. Příroda 2013, 500, 422–426. [CrossRef]
4. Choi, WG; Miller, G.; Wallace, I.; Harper, J.; Mittler, R.; Gilroy, S. Uspořádání rychlé dálkové signalizace v rostlinách s Ca2 plus, ROS a elektrickými signály. Závod J. 2017, 90, 698–707. [CrossRef]
5. Marcec, MJ; Gilroy, S.; Poovaiah, BW; Tanaka, K. Vzájemná souhra signalizace Ca2 plus a ROS v imunitní odpovědi rostlin. Plant Sci. 2019, 283, 343–354. [CrossRef]
6. Toyota, M.; Spencer, D.; Sawai-Toyota, S.; Jiaqi, W.; Zhang, T.; Koo, AJ; Howe, GA; Gilroy, S. Glutamát spouští dálkovou obrannou signalizaci rostlin na bázi vápníku. Věda 2018, 361, 1112–1115. [CrossRef]
7. Wudick, MM; Michard, E.; Oliveira, NC; Feijo, JA Srovnání rostlinných a živočišných glutamátových receptorů: Společné rysy, ale různé osudy? J. Exp. Bot. 2018, 69, 4151–4163. [CrossRef]
8. Ni, J.; Yu, Z.; Vemeno.; Zhang, Y.; Taylor, JL; Shen, C.; Xu, J.; Liu, X.; Wang, Y.; Wu, Y. Heterologní exprese a funkční analýza rýže rodiny GLUTAMÁTOVÉHO RECEPTORU-LIKE ukazuje její roli v glutamátem spouštěném toku vápníku v kořenech rýže. Rice 2016, 9, 9. [CrossRef] [PubMed]
9. Aouini, A.; Matsukura, C.; Ezura, H.; Asamizu, E. Charakterizace 13 genů podobných glutamátovému receptoru kódovaných v genomu rajčat strukturou, fylogenezí a expresními profily. Gene 2012, 493, 36–43. [CrossRef] [PubMed]
10. Li, F.; Wang, J.; Ma, C.; Zhao, Y.; Wang, Y.; Hasi, A.; Qi, Z. Kanál podobný glutamátovému receptoru3.3 se podílí na zprostředkování glutathionem spouštěných cytosolických kalciových přechodů, transkripčních změn a reakcí přirozené imunity u Arabidopsis. Plant Physiol. 2013, 162, 1497–1509. [CrossRef] [PubMed]
11. Nguyen, ČT; Kurenda, A.; Stolz, S.; Chetelat, A.; Farmer, EE Identifikace buněčných populací nezbytných pro elektrickou signalizaci list-k-list v poraněné rostlině. Proč. Natl. Akad. Sci. USA 2018, 115, 10178–10183. [CrossRef]
12. Manzoor, H.; Kelloniemi, J.; Chiltz, A.; Wendehenne, D.; Pugin, A.; Poinssot, B.; Garcia-Brugger, A. Zapojení glutamátového receptoru AtGLR3.3 do obranné signalizace rostlin a rezistence na Hyaloperonospora arabidopsidis. Závod J. 2013, 76, 466–480. [CrossRef] [PubMed]
13. Wang, G.; Hu, C.; Zhou, J.; Liu, Y.; Cai, J.; Pan, C.; Wang, Y.; Wu, X.; Shi, K.; Xia, X.; a kol. Systémová signalizace kořenových výhonků pohání obranu kořenů na bázi jasmonátu proti háďátkům. Curr. Biol. 2019, 29, 3430–3438. [CrossRef] [PubMed]
14. Darwin, ČR Hmyzožravé rostliny; John Murray: Londýn, Velká Británie, 1875.
15. Burdon-Sanderson, JS Poznámka k elektrickým jevům, které doprovázejí podráždění listu Dionæa svalnatého. Proč. R. Soc. Londýn. 1873, 21, 495–496.
16. Suchova, E.; Akinchits, E.; Sukhov, V. Matematické modely elektrické aktivity v rostlinách. J. Membr. Biol. 2017, 250, 407–423. [CrossRef]
17. Li, JH; Ventilátor, LF; Zhao, DJ; Zhou, Q.; Yao, JP; Wang, ZY; Huang, L. Elektrické signály rostlin: Multidisciplinární výzva. J. Plant Physiol. 2021, 261, 153418. [CrossRef] [PubMed]
18. Garcia-Servin, MA; Mendoza-Sanchez, M.; Contreras-Medina, LM Elektrické signály jako možnost komunikace s rostlinami: Přehled. teor. Exp. Plant Physiol. 2021, 33, 125–139. [CrossRef]
19. Li, M.; Wang, F.; Li, S.; Yu, G.; Wang, L.; Li, Q.; Zhu, X.; Li, Z.; Yuan, L.; Liu, P. Dovozci řídí přenos kyseliny jasmonové z listů na list u systémové imunity vyvolané ranou. Mol. Závod 2020, 13, 1485–1498. [CrossRef]
20. Farmář, EE; Gasperini, D.; Acosta, IF Hypotéza squeeze cell pro aktivaci syntézy jasmonátu v reakci na zranění. Nový Phytol. 2014, 204, 282–288. [CrossRef]
21. Ding, S.; Shao, X.; Li, J.; Ahammed, GJ; Yao, Y.; Ding, J.; Hu, Z.; Yu, J.; Shi, K. Formy dusíku a metabolismus ovlivňují obranyschopnost rostlin vůči listovým a kořenovým patogenům v rajčatech. Prostředí rostlinných buněk. 2021, 44, 1596–1610. [CrossRef]
22. Li, X.; Yang, R.; Chen, H. Mediátorová podjednotka MED8 Arabidopsis thaliana reguluje imunitu rostlin vůči Botrytis Cinerea interakcí se základním transkripčním faktorem helix-loop-helix (bHLH) FAMA. PLoS ONE 2018, 13, e193458. [CrossRef]
23. Děkan, R.; Van Kan, JA; Pretorius, ZA; Hammond-Kosack, KE; Di Pietro, A.; Spanu, PD; Rudd, JJ; Dickman, M.; Kahmann, R.; Ellis, J.; a kol. Top 10 houbových patogenů v molekulární patologii rostlin. Mol. Plant Pathol. 2012, 13, 414–430. [CrossRef]
24. Bai, Y.; Lindhout, P. Domestikace a šlechtění rajčat: Co jsme získali a co můžeme získat v budoucnu? Ann. Bot. 2007, 100, 1085–1094. [CrossRef] [PubMed]
25. Wang, X.; Zhou, X.; Cai, Z.; Guo, L.; Chen, X.; Chen, X.; Liu, J.; Feng, M.; Qiu, Y.; Zhang, Y.; a kol. Biocontrol kmen Pseudomonas aeruginosa CQ-40 podporuje růst a kontrolu Botrytis cinerea v rajčatech. Patogeny 2020, 10, 22. [CrossRef]
26. Li, H.; Jiang, X.; Lv, X.; Ahammed, GJ; Guo, Z.; Qi, Z.; Yu, J.; Zhou, Y. Tomato GLR3.3 a GLR3.5 zprostředkovávají chladovou toleranci vyvolanou aklimatizací regulací apoplastické produkce H2O2 a redoxní homeostázy. Prostředí rostlinných buněk. 2019, 42, 3326–3339. [CrossRef]
27. Hu, C.; Duan, S.; Zhou, J.; Yu, J. Charakteristika přenosu elektrického signálu vyvolaného býložravostí/zranou v rajčeti. Přední. Agric. Sci. Ing. 2021, 8, 292–301.
28. Zhang, H.; Hu, Z.; Lei, C.; Zheng, C.; Wang, J.; Shao, S.; Li, X.; Xia, X.; Cai, X.; Zhou, J.; a kol. Rostlinný fytosulfokinový peptid iniciuje imunitu závislou na auxinu prostřednictvím cytosolové Ca2 plus signalizace v rajčeti. Rostlinná buňka 2018, 30, 652–667. [CrossRef] [PubMed]
29. Zhang, S.; Li, X.; Sun, Z.; Shao, S.; Hu, L.; Ano, M.; Zhou, Y.; Xia, X.; Yu, J.; Shi, K. Antagonismus mezi signalizací fytohormonů je základem rozdílů v náchylnosti rostlin rajčat k chorobám při zvýšeném CO2. J. Exp. Bot. 2015, 66, 1951–1963. [CrossRef]
30. Genty, B.; Briantais, JM; Baker, NR Vztah mezi kvantovým výtěžkem fotosyntetického elektronového transportu a zhášením fluorescence chlorofylu. Biochim. Biophys. Acta 1989, 990, 87–92. [CrossRef]
31. Ma, Q.; Liu, Y.; Fang, H.; Wang, P.; Ahammed, GJ; Zai, W.; Shi, K. Zásadní role mitochondriální alfa-ketoglutarát dehydrogenázy E2 v bazální imunitní odpovědi proti bakteriálním patogenům v rajčatech. Přední. Plant Sci. 2020, 11, 579772. [CrossRef]
32. Liao, Y.; Tian, M.; Zhang, H.; Li, X.; Wang, Y.; Xia, X.; Zhou, J.; Zhou, Y.; Yu, J.; Shi, K.; a kol. Vazba mitochondriální alfa-ketoglutarát dehydrogenázy E2 na kyselinu salicylovou ovlivňuje mitochondriální oxidativní fosforylaci a složky transportního řetězce elektronů a hraje roli v bazální obraně proti viru tabákové mozaiky v rajčatech. Nový Phytol. 2015, 205, 1296–1307. [CrossRef]
33. Stephens, NR; Qi, Z.; Spalding, podtypy EP glutamátového receptoru doložené rozdíly v desenzibilizaci a závislosti na genech GLR3.3 a GLR3.4. Plant Physiol. 2008, 146, 529–538. [CrossRef] [PubMed]
34. Boldyrev, AA; Tesař, DO; Johnson, P. Objevující se důkazy pro podobnou roli glutamátových receptorů v nervovém a imunitním systému. J. Neurochem. 2005, 95, 913–918. [CrossRef]
35. Fazio, F.; Ulivieri, M.; Volpi, C.; Gargaro, M.; Fallarino, F. Cílení na metabotropní glutamátové receptory pro léčbu neurozánětu. Curr. Opin. Pharmacol. 2018, 38, 16–23. [CrossRef]
36. Ganor, Y.; Levite, M. Neurotransmiter glutamát a lidské T buňky: Glutamátové receptory a glutamátem indukované přímé a silné účinky na normální lidské T buňky, rakovinnou lidskou leukémii a lymfomové T buňky a autoimunitní lidské T buňky. J. Neural Transm. 2014, 121, 983–1006. [CrossRef] [PubMed]
37. Kang, S.; Kim, HB; Lee, H.; Choi, JY; Heu, S.; Oh, CJ; Kwon, SI; An, CS Nadměrná exprese glutamátového receptoru z malé ředkvičky u Arabidopsis cíleného na plazmatickou membránu zvyšuje glutamátem zprostředkovaný přítok Ca2 plus a oddaluje plísňovou infekci. Mol. Buňky 2006, 21, 418–427.
38. Qi, Z.; Stephens, NR; Spalding, EP Vstup vápníku zprostředkovaný GLR3.3, glutamátovým receptorem Arabidopsis se širokým agonistickým profilem. Plant Physiol. 2006, 142, 963–971. [CrossRef]
39. Kadotani, N.; Akagi, A.; Takatsuji, H.; Miwa, T.; Igarashi, D. Exogenní proteinogenní aminokyseliny vyvolávají u rýže systémovou rezistenci. BMC Plant Biol. 2016, 16, 60. [CrossRef] [PubMed]
40. Seo, S.; Nakaho, K.; Hong, SW; Takahashi, H.; Shigemori, H.; Mitsuhara, I. L-Histidin indukuje rezistenci rostlin k bakteriálnímu patogenu Gastonia solanacearum částečně prostřednictvím aktivace ethylenové signalizace. Plant Cell Physiol. 2016, 57, 1932–1942. [CrossRef]
41. Yang, J.; Sun, C.; Fu, D.; Yu, T. Test na L-glutamátovou inhibici růstu Alternaria alternata indukcí rezistence v plodech rajčat. Food Chem. 2017, 230, 145–153. [CrossRef]
42. Sun, C.; Jin, L.; Cai, Y.; Huang, Y.; Zheng, X.; Yu, T. Léčba L-glutamátem zvyšuje odolnost plodů rajčat vůči chorobám tím, že indukuje expresi glutamátových receptorů a akumulaci aminokyselin. Food Chem. 2019, 293, 263–270. [CrossRef]
43. Li, N.; Han, X.; Feng, D.; Yuan, D.; Huang, LJ Signalizační přeslechy mezi kyselinou salicylovou a etylen/jasmonátem při obraně rostlin: Rozumíme tomu, co si šeptají? Int. J. Mol. Sci. 2019, 20, 671. [CrossRef] [PubMed]
44. Farmář, EE; Gao, YQ; Lenzoni, G.; Wolfender, JL; Wu, Q. Rána a mechanostimulované elektrické signály řídí hormonální odezvy. Nový Phytol. 2020, 227, 1037–1050. [CrossRef] [PubMed]
45. Zhang, Y.; Píseň, RF; Yuan, HM; Li, TT; Wang, LF; Lu, KK; Guo, JX; Liu, WC Nadměrná exprese N-konce CATALASE2 zvyšuje rostlinnou biosyntézu kyseliny jasmonové a odolnost vůči nekrotrofnímu patogenu Botrytis cinerea B05.10. Mol. Plant Pathol. 2021, 22, 1226–1238. [CrossRef] [PubMed]
46. Caarls, L.; Van der Does, D.; Hickman, R.; Jansen, W.; Verk, MC; Proietti, S.; Lorenzo, O.; Solano, R.; Pieterse, CM; Van Wees, SC Posouzení role transkripčních represorů faktoru odezvy na etylen v supresi genů reagujících na kyselinu jasmonovou zprostředkovanou kyselinou salicylovou. Plant Cell Physiol. 2017, 58, 266–278. [CrossRef]
47. Tanaka, K.; Heil, M. Molekulární vzory spojené s poškozením (DAMP) v rostlinné vrozené imunitě: Aplikace modelu nebezpečí a evoluční perspektivy. Annu. Phytopathol. 2021, 59, 53–75. [CrossRef]
Shuxian Feng †, Caizhe Pan †, Shutting Ding, Qiaomei Ma, Chaoyi Hu, Ping Wang a Kai Shi *.
Katedra zahradnictví, Zhejiang University, Hangzhou 310058, Čína; 21916054@zju.edu.cn (SF)
22016198@zju.edu.cn (CP); 3130100256@zju.edu.cn (SD); 11916060@zju.edu.cn (QM); cyhu@zju.edu.cn (CH); 11916061@zju.edu.cn (PW)
Korespondence: kaishi@zju.edu.cn; Tel.: plus 86-0571-88982383
Tito autoři se na této práci podíleli stejnou měrou.
For more information:1950477648nn@gmail.com


