

Podávání taurinu působí proti stárnutí kosterní svalové regenerace tím, že snižuje zánět a oxidační stres, část 1
Jun 12, 2023
Abstraktní:Sarkopenie, ke které dochází během stárnutí, je charakterizována postupnou ztrátou hmoty a funkce kosterního svalstva, což má za následek funkční pokles fyzických schopností. K nástupu sarkopenie přispívá několik faktorů, včetně snížené regenerační kapacity, chronického zánětu nízkého stupně, mitochondriální dysfunkce a zvýšeného oxidačního stresu, což vede k aktivaci katabolických drah. Fyzická aktivita a dostatečný příjem bílkovin jsou považovány za účinné strategie schopné snížit výskyt a závažnost sarkopenie tím, že mají příznivé účinky na zlepšení svalové anabolické reakce během stárnutí. Taurin je neesenciální aminokyselina, která je vysoce exprimována v tkáních savců a zejména v kosterním svalstvu, kde se podílí na regulaci biologických procesů a kde působí jako antioxidant a protizánětlivý faktor. Zde jsme hodnotili, zda podávání taurinu u starých myší působí proti fyziopatologickým účinkům stárnutí v kosterním svalstvu. Ukázali jsme, že u zraněných svalů taurin zvyšuje regenerační proces tím, že snižuje zánětlivou reakci a zachovává integritu svalových vláken. Taurin navíc zeslabuje produkci ROS ve starých svalech tím, že udržuje správnou buněčnou redoxní rovnováhu a působí jako molekula antioxidantu. Ačkoli jsou zapotřebí další studie k lepšímu objasnění molekulárních mechanismů odpovědných za příznivý účinek taurinu na homeostázu kosterního svalstva, tato data ukazují, že podávání taurinu zlepšuje mikroprostředí umožňující účinný regenerační proces a útlum katabolických drah souvisejících s nástupem sarkopenie.
Glykosid cistanche může také zvýšit aktivitu SOD v srdeční a jaterní tkáni a významně snížit obsah lipofuscinu a MDA v každé tkáni, účinně zachycovat různé reaktivní kyslíkové radikály (OH-, H₂O₂ atd.) a chránit před způsobeným poškozením DNA. OH-radikály. Cystanche fenylethanoidové glykosidy mají silnou schopnost vychytávání volných radikálů, vyšší redukční schopnost než vitamín C, zlepšují aktivitu SOD v suspenzi spermií, snižují obsah MDA a mají určitý ochranný účinek na funkci membrány spermií. Polysacharidy Cistanche mohou zvýšit aktivitu SOD a GSH-Px v erytrocytech a plicních tkáních experimentálně senescentních myší způsobených D-galaktózou, stejně jako snížit obsah MDA a kolagenu v plicích a plazmě a zvýšit obsah elastinu. dobrý čisticí účinek na DPPH, prodlužuje dobu hypoxie u senescentních myší, zlepšuje aktivitu SOD v séru a oddaluje fyziologickou degeneraci plic u experimentálně senescentních myší Experimenty prokázaly, že Cistanche má dobrou antioxidační schopnost s buněčnou morfologickou degenerací a má potenciál být lékem k prevenci a léčbě nemocí stárnutí kůže. Zároveň má echinakosid v Cistanche významnou schopnost vychytávat volné radikály DPPH a má schopnost vychytávat reaktivní formy kyslíku a bránit volnými radikály indukované degradaci kolagenu a má také dobrý reparační účinek na poškození aniontů volnými radikály thyminu.
Klikněte na Cistanche Tubulosa
【Další informace:george.deng@wecistanche.com / WhatApp:{0}}】
1. Úvod
Stárnutí je charakterizováno postupným zhoršováním základních fyziologických a biochemických funkcí orgánů a tkání a je často spojeno s progresivní ztrátou hmoty a síly kosterního svalstva, což je stav známý jako sarkopenie [1]. Mechanismy odpovědné za sarkopenii nejsou zcela pochopeny; nicméně je pravděpodobně výsledkem multifaktoriálních jevů zahrnujících sníženou regenerační schopnost [2,3], chronický zánět [4,5], zvýšené hladiny oxidačního stresu [5,6] a mitochondriální dysfunkce [7].
Svalová regenerace je koordinovaný proces, při kterém jsou satelitní buňky, kompartment kmenových buněk kosterního svalu, aktivovány, aby udržely a zachovaly strukturu a funkci tkáně při poškození [8].
První fáze regeneračního procesu je charakterizována nekrózou myovlákna v důsledku přílivu extracelulárního vápníku vedoucího k proteolýze myofibril [9,10]. Tato událost má za následek aktivaci specifické zánětlivé reakce, která vede k sekvenční invazi svalů různými populacemi zánětlivých buněk [11]. Po zánětlivé odpovědi následuje satelitní buněčná aktivace a tvorba regeneračních vláken, která jsou morfologicky odlišitelná charakteristickými centralizovanými jádry [12,13]. Účinný regenerační program však může být vážně ovlivněn v případě stárnutí nebo patologických stavů a tvorba rozšířené fibrotické tkáně může přispět k funkčnímu poškození [14,15]. Navíc změny v zánětlivých cytokinech, růstových faktorech a metabolických signálech v prostředí stárnoucích kosterních svalů mohou ovlivnit proliferaci a/nebo aktivaci satelitních buněk po poranění myovlákna [16]. Je skutečně známo, že stárnutí je spojeno se zánětlivým stavem nízkého stupně, stavem známým jako „zánětlivý“, charakterizovaný mírně zvýšenými hladinami prozánětlivých mediátorů v plazmě, jako je tumor nekrotizující faktor (TNF) a interleukin 6 ( IL-6) a následná aktivace NF-κB dráhy [13]. Je zajímavé, že bylo zjištěno, že koncentrace proteinu NF-κB jsou ve svalech starších lidí čtyřikrát vyšší než u mladých lidí; tato zvýšená koncentrace je doprovázena deficitem anabolické signalizace vedoucí k úbytku stárnoucích svalů [17].
Zvýšená míra zánětu úzce souvisí s oxidačním poškozením a oba se podílejí na snižování svalové hmoty a síly související s věkem. Oxidační stres je charakterizován vysokými hladinami reaktivních forem kyslíku (ROS) a/nebo reaktivních forem dusíku (RNS). Může být způsobeno sníženou antioxidační kapacitou v důsledku narušené aktivity antioxidačních enzymů a/nebo zvýšenou produkcí ROS [18]. Kromě toho mohou zvýšené hladiny ROS a RNS také vyústit v důsledek mitochondriální dysfunkce způsobené věkem podmíněnými mutacemi mitochondriální DNA, delecemi a poškozením [19–21]. Zdá se, že ROS fungují jako druzí poslové pro TNF- v kosterním svalu a aktivují NF-κB buď přímo, nebo nepřímo [14].
V kosterním svalu je transkripční koaktivátor peroxisomovým proliferátorem aktivovaný receptor-gama koaktivátor-1 (PGC-1) jednou z nejdůležitějších molekul, které se podílejí na stimulaci mitochondriální biogeneze, regulaci buněčné homeostázy oxidant-antioxidant , potlačení chronického zánětu a svalového katabolismu [22]. PGC-1 interaguje s nukleárními receptory a transkripčními faktory, aby aktivoval transkripci jejich cílových genů, a jeho aktivita reaguje na různé podněty včetně iontů vápníku, ROS, inzulínu, hormonů štítné žlázy a estrogenu, hypoxie, poptávky po ATP a cytokinů [ 23]. Zejména PGC-1 regulace mitochondriální biogeneze zahrnuje její interakci s několika jadernými transkripčními faktory, včetně členů rodiny PPAR, jaderného respiračního faktoru (NRF)-1 a NRF-2, faktoru zesilujícího myocyty{ {10}} (MEF2) a forkhead box protein O (FOXO) 1 [24,25]. PGC-1 aktivace NRF-1, 2 podporuje expresi mnoha jaderně kódovaných mitochondriálních proteinů, což přímo stimuluje replikaci a transkripci mitochondriální DNA [23,26,27]. Navíc PGC-1 ve spolupráci s transkripčním faktorem MEF2C může také ovlivnit fenotypové profily myovláken, což upřednostňuje posun od rychlého MHC k odolnějšímu pomalému MHC během stárnutí [28,29].
V posledním desetiletí bylo navrženo několik strategií, jako je fyzická aktivita a výživa, s cílem potenciálně zmírnit zhoršování kosterního svalstva během stárnutí. Bylo hlášeno, že fyzické cvičení zmírňuje sarkopenii a zabraňuje hromadění tělesného tuku a zánětu [30–32]. Navíc dietní intervence zaměřené na příjem bílkovin nebo antioxidantů mohou mít pozitivní vliv na nárůst svalové hmoty a síly [33]. Je známo, že ztráta svalové hmoty a funkce, ke které dochází u starších lidí, zahrnuje snížený příjem potravy, což má za následek útlum syntézy svalových bílkovin ve srovnání s mladšími lidmi [34]. V důsledku toho může výživa, zejména suplementace aminokyselin, představovat důležitý přístup ke zlepšení anabolické odpovědi svalů během stárnutí [35–39].
Taurin je semiesenciální aminokyselina odvozená od cysteinu, která je vysoce exprimována v savčích tkáních. V kosterním svalstvu, kde se jeho hladiny v průběhu stárnutí snižují, hraje důležitou roli jako antioxidační a protizánětlivá molekula [40,41]. Vzhledem k tomu, že kosterní sval zbavený taurinu vykazuje několik abnormalit ve své morfologii a funkci, které se podobají těm, které se vyskytují během stárnutí [42], může suplementace taurinu představovat slibnou strategii, jak působit proti negativním účinkům stárnutí v kosterním svalstvu.
Zde prokazujeme, že intraperitoneální podávání taurinu působí proti stárnutím souvisejícímu dopadu regenerace kosterního svalstva snížením zánětu. Naše výsledky navíc podporují roli taurinu jako antioxidační molekuly schopné zlepšit svalové mikroprostředí, působit proti degenerativním procesům a podporovat tkáňovou homeostázu během stárnutí.
2. Materiály a metody
2.1. Zvířata a léčba
Mladí (8–10 týdnů) a staří (18–20 měsíců) samci myší C57BL6J byli umístěni v zařízení s cyklem světlo/tma 12 hodin při konstantní teplotě a vlhkosti. Myši se nechaly krmit a pít ad libitum. S myšmi bylo zacházeno v souladu s pokyny Etického výboru Katolické univerzity Nejsvětějšího srdce – Řím (č. oprávnění 150/2017-PR italského ministerstva zdravotnictví) v souladu s národními předpisy o ochraně používaných zvířat. pro vědecké účely (italská vyhláška č. 26 ze dne 4. března 2014, která uznává evropskou směrnici 2010/63/EU). Taurin byl připraven ve fyziologickém roztoku a podáván intraperitoneálními injekcemi v dávkách 100 mg/kg/den po dobu pěti po sobě jdoucích týdnů [43–45] (schéma 1). Tato dávka byla zvolena na základě publikovaných dat ukazujících antioxidační účinky in vivo na myších modelech [46,47]. Kontrolní myši dostávaly pouze fyziologický roztok. Před indukcí poškození TA injekcemi kardiotoxinu (CTX) byla zvířata anestetizována intraperitoneální injekcí směsi ketaminu 70 mg/kg a medetomidinu 1 mg/kg, zředěných ve fyziologickém roztoku. Poranění levého tibialis anterior (TA) u kontrolních myší a myší léčených taurinem bylo provedeno po celé délce svalu čtyřmi injekcemi CTX (5 µl 10 µM CTX na místo) [48,49]. Pravá strana TA byla použita jako kontrolní protějšek. Zvířata byla usmrcena cervikální dislokací po anestezii, jak je popsáno výše. Pro histologické analýzy byly svaly TA zapuštěny do sloučeniny OCT (Miles, Elkhart, IN, USA) a okamžitě zmrazeny v isopentanu při -80 stupních.

2.2. Histologická a histochemická analýza
Svaly TA starých myší byly nařezány na tloušťku 10 um pomocí kryostatu Leica. Pro histologickou analýzu byly řezy obarveny hematoxylinem a eosinem (H&E) za použití standardních metod [50]. Barvení esterázou bylo provedeno za použití soupravy pro nespecifické barvení esterázou (Bio-Optica, Milán, Itálie) podle pokynů výrobce.
2.3. Morfometrická analýza
Na řezech vzorků TA bylo provedeno barvení hematoxylinem a eosinem a esterázou. Pro morfometrické vyhodnocení velikosti vlákna byla analýza provedena na 4 náhodně vybraných polích vysoce zvětšených snímků průřezů celých svalů pro každý stav. Počet vyšetřovaných zvířat byl 3–4 pro každé ošetření. Mikrofotografie vláken byly analyzovány pomocí softwaru ImageJ, Scion Image (verze beta 4.0.2; Scion Corporation, Frederick, MD, USA, přístupné 2. května 2022), aby se vyhodnotila plocha průřezu vláken . Regenerační vlákna byla zvýrazněna přítomností centrálních jader.
2.4. Imunofluorescenční analýza
Zmrazené řezy byly fixovány ve 4% paraformaldehydu po dobu 10 min při pokojové teplotě, promyty PBS a permeabilizovány roztokem obsahujícím 1% bovinní sérový albumin (BSA) (Sigma-Aldrich, St. Louis, MO, USA , #A9418), 0,2 procenta Triton-X ve fyziologickém roztoku pufrovaném fosfátem (PBS) po dobu 30 minut při pokojové teplotě a blokováno 10procentním oslím sérem (Sigma-Aldrich, St. Louis, MO, USA, #D9663) po dobu 1 h při pokojové teplotě. Řezy byly inkubovány přes noc při 4 °C s primárními protilátkami ve vhodném ředění. Byly použity následující protilátky: pomalé MHC (Sigma-Aldrich, St. Louis, MO, USA, #M8421, 1:500) a 4-HNE (Alpha Diagnostics International, San Antonio, TX, #HNE{{20 }}S, 1:500). Po trojnásobném promytí v PBS byly řezy inkubovány po dobu 60 minut při teplotě místnosti se specifickými sekundárními protilátkami. Konkrétně byly použity následující: AlexaFluor594-konjugovaná anti-myší 1:1000 (Molecular Probes, Eugene, OR, USA, #A21203) a AlexaFluor{29}}konjugovaná anti-králičí 1:1000 (Molecular Probes, Eugene, OR, USA, #A21206) v PBS obsahujícím 1,5 procenta oslího séra. Řezy byly připevněny pomocí ProLong™ Gold Antifade Mountant s DAPI (Thermo Fisher Scientific, Waltham, MA, USA, #P36935) a vyšetřeny pomocí laserového konfokálu Leica SP5. Kvantifikace změn v 4-HNE signálu v experimentálních skupinách byla provedena denzitometrickými analýzami. Po odečtení pozadí byly signály 4-HNE asociované s vlákny kvantifikovány ručním nastíněním jednotlivých vláken a měřením intenzity fluorescence asociované s vlákny pomocí softwaru ImageJ. Poměr F/A definuje střední fluorescenci jednotlivých vláken (F) normalizovanou na celkovou plochu průřezu vlákna (A). Kvantifikace byla provedena na 50 vláknech na skupinu (n=3 myší na skupinu).
2.5. Extrakce proteinů a analýza Western blot
Svaly TA získané z myší byly vypreparovány, rozemlety a homogenizovány lyzačním pufrem (Cell Signaling Technology, Danvers, MA, USA, č. 9803) obsahujícím fenylmethylsulfonylfluorid (PMSF) (Cell Signaling Technology, Danvers, MA, USA, #8553) a kompletní koktejl inhibitorů proteázy (Cell Signaling Technology, Danvers, MA, USA, #5872). Byly použity Bradford Protein Assay (Bio-Rad Laboratories Inc., Hercules, CA, USA) a Varioskan™ LUX řízené Thermo Scientific™ SkanIt™, pro čtečky mikrotitračních destiček (Thermo Fisher Scientific, Waltham, MA, USA, verze softwaru 4.1). ke stanovení stejného množství bílkovin podle pokynů výrobce. Proteiny byly separovány pomocí SDS/PAGE (Mini-PROTEAN® TGX™ Precast Protein Gels nebo Mini-PROTEAN TGX prefabrikované PAGE gely; Bio-Rad Laboratories Inc., Hercules, CA, USA) a přeneseny na nitrocelulózovou membránu ( Trans-Blot® Turbo™ Mini Nitrocelulózové přenosové balíčky #1704158; Bio-Rad Laboratories Inc., Hercules, CA, USA). Nespecifická vazba byla blokována v Tris-pufrovaném fyziologickém roztoku (TBS) (Bio-Rad Laboratories Inc., Hercules, CA, USA) doplněném 0,1 procenta Tween-20 a obsahujícím 5 procent odtučněného sušeného mléka (Bio-Rad Laboratories Inc. , Hercules, CA, USA #1706404) po dobu 1 hodiny při teplotě místnosti. Primární použité protilátky byly: myší monoklonální anti-SOD-1 (1:500, Santa Cruz Biotechnology Dallas, Texas 75220, USA, sc{27}}); králičí monoklonální anti-fosfo-mTOR (1:1000, #2971, Cell Signaling Technology, Danvers, MA, USA); králičí monoklonální anti-mTOR (1:1000, #2972, Cell Signaling Technology, Danvers, MA, USA); myší monoklonální anti-slow-MHC (1:500, Sigma-Aldrich, #M8421); myší monoklonální anti-myosin (Skeletal, Fast) (1:500, Sigma-Aldrich, St. Louis, MO, USA, #M4276); králičí monoklonální anti-fosfo-NF-kB p65 (Ser468) (1:1000, #3039, Cell Signaling Technology, Danvers, MA, USA); králičí monoklonální anti-NF-KB p65 (1:250, #3034, Cell Signaling Technology, Danvers, MA, USA); myší monoklonální anti-G6PD (1:300, Santa Cruz Biotechnology Dallas, Texas 75220 USA, sc{67}}) a myší monoklonální anti-GP91[phox]. Bloty byly poté inkubovány s následujícími sekundárními protilátkami od Bio-Rad Laboratories: kozí anti-králičí IgG (1:3000, HRP konjugát, Bio-Rad Laboratories Inc., Hercules, CA, USA, #1706515) a kozí anti-myší IgG (1:3000, HRP konjugát, Bio-Rad Laboratories Inc., Hercules, CA, USA, #1706516) po dobu 1 hodiny při teplotě místnosti. Signály byly zachyceny systémem ChemiDoc™ Imaging System (Bio-Rad Laboratories, Hercules, CA, USA) s použitím vylepšeného chemiluminiscenčního systému (SuperSignal Chemoluminescent Substrate, Thermo Fisher Scientific Inc. Waltham, MA, USA). Denzitometrické analýzy byly provedeny pomocí Image Lab™ Touch, verze softwaru 5.2.1 (Bio-Rad Laboratories Inc., Hercules, CA, USA).

2.6. Analýza PCR v reálném čase
Svaly TA získané z myší byly vypreparovány a celková extrakce RNA byla provedena pomocí tkáňového lyzéru (QIAGEN) v TriReagent (Invitrogen, Carlsbad, CA, USA) podle protokolu výrobce. Dvouřetězcová cDNA byla syntetizována pomocí sady QuantiTect pro reverzní transkripci (QIAGEN Srl, Milán, Itálie). Messenger-RNA analýzy byly provedeny na ABI PRISM 7500 SDS (Applied Biosystems, Waltham, MA, USA) za použití specifických testů TaqMan (Applied Biosystems, Waltham, MA, USA). Konkrétně byly použity následující testy: GPX1: mm_00656767_g1; MEF2C: mm_00600423_m1; PGC1- : mm_01280835_m1; SOD1: mm_01344233_}m1; a CAT: mm_00437992_m1. Relativní kvantifikace byla provedena pomocí endogenní kontroly Hprt1 (Applied Biosystems, Waltham, MA, USA). PCR v reálném čase se prováděla s použitím přípravků RNA ze tří až pěti různých zvířat pro každou skupinu, jak je specifikováno na obrázcích. Relativní vyjádření bylo vypočteno pomocí metody 2−∆∆Ct.
2.7. Statistická analýza
Vícenásobná statistická srovnání mezi skupinami byla provedena jednocestnou ANOVA. Tam, kde je v legendách uvedeno, byl použit Mann–Whitney test pořadí-součet nebo nepárový Studentův t-test. Každý sloupec představuje průměr ± SEM (standardní chyba průměru).
3. Výsledky
3.1. Podávání taurinu působí proti stárnutí kosterní svalové regenerace související se stárnutím
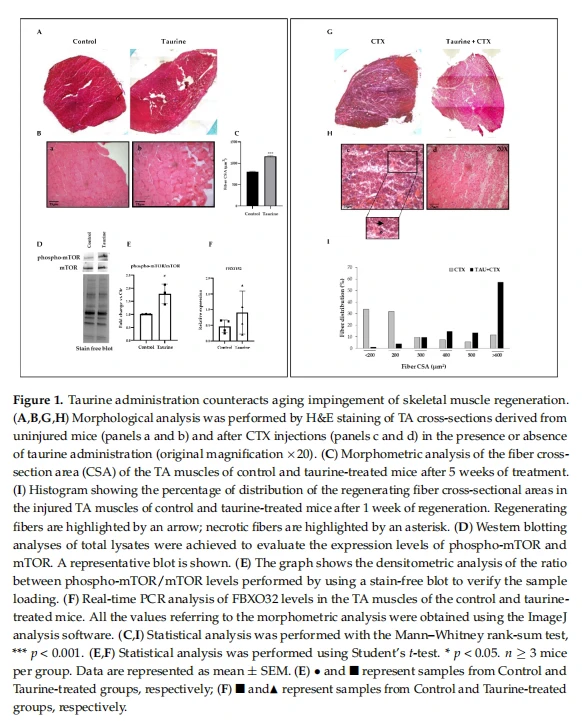
Abychom prozkoumali účinek podávání taurinu na regeneraci kosterního svalstva, vyvolali jsme poškození pomocí injekcí CTX v TA svalech kontrolních (vehikulum) a starých myší léčených taurinem. Morfologické a morfometrické analýzy odhalily, že v nepřítomnosti poranění (obrázek 1A, B: panely a, b a obrázek 1C) vykazovala svalová vlákna myší léčených taurinem mírně zvýšenou plochu průřezu ve srovnání s kontrolami. Protože homeostáza proteinů v kosterním svalu spočívá na rovnováze mezi syntézou proteinů a degradací proteinů, analyzovali jsme hladiny fosfo-mTOR jako hlavního regulátoru syntézy proteinů a Atrogin-1 jako jednoho z hlavních regulátorů. podílejí se na katabolismu proteinů prostřednictvím systému ubikvitin–proteazom [40]. Naše výsledky ukázaly, že hladiny fosfo-mTOR byly významně zvýšeny ve svalových extraktech myší léčených taurinem, zatímco v tomto stavu nebyla zjištěna žádná významná modulace Atroginu-1 (FBXO32) (obrázek 1D–F). Tato data demonstrují zapojení mTOR-dependentní dráhy do účinku taurinu na pozorované zvýšení CSA kosterních svalových vláken. Kromě toho, po 1 týdnu poškození svalů, průřez vláken u myší léčených vehikulem (CTX) odhalil degeneraci se současným akutním zánětem a nekrózou, stejně jako přítomnost malých regenerujících vláken identifikovaných centrálními jádry ( Obrázek 1G, H: panel c). Na druhé straně se ve zraněných svalech starých myší léčených taurinem objevily větší regenerační svalová vlákna a méně nekrotických vláken (obrázek 1G, H: panel d) spolu s menším počtem infiltrátů. Analýza těchto výsledků, znázorněná v diagramech na obrázku 11, odhalila, že podávání taurinu ovlivnilo distribuci velikosti vláken upřednostněním akumulace větších regenerujících vláken ve srovnání s kontrolním zraněným svalem. Závěrem lze říci, že tyto výsledky naznačují, že taurin může stimulovat regenerační proces tím, že vykonává ochrannou roli při udržování integrity vláken kosterního svalstva a podporuje urychlení tvorby nových svalových vláken.
3.2. Suplementace taurinu moduluje zánětlivou odezvu ve stárnoucích svalech
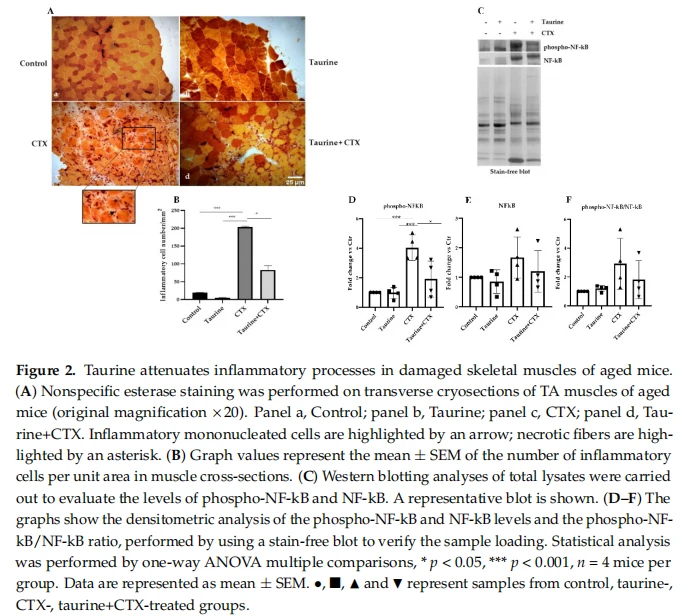
Stárnutí je doprovázeno chronickým systémovým zánětlivým stavem nízkého stupně [51], který může být zodpovědný za zhoršenou regenerační kapacitu kosterního svalstva [52]. Abychom ověřili, zda zvýšená regenerační reakce pozorovaná u poraněných svalů myší léčených taurinem byla spojena s modulací zánětlivého procesu, zkoumali jsme přítomnost makrofágů barvením esterázou. Obrázek 2A, B ukazují, že v důsledku injekcí CTX všechny svalové řezy vykazovaly zvýšený počet mononukleárních zánětlivých buněk ve srovnání s neporaněnými protějšky; avšak vysoký počet esterázově pozitivních makrofágů přítomných ve starém poraněném svalu (obrázek 2A: panel c a obrázek 2B) byl významně oslaben v přítomnosti suplementace taurinu (obrázek 2A: panel da obrázek 2B). Vliv taurinu na snížení rozsahu zánětu během regeneračního procesu byl hodnocen také analýzou hladin fosforylované izoformy transkripčního faktoru NF-kB, protože je známo, že jeho aktivace v kosterním svalu vede k degradaci specifických svalových proteinů. indukuje zánět a fibrózu a blokuje regeneraci svalových vláken po poranění [53–55]. Jak je znázorněno na obrázku 2C, D, fosfo-NF-kB byl detekovatelný ve velmi nízkých hladinách jak v kontrolních, tak v neporaněných svalech léčených taurinem, zatímco vysoké hladiny fosfo-NF-kB detekované v poraněných svalech CTX byly dramaticky sníženy svaly starých myší léčených taurinem. Byly analyzovány celkové hladiny NF-kB a poměr mezi fosfo-NF-kB a NF-kB a bylo prokázáno, že se zvýšily, i když ne významně, s poškozením vyvolaným CTX, zatímco taurin tomuto účinku zabránil (obrázek 2C, E, F) . Tyto výsledky ukazují, že taurin zmírňuje zánětlivý stav v poraněném svalu snížením hladin jak celkového NF-kB, tak fosfo-NF-kB.
3.3. Taurin moduluje expresi PGC1- a MEF2C v TA svalech starých myší
Abychom lépe prozkoumali molekulární mechanismy podílející se na pozitivním účinku taurinu na homeostázu kosterního svalstva, vyhodnotili jsme roli transkripčního koaktivátoru PGC-1. PGC-1 je důležitým faktorem podporujícím protizánětlivé prostředí ve svalech. Kromě toho bylo hlášeno, že PGC-1 může zlepšit nejen svalovou funkci, ale také morfologii a integritu svalových vláken, což naznačuje potenciální roli PGC-1 při opravě a regeneraci vláken. Ve spolupráci s transkripčním faktorem MEF2C bylo prokázáno, že PGC-1 reguluje určování typu vláken kosterního svalstva a podporuje přechod z glykolytických vláken na odolnější oxidační vlákna [56,57].
Pomocí analýzy RT-PCR jsme tedy hodnotili hladiny exprese mRNA PGC-1 a MEF2C v TA extraktech mladých, starých a starých myší léčených taurinem, abychom určili, zda podávání taurinu vyvolalo transkripční změny výše uvedených faktory ve srovnání s tím, co bylo pozorováno v jeho nepřítomnosti. K hodnocení hladin exprese těchto faktorů byly použity mladé myši ve zdravých podmínkách. Jak je znázorněno na obrázku 3A, B, v nepřítomnosti taurinu nebyly v extraktech starých myší ve srovnání s mladými pozorovány žádné změny v hladinách PGC-1 a pouze mírný pokles hladin MEF2C, zatímco hladiny mRNA obou molekul byly významně upregulovány u starých myší podrobených intraperitoneálním injekcím taurinu. Bylo prokázáno, že pomalá oxidativní vlákna typu I (vyjadřující pomalou izoformu těžkého řetězce myosinu, pomalý MHC) jsou odolnější vůči poškození a různým atrofickým podmínkám než rychlá glykolytická vlákna typu IIb [29]. U několika svalových patologií, včetně sarkopenie, je nejrychlejší svalový fenotyp vážněji narušen ve srovnání se svaly s pomalými záškuby a větší citlivost vláken typu IIb může být způsobena jejich nižším obsahem PGC-1 ve srovnání s tímto oxidačních vláken [58,59]. Zde jsme pomocí analýzy Western blot ukázali, že svaly TA starých myší exprimovaly velmi nízké hladiny izoformy pomalého MHC ve srovnání se svalovými extrakty získanými z mladých; avšak exprese pomalého MHC se zvýšila ve svalových extraktech myší léčených taurinem (obrázek 3C, D). Kromě toho analýza Western blot izoformy rychlého MHC odhalila, že v přítomnosti taurinu byla jeho exprese významně zvýšena ve srovnání s tím, co bylo pozorováno u extraktů TA pocházejících ze starých myší, kterým nebyl podáván taurin (obrázek 3F). . V souladu s tím byly snížené hladiny MHC (MF20) detekované ve svalových extraktech starých myší ve srovnání s hladinami u mladých myší zvýšeny při podávání taurinu. Tyto výsledky naznačují, že pozitivní účinek taurinu na homeostázu kosterního svalstva u starých myší může být zprostředkován stimulací dráhy PGC1-/MEF2C, což podporuje možný metabolický posun svalových vláken směrem k oxidativnímu fenotypu a zachovává více citlivá glykolytická vlákna.

【Další informace:george.deng@wecistanche.com / WhatApp:{0}}】


