Kyselina askorbová reguluje imunitu, antioxidaci a apoptózu u Abalone Haliotis Discus Hannai Ino Part 2
Jul 31, 2023
3.5. Projevy genů a proteinů souvisejících s imunitou v trávicí žláze a žábrách mušlí
Glykosid cistanche může také zvýšit aktivitu SOD v srdeční a jaterní tkáni a významně snížit obsah lipofuscinu a MDA v každé tkáni, účinně zachycovat různé reaktivní kyslíkové radikály (OH-, H₂O₂ atd.) a chránit před způsobeným poškozením DNA. OH-radikály. Cystanche fenylethanoidové glykosidy mají silnou schopnost vychytávání volných radikálů, vyšší redukční schopnost než vitamín C, zlepšují aktivitu SOD v suspenzi spermií, snižují obsah MDA a mají určitý ochranný účinek na funkci membrány spermií. Polysacharidy Cistanche mohou zvýšit aktivitu SOD a GSH-Px v erytrocytech a plicních tkáních experimentálně senescentních myší způsobených D-galaktózou, stejně jako snížit obsah MDA a kolagenu v plicích a plazmě a zvýšit obsah elastinu. dobrý čisticí účinek na DPPH, prodlužuje dobu hypoxie u senescentních myší, zlepšuje aktivitu SOD v séru a oddaluje fyziologickou degeneraci plic u experimentálně senescentních myší Experimenty prokázaly, že Cistanche má dobrou antioxidační schopnost s buněčnou morfologickou degenerací a má potenciál být lékem k prevenci a léčbě nemocí stárnutí kůže. Zároveň má echinakosid v Cistanche významnou schopnost vychytávat volné radikály DPPH a má schopnost vychytávat reaktivní formy kyslíku a bránit volnými radikály indukované degradaci kolagenu a má také dobrý reparační účinek na poškození aniontů volnými radikály thyminu.
Klikněte na Cistanche Reddit pro Anti-Aging
【Další informace:george.deng@wecistanche.com / WhatApp:{0}}】
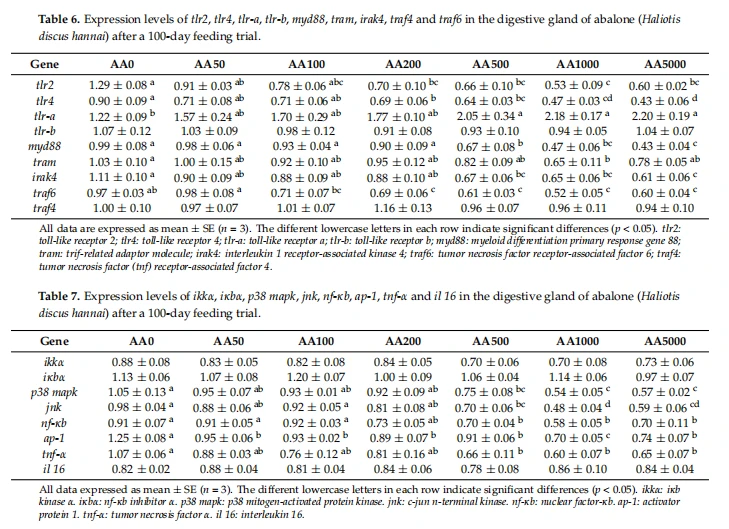
Hladiny mRNA klíčových genů v signální dráze toll-like receptor (TLR) v trávicí žláze abalone jsou uvedeny v tabulkách 6 a 7. Hladiny exprese tlr2 a tlr4 v trávicí žláze byly významně sníženy (p < { {5}}.05) a nejnižší úrovně měly na AA1000 a AA500{{43 }} skupin (tabulka 6). Hladina mRNA-a byla významně upregulována (p < 0.{58}}5) a mRNA nebyla ovlivněna odstupňovanými hladinami AA ve stravě (p > 0,05 ). Exprese myd88, trip-related adaptorové molekuly (tram), kinázy 4 asociované s receptorem interleukinu 1 (irak4) a faktoru 6 asociovaného s receptorem tumor nekrotizujícího faktoru (traf6) byly významně sníženy po dietní suplementaci AA (p < 0,05). Traf4 nebyl ovlivněn úrovní suplementace AA (p > 0,05). Hladiny mRNA iκb kinázy (ikk) a nf-kb inhibitoru (iκb) v trávicí žláze abalone nebyly ovlivněny dietním AA (p > 0,05) (tabulka 7). Exprese p38 mitogenem aktivované protein kinázy (značka p38) a junk byly však významně downregulovány se zvyšující se dietou AA (p < 0,05). Dietní AA mohla významně snížit hladiny exprese nf-κb, aktivátorového proteinu 1 (ap-1) a tumor nekrotizujícího faktoru (tnf-) (p < 0,05), a hladina interleukinu 16 (il 16) nebyla podléhající dietnímu AA (p > 0,05). Proteinové exprese MyD88, JNK, zralého IL-1 a jaderného NF-κB p65 jsou uvedeny na obrázku 2. Hladiny proteinu MyD88, zralého IL-1 a jaderného NF-κB p65 v zažívacím traktu žlázy abalone byly významně downregulovány dietním AA (p < 0,05). Naproti tomu hladina proteinu JNK nebyla ovlivněna AA (p > 0,05).
Hladiny mRNA tlr2, tlr4 a the-b v žábrách ušňů se významně nelišily (p > 0.05) a hladina tar-a byla po odstupňovaných hladinách významně snížena dietní AA (p < 0.05) (tabulka 8). Kromě toho hladiny exprese myd88, irak4 a traf6 v žábrách ušňů byly významně sníženy se zvyšující se hladinou AA ve stravě (p < 0.{{20}}5). Místo toho nebyly pozorovány žádné významné rozdíly ve vyjadřování tramvají a dopravy4 (p > {{30}}.05). Dietní AA významně snížilo hladinu mRNA ikk (p < 0,05) a exprese iκb, p38 mark a junk v žábrách nebyly ovlivněny AA (p > 0,05) (tabulka 9). Jednosměrná ANOVA odhalila, že hladiny exprese nf-κb, ap-1 a tnf- byly významně sníženy dietním AA (p < 0,05) a nebyl pozorován žádný významný rozdíl v hladinách il 16 (p > 0,05). Hladiny proteinu MyD88 a jaderného NF-KB p65 byly významně sníženy odstupňovanými hladinami dietní AA (p < 0,05) (obrázek 3). Proteinové exprese JNK a zralého IL-1 v žábrách ušňů však nebyly ovlivněny dietním AA (p > 0,05).
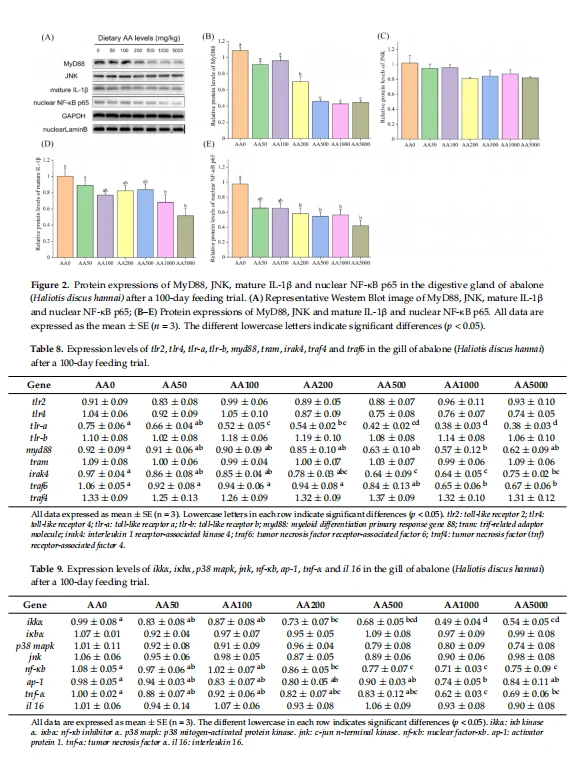
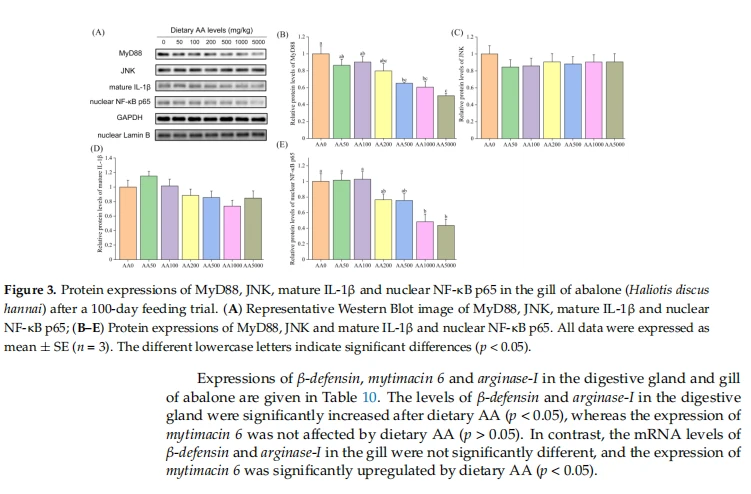
Exprese -defensinu, mýtů 6 a arginázy-I v trávicí žláze a žábrách ušně jsou uvedeny v tabulce 10. Hladiny -defensinu a arginázy-I v trávicí žláze byly významně zvýšeny po dietním AA (p < 0.05), zatímco vyjádření mýtů 6 nebylo ovlivněno dietním AA (p > 0,05). Naproti tomu hladiny mRNA -defensinu a arginázy-I v žábrách se významně nelišily a exprese mýtů 6 byla významně upregulována dietním AA (p < 0,05).

3.6. Exprese genů souvisejících s imunitou v trávicí žláze v reakci na Vibrio Parahaemolyticus
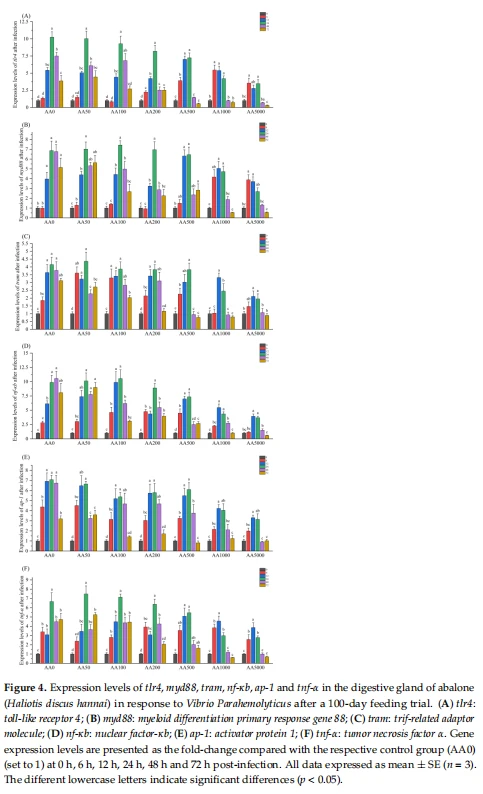
Hladiny exprese několika kritických genů v signální dráze TLR, obsahujících tlr4, myd88, tram, nf-κb, ap-1 a tnf- v trávicí žláze abalone po infekci V. parahaemolyticus, jsou uvedeny na obrázku 4 Exprese mRNA tlr4, myd88, tram, nf-κb, ap-1 a tnf- byly významně zvýšeny po podání V. parahaemolyticus (p < 0.05). Změna násobku tlr4 byla nejvyšší ve skupině AA0 (10.24-násobek) 24 hodin po infekci a následně nejvyšší úroveň klesla na 3.{{ 20}}násobek ve skupině AA5000 v 6 hodin. Hladina mRNA myd88 byla významně upregulována za 12–72 hodin ve skupině AA0 (6{28}}krát) a za 6-12 hodin ve skupině AA5000 (3{33}}krát) po V. parahaemolyticus infekce. Exprese tram v trávicí žláze abalone po infekci V. parahaemolyticus byla významně zvýšena z 12 h na 72 h ve skupině AA0 a z 12 h na 24 h ve skupině AA5000. Násobná změna nf-κb dosáhla nejvyšší úrovně za 48 hodin ve skupině AA0 (10.{44}}násobek), po níž následovalo snížení nejvyšší úrovně za 12 hodin ve skupině AA5000 (3.{48 }}násobná změna). Hladina exprese p-1 byla významně zvýšena od 6 h do 72 h ve skupině AA0 a AA50, než se obnovila na normální úroveň v 72 h po kontinuální suplementaci AA. Násobná změna TNF- dosáhla svého vrcholu 24 hodin po infekci V parahaemolyticus ve skupinách AA0, AA50, AA100, AA200 a AA500 a měla nejvyšší hladinu za 12 hodin ve skupinách AA1000 a AA5000.
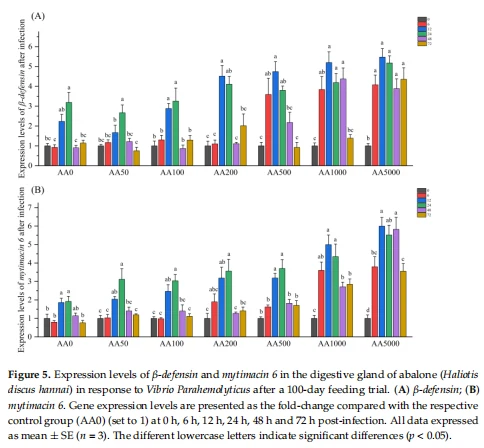
Výsledky hladin -defensinu a mýtů 6 v trávicí žláze po infekci V. parahaemolyticus jsou uvedeny na obrázku 5. Hladiny exprese -defensinu a mýtů 6 v trávicí žláze abalone byly významně zvýšeny po infekci V. parahaemolyticus ( p < 0.05). Hladina mRNA defensinu byla významně zvýšena ve skupinách AA0, AA50, AA100 a AA200 po 12 hodinách a 24 hodinách a dosáhla svého vrcholu za 12 hodin ve skupinách AA200, AA500, AA1000 a AA5000 se 4 .51-skládání, 4.74-skládání, 5.{24}}skládání a 5.{26}}skládání. Násobná změna mýtů 6 v trávicí žláze ušně byla významně upregulována od 12 hodin do 24 hodin ve skupinách AA0, AA50, AA100, AA200 a AA500 a od 6 hodin do 72 hodin ve skupinách AA1000 a AA5000. Nejvyšší úroveň exprese mýtů 6 byla pozorována po 12 hodinách ve skupině AA5000 s 5{43}}násobkem.
3.7. Exprese genů a proteinů souvisejících s antioxidací a apoptózou v trávicí žláze a žábrách
Hladiny mRNA nf-e2-faktoru souvisejícího-2 (nrf2), gpx, cat a cuznsod v trávicí žláze ušňů byly významně zvýšené s odstupňovanými hladinami dietního AA (p < {{4 }}.05) (Tabulka 11). Naproti tomu hladiny mRNA a proteinu Keap1 byly významně sníženy po dietním AA (p < 0.05) a glutathion-s-transferáza (GST) nebyla ovlivněna AA (obrázek 6, tabulka 11) (p > 0.05). V žábrách byly hladiny mRNA nrf2 a gpx významně zvýšeny dietárním AA (p < 0,05) (tabulka 11). Exprese keap1, cat, GST a cuznsod v žábrách však nepodléhaly odstupňovaným hladinám dietní AA (p > 0,05). Nebyl pozorován žádný významný účinek dietní AA na expresi proteinu Keap1 v žábrách abalonu (p > 0,05) (obrázek 6).
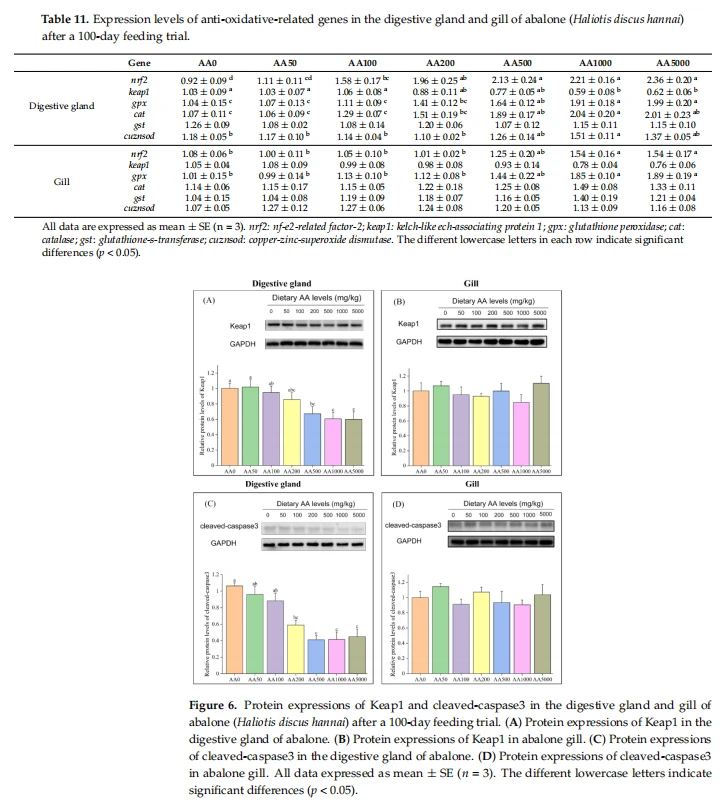
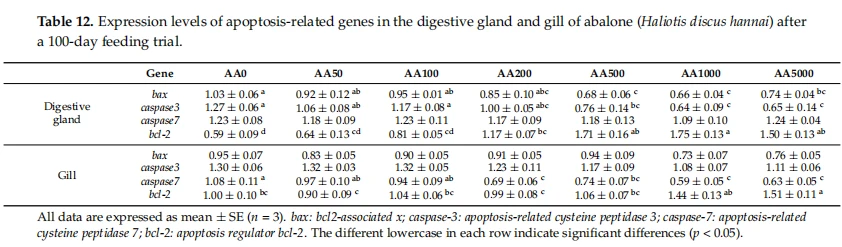
V tabulce 12 je patrné, že hladiny exprese Bax a kaspázy3 v trávicí žláze ušně byly významně sníženy po odstupňovaných hladinách AA ve stravě (p < 0.05). Mezitím byla hladina mRNA bcl-2 významně zvýšena (p < 0.05). Exprese kaspázy7 však nebyla ovlivněna dietní AA (p > 0.{{20}}5). Protein štěpená kaspáza3 v trávicí žláze byl významně snížen po suplementaci AA (p < 0,05) (obrázek 6). V žábrách byly hladiny mRNA kaspázy7 a bcl-2 významně sníženy, respektive zvýšeny, po dietním AA (p < 0,05) (tabulka 12). Nicméně exprese Bax a kaspázy3 se významně nelišily mezi všemi druhy léčby (p > 0,05). Navíc proteinová exprese štěpené kaspázy3 v žábrách ušňů nebyla ovlivněna odstupňovanými hladinami AA (p > 0,05) (obrázek 6).
4. Diskuze
4.1. Obsah kyseliny askorbové v různých tkáních
V této studii se obsah AA ve svalu, žábrách a trávicí žláze zvyšoval se zvyšujícími se hladinami AA ve stravě. Podobný výsledek byl také nalezen u Vundu (Heterobranchus logfiles), japonského úhoře a chřástala Chua (barva Nibea) [27,56,57]. Obsah AA byl nejvyšší v žábrách, následovaných trávicí žlázou ušně. Avšak obsah AA v žábrách, trávicí žláze a svalovině ušně nedosáhl svého nasycení po 4821,17 mg/kg dietní AA. U přísavce čínského (Myxocyprinus asiaticus) byl obsah AA v játrech významně zvýšen dietou AA [58]. Zvýšený obsah AA v játrech čínské přísavky po dietě AA koreloval se zdravím jater. U amurů byl obsah AA v hlavové ledvině, slezině a kůži významně zvýšen se zvyšující se suplementací AA [35]. Hlava, ledvina, slezina a kůže jsou důležitými imunitními orgány u vodních živočichů [59–61]. Tyto výsledky ukazují, že zvýšený obsah AA v trávicí žláze a žábrách ušňů úzce souvisel se zdravím ušňů po dietě AA a že akumulace AA odráží hladiny dietární expozice AA.
4.2. Role kyseliny askorbové v regulaci imunity abalone
Hemocyty jako všestranné buněčné složky hemolymfy u měkkýšů jsou zodpovědné za mnoho aspektů života měkkýšů, jako je imunitní odpověď, biomineralizace, komunikace mezi buňkami a regenerace [62,63]. Proto THC, RB a PA hemolymfy mohou přímo odrážet imunitu organismu. AA byla úzce spojena s THC, RB a PA hemocytů, což vedlo k aktivaci adaptivního imunitního systému [64,65].
V této studii byly THC, RB a PA v hemolymfě abalone významně zvýšeny dietním AA. Ukazuje se, že odstupňované hladiny AA v potravě uspěly při posílení imunitní funkce u ušňů. Podobné výsledky byly pozorovány u tilapie nilské a krevety travní (Penaeus monodon) [64,66]. RB v séru červeného raka bahenního (Procambarus clarkii) a PA v séru hybridního sumce sorubim (Pseudoplatystoma reticulatum × P. corpuscles) byly významně sníženy po vysoké úrovni suplementace AA (321,38 mg/kg a 850 mg/ kg) [67,68]. Při léčbě vysokými hladinami suplementace AA (4821,17 mg/kg) však nebyl pozorován žádný významný pokles THC, RB a PA v hemolymfě abalonu.
Lysozym, C3 a C4 hrají klíčovou roli ve vrozené imunitě a chrání zvířata před patologickou infekcí [69–71]. V této studii byl LZM v CFH ušně významně zvýšen po odstupňovaných hladinách dietní AA. To bylo podobné výsledkům předchozích studií u kobie (Rachycentron canadum), skalníku korejského (Sebastes schlegelii) a kaniců (Epinephelus malabaricus) [29,72,73]. Deficit AA snížil obsah C3 a C4 u amura a dietní AA by mohlo významně zlepšit imunitní parametry, jako je C3 a C4 u okouna tolstolobikového [35,74]. V této studii však nebyl obsah C4 v CFH abalonu ovlivněn dietními hladinami AA. Byl zaznamenán rostoucí trend obsahu C3 v CFH ušně, ačkoli obsah C3 nebyl významně zlepšen dietním AA. Tyto výsledky odhalily, že dietní suplementace AA by mohla zvýšit schopnost eliminovat infekci patogeny LZM a C3, nikoli C4, a zlepšit tak imunitní bariéry ušně.
Vrozená imunita je pro ušně životně důležitá, protože u bezobratlých chybí adaptivní imunita [43,49]. TLR hrají zásadní roli ve vrozeném imunitním systému proti různým mikrobům [75]. PAMP-aktivované TLR rekrutují specifické adaptorové molekuly k aktivaci transkripčních faktorů, jako jsou NF-κB a AP-1, které určují výsledek vrozené imunitní odpovědi [76]. Signalizace TLR je klasifikována do dvou odlišných cest: MyD88- dependentní a MyD88-independentní, které indukují různé cytokiny, jako je TNF- a IL-1 u savců a jiných vodních živočichů [77,78 ]. V MyD88-závislé dráze MyD88 interaguje s IRAK4 a poté interaguje s TRAF6 [79]. TRAF6 může aktivovat TGF- -aktivovanou kinázu 1 (TAK1) a TAK1-vazebné proteiny (TAB) [80]. TAK1 aktivuje komplex IKK, který může fosforylovat IκB, který se váže na podjednotky NF-κB (skládající se z p50 a p65) a fosforyluje MAPK a JNK, což podporuje translokaci AP-1 do jádra [81]. Destrukce IκB usnadňuje jadernou translokaci NF-κB [82]. Nukleární NF-κB a AP-1 se zaměřují na transkripci cytokinů, jako jsou TNF- a IL-1, které jsou dobře známy jako prozánětlivé mediátory, které podporují zánět [76,77,83] . V nezávislé dráze MyD{41}} je vyžadována TRAM a zaujímá v této dráze klíčovou roli [84]. Intracelulární komponenty downstream od signální dráhy TLR jsou běžně a vysoce konzervované mezi obratlovci a bezobratlými [60,85]. Intrahepatická exprese TLR4 byla downregulována u myší s AA (Mus musculus) [86]. AA vykazovala příznivou hepatoprotekci proti imunologickému poškození jater vyvolanému konkanavalinem A u myší inhibicí signální dráhy NF-κB [87,88]. Z těchto výsledků tedy lze odvodit, že AA může ovlivnit signální dráhu TLR. Zůstává však neznámé, jak AA reguluje signální dráhu TLR u vodních živočichů, zejména u měkkýšů.

V této studii byly hladiny mRNA tlr2 a tlr4 v trávicí žláze významně sníženy odstupňovanými hladinami AA v potravě. Předpokládá se, že signální dráha TLR byla spuštěna AA v trávicí žláze abalone (obrázek 7). Termín-a a tlr-b měly širší schopnosti rozpoznávání vzorů a podílely se na antibakteriální a antivirové imunitě ušně [89]; avšak základní mechanismus a/b je stále neznámý. Hladina tlr-b však nebyla ovlivněna dietním AA a tlr-a byl v této studii významně upregulován AA. Jsou zapotřebí další vyšetřování. Exprese myd88, irak4 a traf6 a proteinová exprese MyD88 v trávicí žláze abalone byly downregulovány suplementací AA a hladina traf4 nebyla ovlivněna dietním AA. TRAF4 působí jako tlumič v TLR-zprostředkované signalizaci potlačením TRAF6 [90]. Ukazuje se, že inhibice dráhy TLR dietárním AA nebyla zprostředkována prostřednictvím traf4 v trávicí žláze abalone. Hladina mRNA iκb v trávicí žláze nebyla ovlivněna AA. NF-κB však může být přenesen do jádra pouze po degradaci fosfátu IκB [91]. Exprese mRNA nf-kb a proteinová exprese jaderného NF-KB p65 v trávicí žláze byly významně downregulovány dietním AA. Tyto výsledky naznačují, že AA může potlačit fosforylaci proteinu IκB za účelem snížení jaderného NF-KB. IKK může aktivovat NF-κB p65, aby spustil NF-κB kanonickou dráhu, a IKK může aktivovat NF-κB p52, aby spustil NF-κB nekanonickou dráhu [92]. Ukazuje se, že dietní AA by mohla aktivovat NF-KB kanonickou dráhu v trávicí žláze ušně. Kromě toho exprese mRNA tram, p38 mark, junk, ap-1 a tnf- a hladina proteinu zralého IL-1 byly významně sníženy dietním AA. Tyto výsledky naznačují, že dietní AA by mohla inhibovat signální dráhu TLR prostřednictvím dráhy závislé na Myd88- prostřednictvím NF-κB, p38 mark/ap-1 a JNK/ap-1 a Myd{{ 43}} nezávislé cesty ke zmírnění zánětu v trávicí žláze ušně. V žábrách AA také ovlivnila signální dráhu TLR (obrázek 7). Hladiny mRNA tram, p38 mark a junk a proteinová exprese zralého IL-1 se však významně nelišily. Tyto výsledky ukázaly, že dietní AA může potlačit signální dráhu TLR prostřednictvím dráhy závislé na Myd, nikoli dráhy nezávislé na MyD. Inhibovaná dráha TLR zmírnila zánět v žábrách ušně prostřednictvím NF-κB a p38 mark/ap-1 dráhy, nikoli JNK/ap-1 dráhy. Dietní AA měla silnější účinek na dráhu TLR v trávicí žláze než v žábrách abalone.

【Další informace:george.deng@wecistanche.com / WhatApp:{0}}】