AKT aktivovaná předběžnou úpravou kontroluje neuronální toleranci k ischemii cestou MDM2–p53Ⅰ
Apr 23, 2023
Abstraktní
Jedním z nejdůležitějších mechanismů neuroprotekce zprostředkované prekondicionováním je útlum buněčné apoptózy, navozující toleranci mozku po následné poškozující ischemii. V této souvislosti hraje antiapoptotická signální dráha PI3K/AKT klíčovou roli v regulaci buněčné diferenciace a přežití.
Klikněte pro cistanche tubulosa prášek proneuroprotekce
Je známo, že aktivní AKT zvyšuje expresi myší double minute-2 (MDM2), E3-ubikvitin ligázy, která destabilizuje p53 a podporuje přežití rakovinných buněk. V neuronech jsme nedávno ukázali, že interakce MDM2–p53 je potencována farmakologickým předkondicionováním, založeným na subtoxické stimulaci NMDA glutamátového receptoru, která zabraňuje apoptóze neuronů vyvolané ischemií.
Není však známo, zda tento mechanismus přispívá k neuronální toleranci během ischemického preconditioningu (IPC). Zde ukazujeme, že IPC indukovala PI3K-zprostředkovanou fosforylaci AKT na Ser473, která zase fosforylovala MDM2 na Ser166. Tato fosforylace spustila jadernou stabilizaci MDM2, což vedlo k destabilizaci p53, čímž se zabránilo apoptóze neuronů po ischemickém poškození. Inhibice dráhy PI3K/AKT wortmanninem nebo umlčením AKT vyvolala akumulaci cytosolického MDM2, čímž byla zrušena neuroprotekce vyvolaná IPC.
IPC tedy zvyšuje aktivaci signální dráhy PI3K/AKT a podporuje neuronální toleranci řízením interakce MDM2–p53. Naše zjištění poskytují novou mechanickou dráhu zapojenou do neuroprotekce indukované IPC prostřednictvím modulace signalizace AKT, což naznačuje, že AKT je potenciálním terapeutickým cílem proti ischemickému poškození. Klíčová slova: AKT; MDM2; p53; PI3K; ischemická tolerance; předkondicionování
1. Úvod
U lidí byla odhalena existence tranzitorní ischemické ataky (TIA) jako endogenní předkondicionovaný stav s výhodami funkčních výsledků u pacientů s cévní mozkovou příhodou [1–3]. Endogenní neuroprotekce navozená krátkým subtoxickým ischemickým stimulem, známým jako ischemic preconditioning (IPC), je považována za strategii ve vznikající oblasti neuroprotekce proti ischemickému poškození [4–6].
Důkazy ukazují, že neuroprotekce podporovaná IPC závisí na transkripci, translaci a posttranslačních mechanismech, které mění funkci klíčových proteinů po ischemii [6–11]. Mechanismus zapojený do IPC-indukované ischemické tolerance (IT) však nebyl v lidském mozku plně objasněn [12,13].
Vývoj nových experimentálních přístupů k pochopení neuroprotekce zprostředkované IPC představuje silný nástroj k dešifrování endogenních mechanismů, které jsou základem mozkové IT [6], které mají potenciál odhalit nové terapeutické cíle zaměřené na minimalizaci poškození mozku u pacientů s cévní mozkovou příhodou. V posledních dvou dekádách se apoptotická buněčná smrt neuronů stala základním mechanismem zapojeným do cerebrálního ischemického poškození [14–16]. V tomto smyslu byla proteinkináza B nebo AKT, serin/threoninkináza, která vyžaduje aktivaci funkční fosfoinositidkinázy (PI3K), považována za základní cíl neuroprotektivních terapií po ischemii [17,18].
Nedávno jsme prokázali, že inhibice signální dráhy PI3K/AKT zvyšuje neuronální náchylnost k excitotoxicitě [19]. AKT je zapojena do komplexní antiapoptotické signalizační sítě [20], jejíž složky mohou být přítomny v různých subcelulárních místech v závislosti na typu tkáně [21,22]. V srdci se AKT účastní kardioprotekce podporované prekondicionováním [23].
Důkazy také ukazují, že fosforylovaný AKT podporuje přežití neuronů na začátku mozkové ischemie [24]. Přestože aktivace AKT může přispívat k indukci IT v mozku [25], přesný mechanismus zahrnující její aktivaci zprostředkovanou IPC zůstává v nedohlednu. V nádorových buňkách vede aktivace signální dráhy PI3K/AKT k fosforylaci MDM2 na Ser166/186, která podporuje jadernou translokaci MDM2 [26,27] a zvyšuje jeho ubikvitinační aktivitu [28].
V jádře se MDM2 váže na p53 a podporuje jeho ubikvitinaci a následnou proteasomální degradaci, která inhibuje funkci p53 [29]. Za stresových podmínek by p53 mohl také vyvolat nadměrnou expresi MDM2, která naopak potlačuje aktivaci p53 v negativní zpětnovazební smyčce [30]. Inhibice PI3K zabraňuje aktivaci AKT [31] a fosforylaci MDM2 v předkondicionovaném srdci [32].
V této souvislosti jsme dříve zjistili, že in vivo předkondicionování mozku snížilo objem infarktu po přechodné okluzi střední mozkové tepny (tMCAO) zvýšením exprese proteinu MDM2. V důsledku toho komplex MDM2–p53 zeslabil ischemií indukovanou aktivaci signální dráhy p53/PUMA/kaspáza-3 v primárních kortikálních neuronech [33].
Zde se zabýváme úlohou signální dráhy PI3K/AKT v neuronální toleranci zprostředkované IPC proti následnému ischemickému poškození, stejně jako základním mechanismem, a zaměřujeme se především na potenciální vazbu mezi aktivací AKT a komplexem MDM2–p53 .
2. Výsledky
2.1. Neuroprotekce podporovaná IPC
je zprostředkována fosforylací AKT na Ser473, fosforylací MDM2 na Ser166 a destabilizací p53 Již dříve jsme popsali dopad interakce MDM2–p53 na neuronální náchylnost k ischemii [34] a IT [33]. Zde jsme zkoumali potenciální roli AKT na neuroprotekci zprostředkovanou IPC jako kandidáta na zapojení do dráhy MDM2–p53.
Nejprve jsme potvrdili, že ischemie podporuje aktivaci AKT v neuronech, jak dokazuje fosforylace AKT na Ser473. Jak je znázorněno na obrázku 1A, krátký (20 minut) OGD významně indukoval expresi p(Ser473)AKT a MDM2, zatímco hladiny proteinu AKT zůstaly nezměněny (obrázek S1A). Fosforylace AKT však nebyla pozorována, když byly neurony vystaveny prodloužené OGD (90 minut). Kromě toho byly hladiny proteinu MDM2 nižší, což je v souladu s vyšší expresí proteinu p53, jak je znázorněno na obrázku 1A.
Časově závislá upregulace exprese Mdm2 po OGD (obrázek 1B) potvrzuje, že subakutní ischemie může být důležitá pro indukci mechanismů, které brání stabilizaci p53 po OGD, jak bylo popsáno dříve [33]. Jako model IPC jsme použili krátkou OGD (20 minut) následovanou 2 hodinovou reoxygenací (obrázek S1B) [33]; proto jsme analyzovali neuronální extrakty shromážděné po 4 hodinách reoxygenace po OGD (OGD/R) nebo po OGD, kterému předcházel protokol IPC (IPC plus OGD/R). Paralelně byly neurony inkubovány v normoxii (Nx) nebo preconditioningu (IPC) (obrázek S1B).
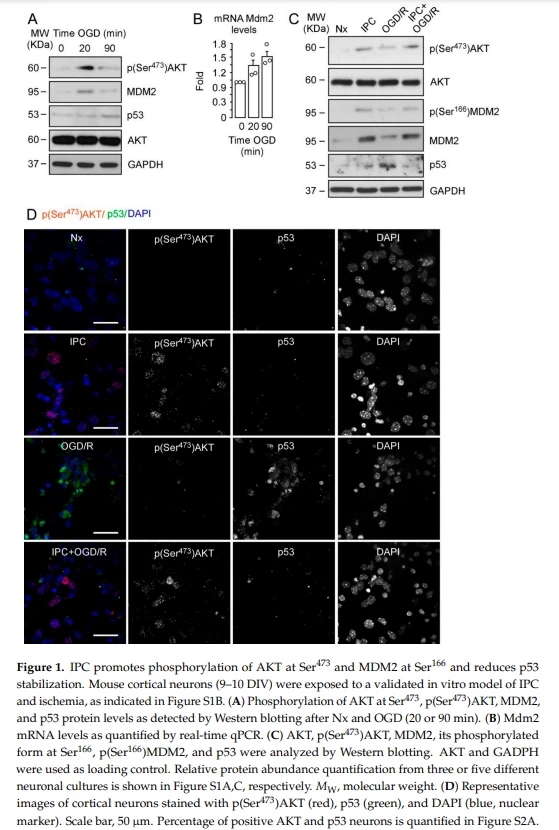
Jak je znázorněno na obrázku 1C a obrázku S1C, IPC indukoval časnou aktivaci AKT, jak se ukázalo fosforylací na Ser473 [35], následovanou stabilizací proteinu MDM2 a fosforylací na Ser166. IPC také zabránila stabilizaci p53 indukované OGD/R (obrázek 1C). Je zajímavé, že imunofluorescenční snímky zobrazené na obrázku 1D odhalily, že IPC podporoval AKT fosforylaci na Ser473 v neuronech, které se převážně akumulovaly v jádře, a snižoval stabilizaci p53 po OGD/R (IPC plus OGD/R) ve srovnání s neupravenými neurony (OGD /R).
V důsledku toho IPC zabránil neuronální apoptóze a aktivaci kaspázy{0}} způsobené OGD/R, jak bylo měřeno průtokovou cytometrií (obrázek S1D) a fluorimetrickými testy (obrázek S1E). K potvrzení role p53 v neuroprotekci zprostředkované IPC jsme použili neurony exprimující (divoký typ; wt) nebo neexprimující (knockout; ko) protein p53. Naše výsledky ukazují, že neurony postrádající p53 (obrázek S1F) byly odolnější vůči apoptóze indukované OGD než neurony p53 wt.
Kromě toho byly hladiny apoptózy v neuronech p53KO podobné těm, které byly pozorovány u předkondicionovaných (IPC plus OGD/R) neuronů wt (obrázek S1G), což potvrzuje klíčovou roli destabilizace p53 v neuroprotekci zprostředkované IPC [33]. Naše výsledky ukazují, že IPC indukovala neuroprotekci proti ischemickému poškození prostřednictvím mechanismu, který zahrnuje fosforylaci AKT na Ser473, stabilizaci MDM2 a fosforylaci na Ser166 a destabilizaci p53.
2.2. IPC spouští fosforylaci MDM2 na Ser166 prostřednictvím dráhy PI3K/AKT
Signální dráha PI3K/AKT se účastní neuronálního IT jak in vitro [36], tak in vivo [37]. Role aktivace PI3K/AKT dráhy zprostředkované IPC v regulaci komplexu MDM2–p53 však zůstává neprozkoumaná. Aby se to vyjasnilo, neurony byly inkubovány s ireverzibilním a specifickým inhibitorem dráhy PI3K/AKT, wortmanninem [19].
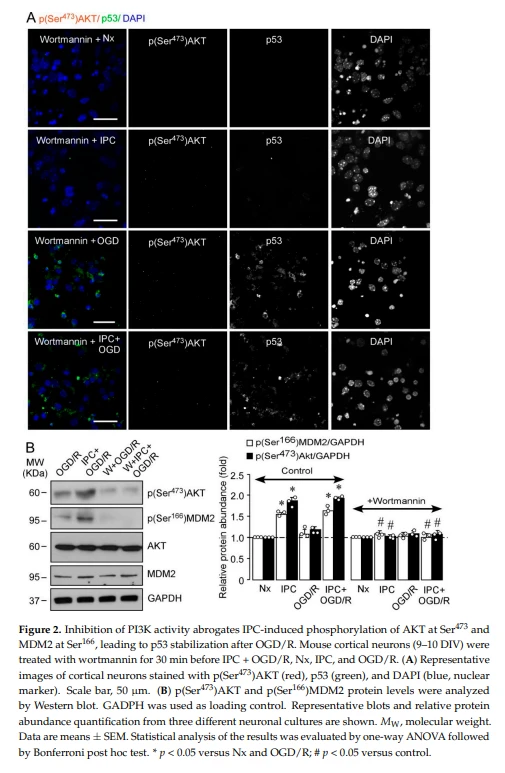
Jak je znázorněno na obrázku 2A, wortmannin zrušil fosforylaci (Ser473)AKT zesílenou IPC a destabilizaci p53, jak je znázorněno na obrázku ID. Tyto výsledky naznačují přímou souvislost mezi aktivací AKT a inhibicí p53-zprostředkované neuronální apoptózy (obrázek S1D) a aktivací kaspázy -3 (obrázek S1E) indukované po OGD/R. Hlavním regulátorem stabilizace p53, MDM2, je cíl AKT [26], který fosforyluje MDM2 na Ser166 a Ser186 [26]. Inhibice PI3K wortmanninem zabránila fosforylaci jak (Ser473)AKT, tak (Ser166)MDM2 indukované IPC (obrázek 2B).
Specifická Akt zprostředkovaná fosforylace MDM2 na Ser166 indukovaná IPC byla potvrzena použitím malé interferující RNA (siRNA) specificky navržené proti proteinu AKT1 (siAkt), vysoce exprimovanému v kortikálních neuronech a jehož aktivita je nezbytná pro přežití neuronů po ischémii. 38]. Jak je znázorněno na obrázku 3, siAkt snížil celkové hladiny AKT a proteinu p(Ser473)AKT 3. den po transfekci, a to jak v HEK-293T buňkách (obrázek 3A), tak v kortikálních neuronech (obrázek 3B).
Navíc knockdown AKT (siAkt) zabránil fosforylaci (Ser166)MDM2 (obrázek 3B). Tyto výsledky ukazují, že signální dráha PI3K/AKT aktivovaná IPC podporuje fosforylaci MDM2 na Ser166, která může být zodpovědná za stabilizaci MDM2 a následnou destabilizaci p53 po ischemickém poškození.
2.3. IPC-aktivovaný AKT spouští jadernou stabilizaci proteinu MDM2 po ischemii
Aktivace AKT se účastní jaderné translokace MDM2 v nádorových buňkách [26]. S ohledem na význam jaderné stabilizace MDM2 pro přežití neuronů po ischemii [34] a konkrétněji na jeho neuroprotektivní roli v IPC [33] jsme se rozhodli dále prozkoumat význam signální dráhy PI3K/AKT v regulaci subcelulární lokalizace MDM2 protein.
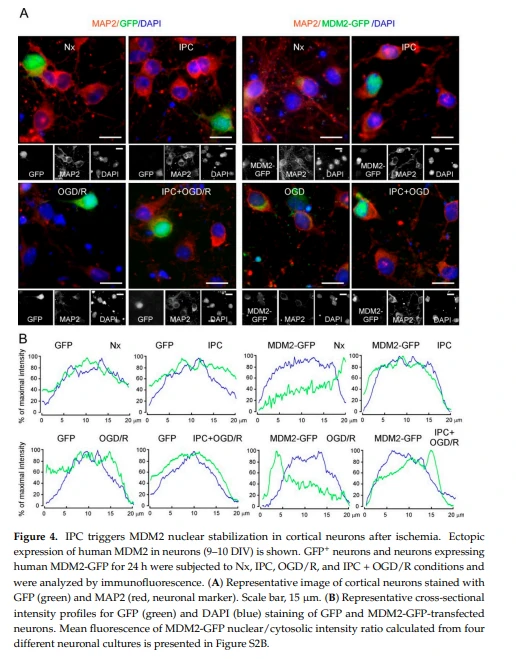
Neurony nebo HEK-293T buňky byly tedy transfekovány lidským MDM2-značeným proteinem (MDM2-GFP). Reprezentativní bloty transfekovaných HEK-293T buněk a obrázky z neuronů ektopicky exprimujících lidský protein MDM2 po čtyřech různých experimentálních podmínkách (Nx, IPC, OGD/R a IPC plus OGD/R) jsou uvedeny na obrázku 4A a obrázku S1H , resp.
Ektopická exprese MDM2- GFP potvrdila, že IPC podporuje jadernou akumulaci MDM2 ve srovnání s nepředkondicionovanými ischemickými (OGD/R) nebo normoxickými (Nx) neurony (obrázek 4A, B), jak ukázala kvantifikace poměru jaderné/cytosolické fluorescence (obrázek S2B) a intenzita jaderné fluorescence MDM2-GFP (obrázek S2C).

2.4. IPC podporuje interakci p(Ser473)AKT a MDM2, která zvyšuje stabilizaci MDM2 v jádře a snižuje indukovanou neuronální apoptózu při ischemii
Po demonstraci role IPC zesílené aktivace PI3K/AKT dráhy v jaderné stabilizaci MDM2 jsme dále zkoumali, zda p(Ser473)AKT a MDM2 interagují v jádře (obrázek 6A). Imunoprecipitace MDM2 z extraktů jaderných proteinů, následovaná imunoblotováním proti MDM2 a p(Ser473)AKT, odhalila, že IPC podporovalo interakci mezi p(Ser473)AKT a MDM2 po OGD/R, čímž se zabránilo OGD/R-indukované jaderné stabilizaci p53, jak je znázorněno na vstupu jádra (obrázek 6A).

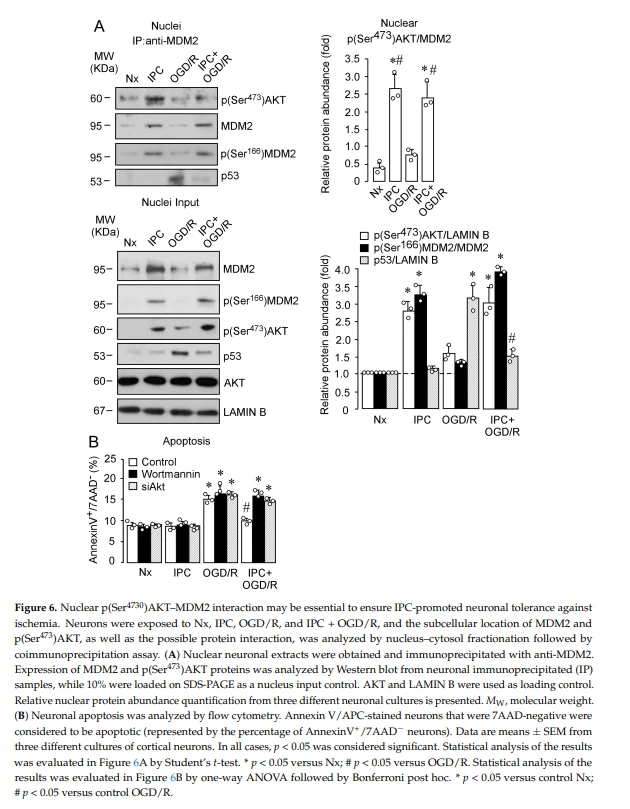
Nakonec jsme studovali škodlivý účinek narušení dráhy PI3K/AKT na neuronální apoptózu (obrázek 6B). Inhibice AKT působila proti ochrannému účinku IPC před OGD, což potvrzuje neuroprotektivní roli AKT–MDM2 v kontextu IT. Naše výsledky tedy ukazují, že IPC indukuje fosforylaci a aktivaci AKT, která podporuje fosforylaci MDM2 na Ser166 a jadernou translokaci, kde interaguje s p(Ser473)AKT. Tento mechanismus může přispět ke zvýšené jaderné stabilizaci MDM2, která hraje zásadní roli v ischemické toleranci indukované IPC.
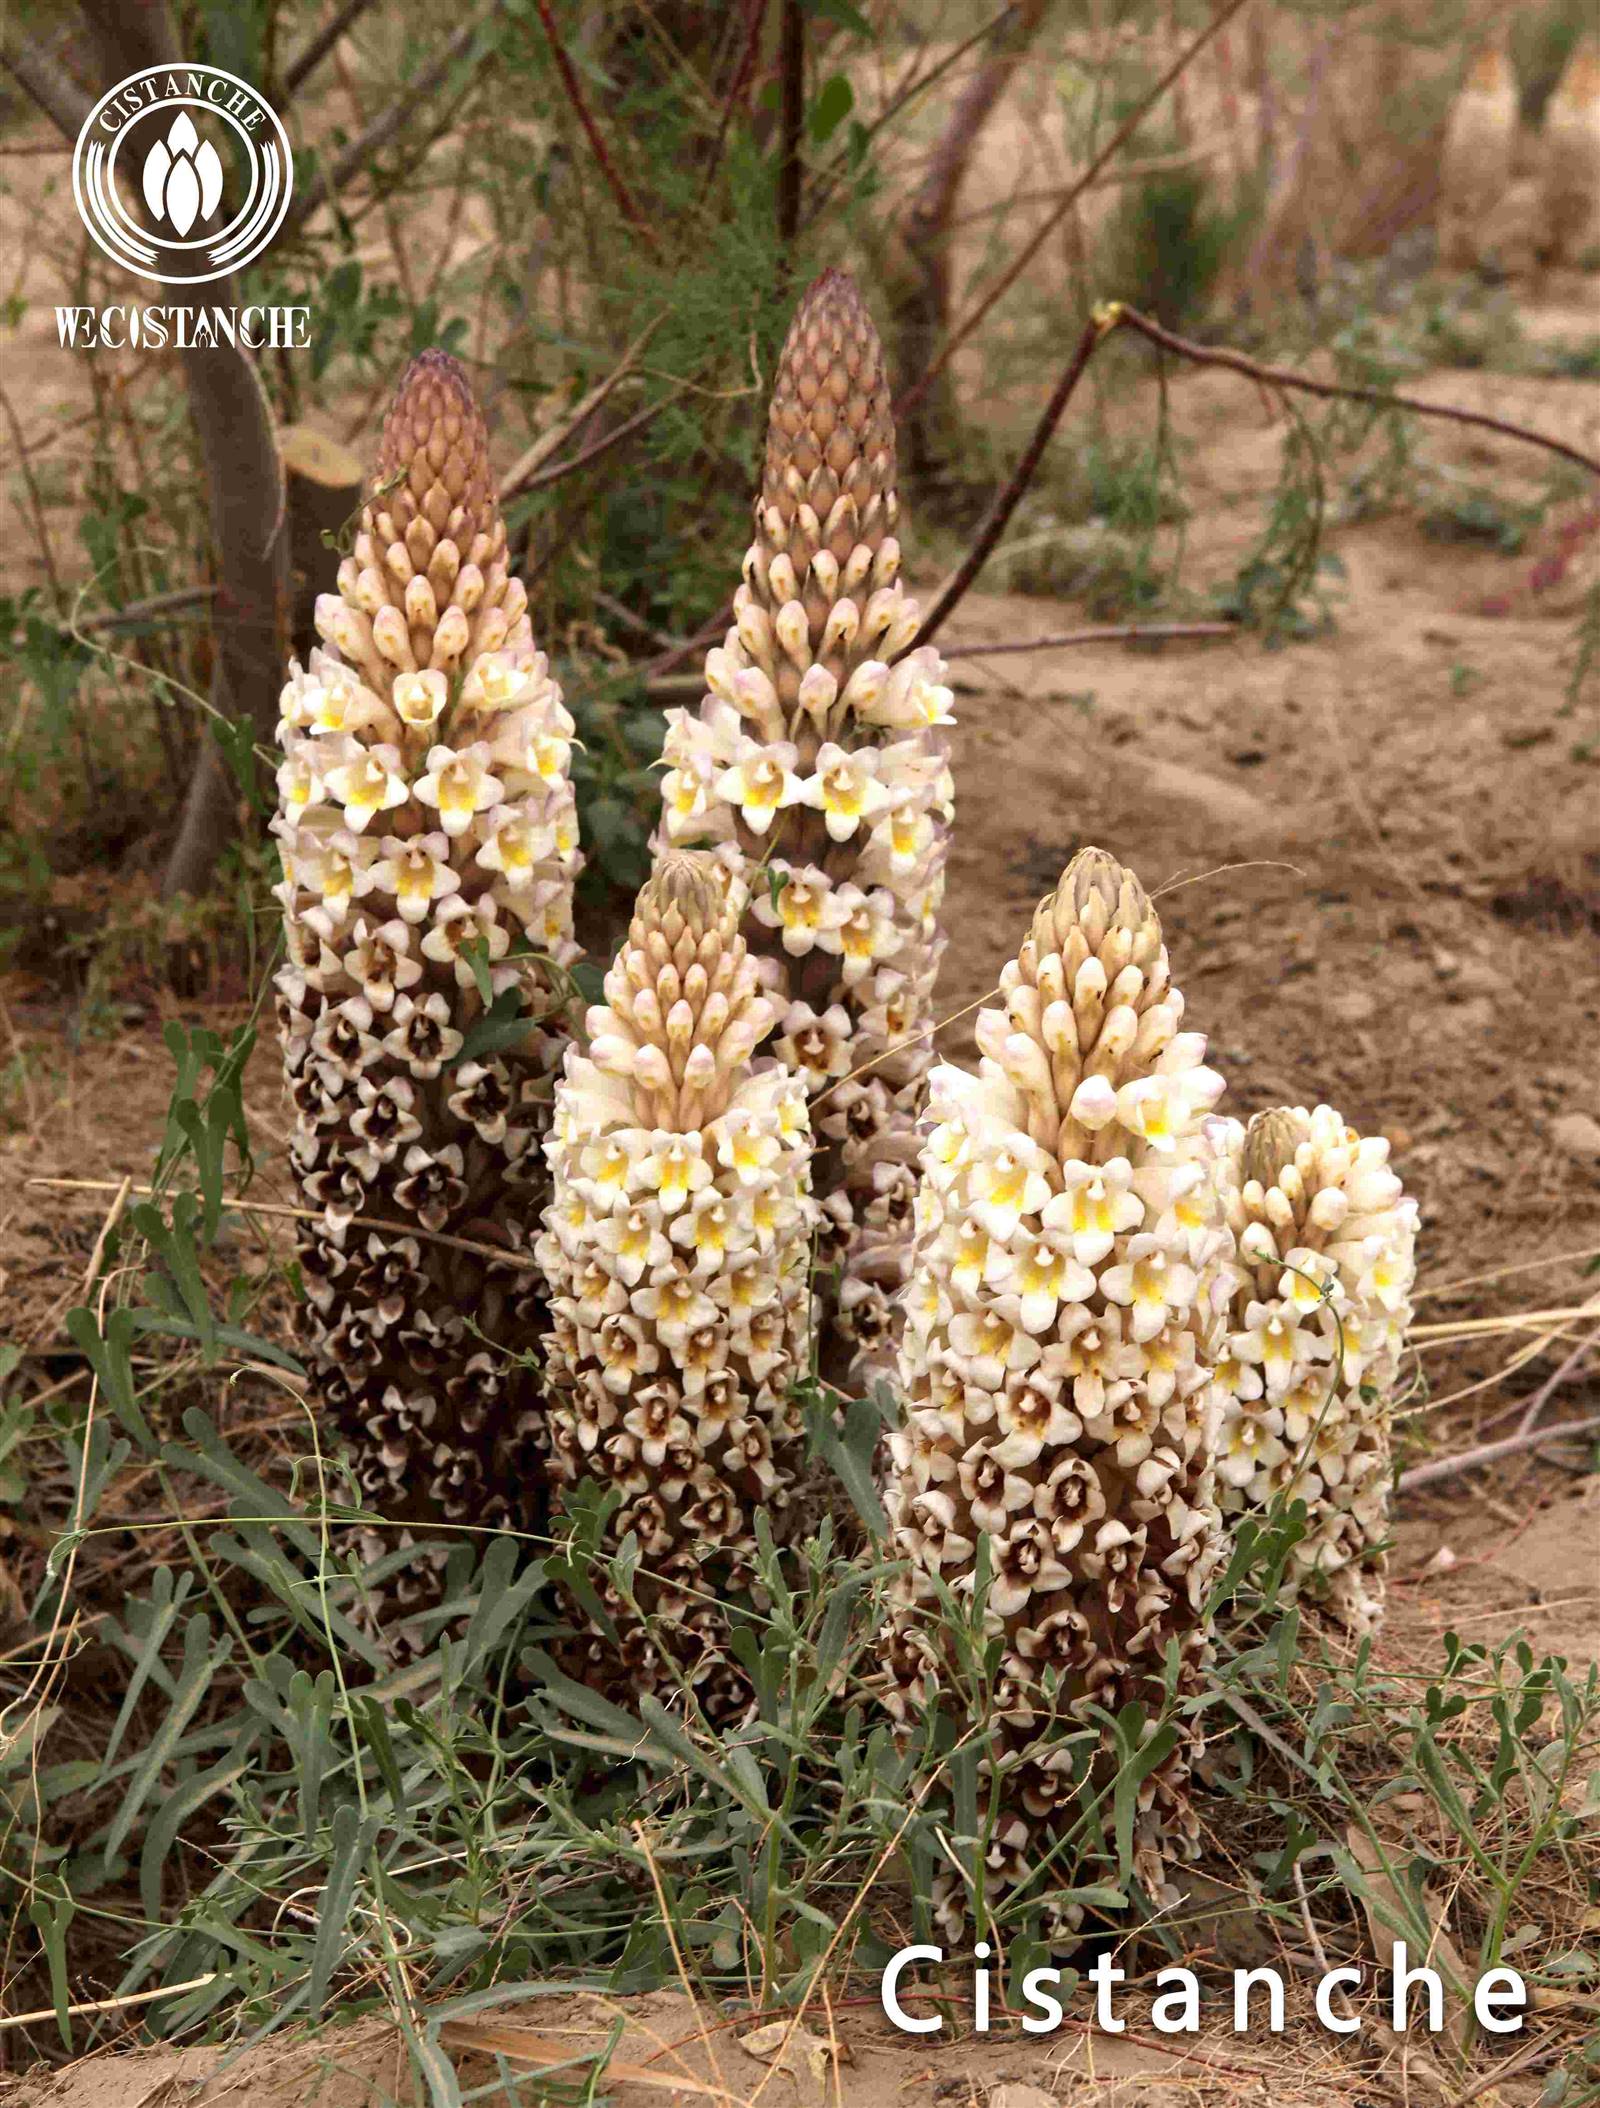
Jak Cistanche chrání neurony?
Existují určité důkazy, které naznačují, že Cistanche může chránit neurony snížením apoptózy (programované buněčné smrti) a podporou přežití neuronů. Apoptóza je přirozený proces, který v těle probíhá za účelem odstranění poškozených nebo nežádoucích buněk, ale může být škodlivý, pokud k němu dochází nadměrně nebo nepřiměřeně. V laboratorních studiích bylo zjištěno, že Cistanche inhibuje apoptózu a tento účinek může pomoci chránit neurony před poškozením.
Kromě toho obsahuje Cistanche řadu bioaktivních sloučenin, u kterých bylo prokázáno, že mají neuroprotektivní účinky. Obsahuje například echinakosid, který prokazatelně chrání neurony před oxidačním stresem a záněty. Obsahuje také akteosid, o kterém bylo zjištěno, že má protizánětlivé a antioxidační vlastnosti.
Pokračování příště...
Emilia Barrio 1,†, Rebeca Vecino 1,2,†, Irene Sánchez-Morán 1, Cristina Rodríguez 1,2,3, Alberto Suárez-Pindado 1, Juan P. Bolaños 1,2,3,4, Angeles Almeida 1, 2,3 a Maria Delgado-Esteban 1,2,3,*
1 Institut funkční biologie a genomiky, University of Salamanca, CSIC, 37007 Salamanca, Španělsko; emibg7@gmail.com (EB); rebecavecino@usal.es (RV); irene_sm@usal.es (IS-M.); c.rodriguez@usal.es (CR); Alsuap77@gmail.com (AS-P.); jbolanos@usal.es (JPB); aaparra@usal.es (AA)
2 Institut biomedicínského výzkumu v Salamance, Univerzitní nemocnice v Salamance, Univerzita v Salamance, CSIC, 37007 Salamanca, Španělsko
3 Katedra biochemie a molekulární biologie, Univerzita Salamanca, 37007 Salamanca, Španělsko 4 Centro de Investigación Biomédica en Red de Fragilidad y Envejecimiento Saludable (CIBERFES), Instituto de Salud Carlos III, 28029 Madrid, Španělsko * Korespondence: mdesteban@usal.es ; Tel.: plus 34-923-29-4908