Část druhá | Jia-Jian-Di-Huang-Yin-Zi odvar má neuroprotektivní účinky na dopaminergní neurony a jejich mikroprostředí
Mar 06, 2022
Část druhá | Jak čínská bylinná medicína, jako je Cistanche, hraje neuroprotektivní účinek a zlepšuje paměť?
Pro více informací prosím kontaktujte ali.ma@wecistanche.com
Klikněte na Cistanche extrakt prášek a doplněk pro paměť
Diskuse
Současná léčba PD má za cíl především zmírnit klinické příznaky. Jako jedna z potenciálních intervenčních metod hrají neurotrofické faktory roli vyživujících neuronů, což podněcuje regeneraci axonů18. Te sníženíneurotrofnífaktory mohou vyvolat degeneraci dopaminergních neuronů. Vědci imunobarvili mozkové tkáně pacientů s PD a bez PD ve věku 72-79 let, aby pozorovali exprese různýchneurotrofnífaktory. Téměř všechny faktory byly do určité míry sníženy a ztráta GDNF byla nejvýraznější19. GDNF navíc zmírnil motorické příznaky pacientů injekcí putamenu20 a podpořil přežití dopaminergních neuronů in vitro21. V této studii jsme vybrali BDNF a GDNF k vyhodnocení neurotrofních účinků odvaru JJDHYZ a zjistili jsme, že JJDHYZ ve vysokých dávkách se podílí na up-regulaci GDNF. Ve skutečnostineuroprotektivní účinkyJJDHYZ na PD myších bylo více než to. Centrální nervový systém je obzvláště citlivý na oxidační stres pro svou vysokou spotřebu kyslíku, vysokou produkci reaktivního kyslíku a rostoucí ukládání neurotoxických kovových želez22. Z fyzikálního hlediska antioxidační enzymy, jako je superoxiddismutáza (SOD), glutathionperoxidáza (GPx) a kataláza (CAT), katalyzují volné radikály. Autooxidace a enzymatický metabolismus dopaminu však vedou k produkci neurotoxických volných radikálů a nadměrných druhů kyslíku. Nahromaděné volné radikály vyvolávají oxidační stres, který poškozuje biologické molekuly v buňkách a způsobuje buněčnou smrt23. Posmrtné studie odhalily snížení GSH a přírůstek GSSG v SNpc, které oslabují přirozenou antioxidační obranu a spouštějí degeneraci nigral neuronů24. Na zvířecích modelech neurotoxin jako MPTP indukuje tvorbu volných radikálů a zhoršuje zátěž antioxidačních enzymů25. V naší současné studii jsme zjistili, že MPTP inhibuje exprese GSH, CAT a zlepšuje koncentraci MDA. JJDHYZ inhiboval tvorbu MDA, zachránil ztrátu antioxidačního GSH, zejména při vysokých dávkách. S hloubkovou studií PD,neurozánětje také považován za spojený se selektivní ztrátou dopaminergních neuronů. Proto by terapeutický zásah do aktivace mikroglií a astrocytů byl jednou z účinných strategií. Mikroglie jsou důležité monitory imunity, které tvoří první obrannou linii proti napadajícím patogenům a rychle reagují na poranění CNS. Nadměrná mikroglie a astrocyty byly pozorovány v substantia nigra a striatum pitevních případů26. Aktivované mikroglie a astrocyty generují ROS27 a uvolňují prozánětlivé cytokiny, chemokiny a další proteinázy28. Hladiny IL-1β, IL-2, IL-6 a TNF-α se zvyšují v mozkomíšním moku pacientů s familiárním nebo sporadickým PD29. Podobná pozorování byla hlášena u zvířecích modelů indukovaných MPTP a 6-OHDA. Tyto vylučované faktory podporují střídání v neuronálním prostředí a zvyšují náchylnost neuronů k smrti30,31. Dvojitou imunobarveni jsme GFAP s TH detekovali aktivované astrocyty v SN. Mezitím jsme použili dva biomarkery k označení mikroglie. Kromě známého biomarkeru Iba-1 byl použit další nový marker specifický pro buněčný povrch, mikroglie s názvem transmembránový protein 119 (Tmem119)32. Výsledky prokázaly významnou ztrátu TH-pozitivních.
buňky současně se zvýšeným počtem gliových buněk v modelové skupině (obr. 3). Léčba JJDHYZ-H inhibovala ztrátu DAneuronya destruktivníneurozánět.
Prostřednictvím výše uvedených výsledků primárně vyvozujeme závěr, že JJDHYZ měl neuroprotektivní účinky na MYŠI PD. Mechanismy však byly stále nejisté. Protože přežití dopaminergních neuronů závisí o mikroprostředí, potenciálních souvislostech mezineuronya NVU nás přitahovalo nejvíce, takže jsme dále zkoumal regulované účinky JJDHYZ na NVU.
NVU se primárně skládá z neuronů a neneuronálních buněk, včetně endoteliálních buněk, pericytů, astrocytů, mikroglií a buněk hladkého svalstva cév. BBB je klíčovou složkou. Nejprve jsme pozorovali ultrastrukturální změny v BBB pomocí TEM. Normální mikrocévy byly složeny ze spojité bazální laminy, astrocytárních koncových nohou a normálních endoteliálních buněk, které lze jasně pozorovat pod transmisním elektronovým mikroskopem. V modelu indukovaném MPTP však byly normální struktury místo toho oteklými endoteliálními buňkami a astrocytárními koncovými nohami, poraženými kapilárními lumeny a edémem (obr. 4B). JJDHYZ-H zmírnil otok astrocytárních koncových nohou. Byly také pozorovány mikrocévy s kontinuální bazální membránou a integritou endotelu (obr. 4C). Angiogeneze je důležitým mechanismem, který se podílí na patofyziologii PD33. Zvýšený počet jader endoteliálních buněk a krevních cév byl hlášen posmrtně u SNpc pacientů s PD a parkinsonskými primáty. Přírůstek CD31 může souviset s narušením hematoencefalické bariéry aneuroinfammation11,34,35. Například myši indukované MPTP s knockoutem TNF-α byly více možné, aby se zabránilo narušení BBB36. Zde jsme zkoumali BBB, neurony a gliové buňky v kombinaci, abychom tuto léčbu hluboce prozkoumali. Mikrocévy byly označeny protilátkou anti-CD31 a v modelové skupině bylo nalezeno více CD31 pozitivních mikrocév (obr. 6, P<0.05), which="" is="" in="" accordance="" with="" the="" reports="" of="" angiogenesis="" in="">
Mikrocévy regulují výměnu látek uvnitř a vně cév a tvoří přirozenou bariéru pro ochranu CNS. Proteiny těsné křižovatky, které jsou pevně spojeny, mají vysokou selektivitu, která omezuje vstup exogenních látek přes buněčnou mezeru. Expresi okludinu a klaudinu-5 jsme detekovali v SNpc imunobarvením (obr. 5). MPTP vyčerpala tyto dva těsné proteiny, zatímco proteiny u myší léčených JJDHYZ-H se významně nelišily od proteinů v normální skupině. Kromě těsných křižovatek ovlivňují funkci BBB38 také střídání MMP. Enzymy závislé na zinku Tese jsou klíčovými mediátory změn proteinů těsné křižovatky a vykazují proteolytickou aktivitu na extracelulární matrici, včetně bazální laminy v NVU39. Za neurozánětlivých podmínek se MMP3 a MMP9 nejprve vylučují v reakci na zánětlivé poranění a MMP2 se vylučuje ve formě zymogenu, který se aktivuje při poranění hostitele v CNS40. Všechny tři tyto MMP štěpí proteiny těsné křižovatky. Okludin je zranitelný vůči útoku MMP, MMP-2 a MMP-9 degraduje claudin-5 po ischemické urážce41. MMP také degradují bazální laminátové proteiny, jako je fibronektin, laminin a heparan sulfát, po ischemické urážce, která přispívá k rozpadu BBB42,43. Několik zpráv tvrdilo, že MMP se podílejí na apoptóze. Mrtvé DA neurony uvolňují MMP3 in vitro, což dále indukuje mikrogliální aktivaci44. Fluorescenčně jsme obarvili MMP2, MMP3 a MMP9 a zjistili jsme, že exprese všech tří těchto MMP byly ve skupině modelů zvýšeny (obr. 7). JJDHYZ-H udržoval expresi klaudinu-5 a okluzi, pravděpodobně inhibicí aktivace MMP.
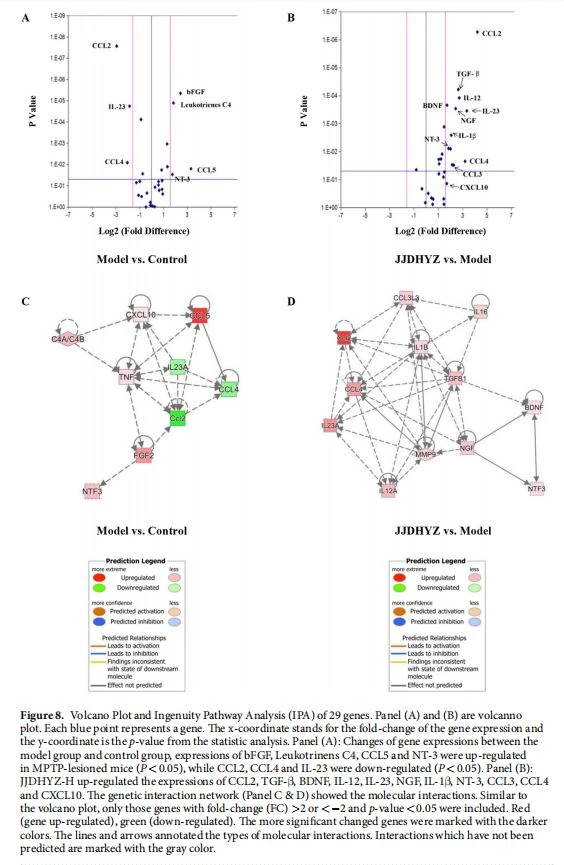
Pro studium mikroenvironmentálních změn imunitních faktorů jsme z publikovaných článků vybrali 29 faktorů, z nichž každý úzce souvisel s mikrogliemi a astrocyty. Ve srovnání s kontrolní skupinou byly CCL2, CCL4 a IL-23 v modelové skupině regulovány dolů. JJDHYZ při vysokých dávkách zvrátil inhibiční účinky MPTP na CCL2, CCL4 a IL-23 (obr. 8). Zvýšená exprese CCL2-mRNA byla hlášena u akutního pd modelu vyvolaného MPTP a CCL2 může dále indukovat expresi CCL4; ztráta neuronů SNpc však není významně snížena u myší s knockoutem CCL245. Role CCL2 v PD je stále nejistá. IL-23 je produkován myeloidními buňkami a byl považován za jeden z klíčových cytokinů pro cílenou terapii imunitně zprostředkovaných onemocnění46,47. Na základě dřívějších zpráv se předpokládalo, že CCL2 a CCL4 podporují zánět v modelechAlzheimerova choroba, zatímco IL23 inhibuje zánět. Je to paradoxní sneuroprotektivní účinkyJJDHYZ? Vzhledem k tomu, že úloha těchto cytokinů je u PD nejasná, je třeba prozkoumat základní mechanismy. Důvod, proč JJDHYZ up-regulované CCL2, CCL4 a IL23 stále zkoumá a výsledky budeme sdílet v budoucnu.
Materiály a metody
Etické prohlášení.
Tato studie byla provedena v souladu s Pokyny pro péči a použití laboratorních zvířat z Národního ústavu zdraví. Výbor pro výzkum na zvířatech ve Fudanu Univerzita schválila všechny postupy.
Zvěř. Samci myší c57BL/6 o hmotnosti 22–25 g (stáří 8–10 týdnů) byli umístěni v zařízení s řízenou teplotou prostředí (konstantní teplota 22±3 °C) s 60% vlhkostí a 12hodinovým cyklem světlo/tma. Jídlo a voda byly k dispozici ad libitum.
Příprava JJDHYZ.
Odvar z Te JJDHYZ se skládá ze sedmi surových bylin: Radix Rehmanniae, Fructus Corni, Radix Morinda Officinalis, Herba Cistanches, Radix Angelicae Sinensis, Radix Asparagi a Radix Paeoniae Alba v poměru 1:0.6:1:1:1:1:1 (podrobnosti o bylinách jsou uvedeny v tabulce 2). Všechny bylinné složky byly zakoupeny z nemocnice Zhongshan, Fudan University. Všechny surové byliny byly nejprve ponořeny do destilované vody po dobu 30 minut a vařeny po dobu 1 hodiny a shromážděny suspenze. Destilovaná voda byla poté přidána do bylinných zbytků a proces se opakoval dvakrát. Dehydratovaný alkohol byl přidán k odebrané suspenzi do konečné koncentrace 75% alkoholu (V / V). Zbytky byly namočeny v 75% ethylalkoholu po dobu 24 hodin, aby se suspenze shromáždila. Suspenze a kapalina získaná ze zbytků byly smíchány a odstřeďovány po dobu 2 000 g po dobu 20 minut. Alkohol byl zcela vypařen rotačním odpařovačem. Konečná koncentrace odvaru JJDHYZ byla 1 g/ml (m/V).

Chemické sloučeniny JJDHYZ.
Te JJDHYZ obsahuje rubiadin (PubChem CID: 124062), paeoniforin (PubChem CID: 442534), albiforin (Pubchem CID: 24868421), kyselina ferulová (Pubchem CID: 445858), catalpol (Pubchem CID: 91520), verbascose (Pubchem CID: 441434), cistanosid D (PubChem CID: 5315930), echinakosid (PubChem CID: 5281771), rehmanniosid A (PubChem CID: 6325881), rehmanniosid D (PubChem CID: 92044472) a kyselinu ursolovou (PubChem CID: 64945).
Návrh studie.
Myším C57BL/6 byl perorálně podáván fyziologický roztok, JJDHYZ nebo selegilin po dobu 14 dnů následovaný intraperitoneální injekcí fyziologického roztoku nebo MPTP (30 mg/kg/den po dobu 5 dnů). Myši byly náhodně rozděleny do následujících šesti skupin: (1) kontrolní skupina: injekce fyziologického roztoku plus gastrointestinální podání fyziologického roztoku; (2) Skupina MPTP: INJEKCE MPTP plus fyziologický roztok; (3) JJDHYZ-nízkodávková skupina (JJDHYZ-L): MPTP injekce plus JJDHYZ 8,5 g/ kg/den; (4) JJDHYZ-střední dávková skupina (JJDHYZ-M): MPTP injekce plus JJDHYZ 17 g / kg / den; (5) JJDHYZ-skupina s vysokým dávkováním (JJDHYZ-H): MPTP injekce plus JJDHYZ 34 g / kg / den; a (6) skupina selegilinu: MPTP injekce plus selegilin 1,0 mg/kg/den48. MPTP prášek a selegilin byly rozpuštěny ve fyziologickém roztoku.
Imunohistochemie.
Části SNpc (−3,64 mm ~ −2,92 mm z Bregmy) byly získány z každá myš. Úseky byly odparafinovány, hydratovány a promyty fyziologickým roztokem s fosfátovým pufrem (PBS) (5min×3), a odběr antigenu byl poté proveden v pufru kyseliny citronové (pH 6,0). Endogenní peroxidázová aktivita byla blokován 3% pufrem peroxidu vodíku a methanolu. Po inkubaci s 10% kozím sérem při pokojové teplotě po dobu 1 hodiny byly řezy inkubovány protilátkou proti okludinu (ab168986, Abcam) při teplotě 4 °C přes noc. Následně imunoznačování pokračovalo pomocí sekundární protilátky proti peroxidu křenu (HRP) (koza). anti-králík, A0208, Beyotime). Imunopozitivní buňky byly počítány z 5 preparátů SN oblasti na myš a průměr byl vzat. Byla použita 3 zvířata na skupinu. Všechna pozitivní čísla buněk byla započítána v SNpc pod 40 zvětšení pomocí softwaru Image-Pro Plus 6.0 (Media Cybernetics, USA).
Imunofluorescenční.
Zmrazené části SNpc byly fixovány v acetonu po dobu 20 minut, ošetřeny 3% peroxidem vodíku v methanolu a poté inkubovány 10% roztokem blokujícího kozí sérum. Dále byly sekce inkubovány při teplotě 4 °C přes noc s protilátkami proti těmto cílovým proteinům: BDNF (ab108319, Abcam), GDNF (ab18956, Abcam), Iba-1 (#019–19741, woke, Japonsko), Tmem119 (ab209064, Abcam), claudin-5 (ab15106, Abcam), MMP2 (ab92536, Abcam), MMP3 (ab53015, Abcam) a MMP9 (ab76003, Abcam). A Cy3-konjugovaný jako sekundární protilátka byla použita kozí anti-králičí protilátka (A0516, Beyotime). Jádra byla protibarvena s DAPI (C1005, Beyotime). Snímky pozitivně obarvených buněk byly pořízeny fluorescenčním mikroskopem (Olympus BX51, Japonsko). Metoda kvantifikace byla stejná jako imunohistochemie.
Kvantitativní RT-PCR analýza.
Celková RNA z tkání SNpc byla extrahována pomocí činidla TRIzol (T9424, Sigma) podle pokynů výrobce. Koncentrace a kvalita mRNA byly stanoveny spektrofotometricky. Reakce reverzní transkripce byly provedeny pomocí činidla PrimeScript RT kit (RR047, Takara) na detekčním systému Applied Biosystems 7500 Real-time PCR pomocí SYBR Premix Ex Taq II Kit (RR820, Takara). Byly použity následující primery pro GAPDH, GDNF a BDNF: GAPDH: 5′-GGT TGT CTC CTG CGA CTT CA-3′ a 3′-CCT CAT TCT TTG GGA CCT GGT-5′; BDNF: 5′-GAG GTC TGA CGA CGA CAT CA-3′ and 3′-GTC AGT TCA CGG AA A CCT CG-5′; a GDNF:5′-CAA TGG ATT CAT ACC CTG-3′ a 3′-TCC AGA TAA TGT AGG TCG T-5′. Všechny vzorky byly hodnoceny třikrát a průměrné hodnoty byly používá se pro relativní kvantifikaci 2−ΔΔCT.
Analýza western blot.
Analýza Western blot byla provedena tak, jak bylo uvedeno dříve49. Tkáně Te SNpc byly odstraněny na ledově studenou desku, lyzovány směsí obsahující RIPA a PMSF ve spojení s inhibitory fosfatázy a poté odstřeďovány při 13 500 ot./min po dobu 20 minut při 4 °C. Ekvivalentní množství proteinů bylo odděleno pomocí gelů SDS-PAGE a PVDF membrán. Membrány byly blokovány 5% netučným mlékem při pokojové teplotě po dobu 1 hodiny a poté inkubovány přes noc primárními protilátkami proti GDNF (1:1 000) a BDNF (1:1 000). Dále byly membrány inkubovány protilátkou proti králíkům konjugovanou HRP (ředění 1:1 000). Imunoreaktivní pásma byla detekována pomocí vylepšené chemiluminiscence (P0018, Beyotime) a kvantifikována pomocí softwaru Image J.
Měření imunosorbentového testu vázaného na enzymy.
Konečný produkt peroxidace lipidů MDA (Katalog #K739, BioVision, USA) a antioxidačních enzymů SOD (Katalog#K335, BioVison), CAT (Katalog #K773, BioVision) a GSH (Catalog #K261, BioVision) byly detekovány pomocí sad ELISA podle pokynů výrobce.
Ultrastrukturální změny BBB.
Myši byly hluboce anestetizovány a poté transkardálně prokrveny se studeným PBS. Tkáně SNpc byly odstraněny a rozděleny do segmentů 1-mm3. Vzorky byly dodatečně fixovány s 2,5% glutaraldehyd a 1% osmium po dobu 2 hodin, následované dehydratací v odstupňované ethanolové sérii a vložením pryskyřice. Ultratenké řezy byly nakrájeny mikrotomem, obarveny 3% uranylacetát-olovnatým citrátem a poté pozorováno u TEM (PHILIPS CM-120).
Hodnocení propustnosti BBB. BBB
propustnost byla hodnocena únikem Evans Blue (E2129, Sigma) do mozku po injekci ocasní žíly, jak bylo popsáno výše50. Stručně řečeno, 2% Evans Blue v normálním fyziologickém roztoku bylo injikováno 1 hodinu před eutanazií zvířat. Myši Te byly hluboce anestetizovány a transkardálně prokrveny normálním fyziologickým roztokem. Tkáně SNpc byly pitvány a inkubovány ve formamidu (100 mg/ml) při 60 °C po dobu 24 hodin, následované odstředěním při 1 000 ot./min po dobu 5 minut. Byly odebrány supernatanty a absorpce tkání byla detekována pomocí luminiscenčního spektrometru na vlnové délce 620 nm na základě standardní křivky Evans Blue.
Statistická analýza.
Data byla analyzována pomocí softwaru SPSS 22.0 využívajícího jednosměrnou analýzu rozptyl (ANOVA) a použití testu po akunejmenším významném rozdílu (LSD). Výsledky byly vyjádřeny jako průměrná± standardní chyba pro porovnání více skupin. Rozdíly byly považovány za statisticky významné pouze v případě, že hodnota P byla menší než 0,05 (P<>